O criacionismo, seja ele da terra-jovem, terra-antiga, ou design inteligente, não se sustenta cientificamente. Suas alegações são, quando muito, ciência ruim. Na maioria das vezes, muito ruim. Os criacionistas estão num círculo vicioso sem fim de reciclar argumentos já amplamente refutados para ouvintes já cansados da ladainha ou para novas vítimas.
A prevalência do criacionismo, contudo, não é apenas uma questão de ciência. Aliás, eu diria até que ciência não é a maior das preocupações dessa estirpe de negacionista. Como eu já argumentei antes, a persistência e prevalência do criacionismo não é questão de desinformação, mas algo quase inerente ao ser humano. E não tem nada a ver com veracidade.
O criacionismo frequentemente atende ao desejo humano de encontrar propósito e ordem no mundo, oferecendo uma narrativa simples e reconfortante sobre a origem da vida, alinhada a nossas inclinações naturais para acreditar em histórias que conectem causa e efeito de forma direta.
Uma pessoa criada em um ambiente religioso ou conservador pode estar exposta desde cedo a uma leitura literal do relato bíblico, desenvolvendo preconceitos que dificultam a aceitação de ideias contrárias, como a evolução. A "caverna" cultural e familiar em que vivem reforça a visão criacionista.
Na minha visão, portanto, a culpa pela contínua insistência de parte da população no criacionismo não é dos cientistas e divulgadores, que “falharam” em sua missão de ensinar e/ou transmitir a ciência e o modo científico de pensar. Um dos maiores culpados, eu diria, é teologia ruim.
Um exemplo de teologia ruim é a negação sistemática de que a Bíblia é um construto humano. São diversos livros, escritos em épocas diferentes, por pessoas bem diferentes, e com propósitos diferentes. Você pode acreditar que cada uma foi, de alguma forma, inspirada por Deus? Pode, não sou fiscal de crença. Mas se já leu a Bíblia a sério, isto é, respeitando o texto, sua história e os povos para os quais os textos foram escritos, você vai saber que é um compilado, no mínimo, heterogêneo.
Claro, é muito mais fácil ceder à preguiça ou blindar-se do conhecimento do que tentar compreender os pormenores do texto. É muito mais fácil e reconfortante acreditar que a Bíblia é, do começo ao fim, um texto ditado pelo papai do céu. Do meu ponto de vista, e do ponto de vista de muitos bons cristãos, isso é aviltar o intelecto e desprezar a história desse texto fascinante.
Ecoando as palavras de um cientista e presbiteriano sobre essa mesma questão:
“No entanto, a Bíblia é um livro poderoso, repleto de sabedoria, inspiração espiritual e alimento para a fé. Mas ela precisa ser lida com perspectiva e compreensão, e não com um literalismo servil. Os cristãos não devem confundir a adoração da Bíblia com a adoração de Deus”.
A visão literalista de muitos criacionistas empobrece a Bíblia. Na Bíblia, nem tudo pretende ser fato. Há muito de alegoria, de metáfora, de poesia. Não requer interpretação literal.
Essa insistência em absurdos, como a ideia de que Noé colocou sei lá quantos animais dentro de uma arca, mais prejudica do que ajuda a religião. Se tomamos as metáforas e parábolas como eventos literais, perde-se o poder da pregação religiosa.
A insistência no literalismo, especialmente quando diz respeito à evolução da vida, gera ainda outras formas de degradar e macular a religião. Os criacionistas, talvez sem perceber, fazem uma caricatura de Deus. O que me lembra uma declaração do saudoso Papa Francisco: “Quando lemos a respeito da criação em Gênesis, corremos o risco de imaginar que Deus era um mágico, com uma varinha mágica capaz de fazer tudo. Mas isso não é assim”. Se Deus criou (no sentido mais amplo da palavra) a vida na Terra (e sabe-se lá onde mais), pode ter utilizado muitos mecanismos.
Muitos cristãos acreditam que Deus criou as leis naturais. Podemos entender essas leis e explicar a arquitetura, origem e composição do Universo, como resultado de causas secundárias, plenamente naturais, mas nem por isso “ateístas”.
E isso me traz outra vez à noção de teologia ruim. Muitos acreditam que adotar uma visão naturalista do Universo e da vida, e aceitar, por exemplo, que a vida na Terra surgiu naturalmente e evoluiu ao longo de bilhões de anos, é ir contra a Bíblia, é ir contra Deus, é ir contra o Cristianismo. Que mentalidade pequena! Não preciso nem dizer que muitos, mas muitos cientistas, são bons cristãos e não negam a ciência.
No fundo, me parece que as pessoas que insistem no criacionismo são pessoas de fé fraca. Como já apontei em “A Crise Interna do Criacionismo”, até mesmo grande apologistas cristãos parecem concordar. William Lane Craig, famosos debatedor e apologista, certa vez disse o seguinte sobre o criacionismo da terra-jovem:
“A ideia de que o mundo – o Universo – foi criado há apenas alguns milhares de anos em seis dias consecutivos de 24 horas é indefensável. A ideia de que houve um dilúvio global dentro da história humana que exterminou toda a vida terrestre na Terra (tanto animal quanto humana) é indefensável. A ideia de que todas as línguas humanas se originaram de um zigurate na Babilônia há alguns milhares de anos é intelectualmente indefensável. Portanto, o criacionismo da terra jovem é um grande embaraço para a fé cristã hoje...esse movimento está causando um enorme dano à fé cristã... e impede que as pessoas cheguem a Cristo ao erguer obstáculos desnecessários em seu caminho”.
Claro, o próprio Craig ainda comete o erro de aderir ao design inteligente. Mas há algo que aprendi com o Altay de Souza (Naruhodo Podcast): é importante estar menos errado. Menos errado é melhor que mais errado.
Evidentemente, você é livre para acreditar (ou não) que Deus falou, fala e falará com seus fiéis. Mas eu tenho certeza de que a natureza de certa forma “fala” conosco. E a melhor forma desenvolvida até agora para entender o que ela diz a respeito de sua constituição e funcionamento é a ciência, ainda que imperfeita.
João Lucas da Silva é mestre em Ciências Biológicas pela Universidade Federal do Pampa, e atualmente doutorando em Ciências Biológicas na mesma universidade
A IDADE DA TERRA Abordagem sobre as teorias de “Terra Antiga” e “Terra Jovem”. Por W. Padilha Escola Charles Spurgeon
SUMÁRIO ............................................................................................................................................. I 1. Introdução ............................................................................................................................... - 1 - 2. Considerações a cerca do tema ...................................................................................... - 2 - a. Na Bíblia há lacunas em sua genealogia ............................................................. - 2 - b. A idade da raça humana ............................................................................................ - 2 - c. Animais morreram antes da Queda? .................................................................... - 3 - d. Como entender a questão dos dinossauros? .................................................... - 4 - e. Quanto tempo tinham os dias da criação? ........................................................ - 4 - 3.Teorias criacionistas da “terra antiga” ........................................................................... - 7 - a. Tese do dia-era ............................
.................................................................................. - 7 - b. Tese da estrutura literária.......................................................................................... - 9 - 4.Teorias criacionistas da “terra jovem”......................................................................... - 10 - a. Criação com aparência de antiguidade ............................................................ - 10 - b. A geologia do dilúvio............................................................................................... - 11 - 5. Principais diferenças das teorias ................................................................................. - 12 - 6. Conclusão ............................................................................................................................. - 12 - 7.Referências Bibligráficas .................................................................................................. - 14
1. Introdução Por séculos os seres humanos contemplaram o céu e imaginaram de que maneira o universo se tornou o que é hoje. O tema sempre foi motivo de debate entre aqueles que tentaram revelar o mistério da criação, até surgir um pensamento científico dominante de que uma grande explosão, a partir de um átomo primordial, teria dado origem ao universo (o Big Bang). Embora essa teoria seja famosa, ela não é aceita por aqueles que acreditam que a Terra e o universo foram obras das mãos de Deus, e que a Terra, em particular, fora criada em sete dias, sem nenhum material pré-existente. “No princípio criou Deus os céus e a terra” (Gn. 1:1). O primeiro capítulo de Gênesis relata como Deus foi criando todas as coisas: os céus, a terra, os animais, as plantas... e por último o homem. Por outro lado, atualmente, existem provas incontestáveis de que o mundo tem bilhões de anos e, por conta disso, alguns tentam explicar o tempo em demanda para a formação da Terra e tudo que nela há, como está na Bíblia, não teria sido em sete dias e sim em grandes sete fases geológicas, ou seja, sete eras. As duas opções a escolher sobre a idade da Terra são a teoria da “terra antiga” que se alinha com as descobertas científicas de que a Terra tem por volta de quatro bilhões e meio de anos ou da “terra jovem” que diz ter a Terra por volta de dez a vinte mil anos, afirmando que os sistemas de datação científicos estão equivocados. O intuito de abordar o tema da idade da Terra surgiu da tentativa de levantar informações pertinentes a respeito do assunto e direcionar o leitor a ter uma visão mais coerente e equilibrada do mesmo, independente da conclusão a qual chegar. 2. Considerações a cerca do tema Levantamos aqui algumas informações a cerca do tema que nos servirão como pressupostos para abordarmos as duas teorias com mais profundidade. a. Na Bíblia há lacunas em sua genealogia Quando comparadas as genealogias, verificamos que as mesmas não são iguais, apresentando saltos na organização da linhagem de Adão. Longe de ser um erro de registro, a descrição pivotante da descendência em cada porção escriturística está ligada aos propósitos do contexto de expor os homens mais importantes segundo a necessidade de cada relato; o que torna esse método de cronologia inviável para se descobrir a idade da Terra. b. A idade da raça humana Segundo descobertas arqueológicas, o homem está na Terra desde as pinturas rupestres do homem de Cro-Magnon, datadas de aproximadamente 10.000 a.C. Porém existe alguma variação de datas quando investigados os indícios geológicos de um Cro-Magnon na Sibéria, sendo sua existência aproximadamente de 20.000 a 35.000 a.C. A questão é que, no método de datação Carbono 14, a sua data passa para apenas 9.000 a.C. Além disso, os métodos de datação usados para períodos anteriores a esse são bastante aproximados, com resultados muitas vezes conflitantes. Certamente o homem surgiu por volta de 10.000 a.C., considerando as pinturas rupestres, citadas acima, datadas corretamente; sendo muito difícil afirmar sua existência antes disso. c. Animais morreram antes da Queda? Para os defensores da “terra jovem”, essa questão não chega a ser crucial, pois os animais e os homens foram criados no sexto dia, havendo provavelmente um curto período de tempo até o ato do Pecado Original. Como consequência da Queda, a morte pode ter entrado no reino animal como ocorreu com a humanidade. Já para os defensores da “terra antiga” essa questão é extremamente importante. Existem na Terra milhares de fósseis aparentemente antigos, mais antigos que a existência do homem. Sendo isso verdade, os animais nunca tiveram a benção de viverem eternamente como os homens tiveram antes da Queda. Isso é bem provável porque é certo que havia morte no reino vegetal, pois Adão e Eva comiam frutos; e se os animais não morressem e se reproduzissem eternamente, a Terra logo estaria superpovoada e sem esperança de redução populacional. Vemos que em Gn. 2:17 o homem morreria se comesse do fruto proibido, e não que os animais passariam também a morrer. Em Rm. 5:12 notamos que a entrada da morte no mundo, pelo pecado, se refere aos homens, e não às plantas e aos animais. Embora não nos seja claro se os animais já foram criados sujeitos à morte e ao envelhecimento desde o início, isso é, sem dúvida, uma real possibilidade. d. Como entender a questão dos dinossauros? Sugestões científicas afirmam que os dinossauros desapareceram da face da Terra há mais de 65 milhões de anos, portanto milhões de anos antes do surgimento do homem. Já os adeptos da teoria da terra jovem alegam que os dinossauros foram criados no sexto dia, juntamente com o homem, e foram extintos muito provavelmente no dilúvio. Logicamente essa teoria dispensa todo método de datação atual que diverge de seu ponto de vista. De outro lado, alguns defensores da terra antiga alegam que esses animais estavam dentre os demais que foram levados por Deus a Adão para que este os nomeasse. Embora tenham sido criados na sexta era provavelmente foram criados muito antes do homem, e também devem ter desaparecido no dilúvio. Outros adeptos da terra antiga afirmam que os mesmos foram criados e morreram na sexta era antes da criação do homem e, portanto, nem foram levados por Deus a Adão para que este os nomeasse. Logicamente, tal ideia sugere que já havia morte entre os animais antes da Queda. e. Quanto tempo tinham os dias da criação? Os defensores da terra antiga propõem que os seis dias da criação se referem, na verdade, a seis longos períodos de tempo. Em favor dessa tese há a tradução da palavra hebraica yôm (dia), que muitas vezes não se refere a um período de 24 horas, mas a um longo período indeterminado. Há vários exemplos disso, a saber: “No dia em que o Senhor fez os céus” (Gn. 2:4) refere-se a toda obra da criação dos seis dias. Também: “no dia da ira de Deus” (Jó 20:28), “O Senhor te responda no dia da tribulação” (Sl. 20:1), “Se te mostras fraco no dia da angústia, a tua força é pequena” (Pr. 24:10) etc. O interessante é notar que, numa análise de concordância, esse é o sentido frequente da palavra dia no Antigo Testamento. Outro argumento a favor dessa tese é a existência de tantos eventos no sexto dia que um período de 24 horas seria em demasiado muito pouco para contemplá-los. No sexto dia (Gn. 1:24-31) há a criação do homem e da mulher; a benção de Deus sobre eles para que se multiplicassem e sujeitassem os peixes, as aves e os animais terrestres. Temos a criação de Adão, sua inserção no Jardim do Éden para cultivá-lo e guarda-lo, as orientações divinas a respeito da árvore do conhecimento do bem e do mal, a apresentação das centenas ou milhares de animais ao homem para que este lhes atribuísse nomes, o fato dele não encontrar alguém que lhe pudesse ser uma auxiliadora (sentir-se só no jardim), e o sono profundo que Deus impôs a Adão para que dele Deus tirasse uma costela e criasse Eva. Uma conclusão lógica leva ao leitor sugerir que 24 horas seriam insuficientes para todas essas ocorrências. Sendo assim, será que o próprio contexto não leva a entender dia como um período indeterminado de tempo? Sobre a expressão “houve tarde e manhã”, os adeptos da terra jovem dizem que suas repetidas citações afirmam que isso parece implicar uma sequencia de eventos que determina um dia normal de 24 horas. Contrapondo-se, os da teria da terra antiga dizem que essa expressão diz respeito não a um dia inteiro, e sim ao final de um e ao início de outro. Além do mais, nesse sentido os três primeiros dias da criação não poderiam ter tarde e manhã, pois o sol fora criado apenas no quarto dia. Somando-se a isso é notável que o sétimo dia não conclui com a frase “houve tarde e manha, o sétimo dia”, dando margem a entender que o sétimo dia talvez não tenha terminado e está em pleno curso; isto é, esse sétimo dia pode equivaler a um longo período de tempo como poderiam ter sido os dias anteriores. Já sobre a questão do terceiro e quarto dia, dificilmente seria possível o terceiro dia ter uma longa duração pois, sendo o dia da criação dos vegetais, o quarto dia (da criação do sol) deveria chegar brevemente de modo que a vegetação não se extinguisse, pois a mesma necessita da luz para produzir fotossíntese e sobreviver. Diante disso, os da terra antiga defendem que essa vegetação sobreviveu com a luz criada no primeiro dia, sendo essa a responsável pela sua manutenção durante milhões de anos. O problema dessa posição é aceitar a ideia de que Deus criou uma luz quase exatamente igual à luz do sol em termos de brilho e poder sem, no entanto, ser o próprio sol. Uma sugestão um tanto excêntrica. Muitos da teoria da terra jovem apelam para Êx. 20:8-11, onde diz que seis dias deveriam ser dedicados ao trabalho, mas o sétimo seria para o descanso, como fora na criação. Em contraposição, os da teoria da terra antiga afirmam que, embora nesse contexto dia seja de 24 horas, isso não é conclusivo, pois o povo hebreu sabia que na criação eram períodos indeterminados de tempo e que o autor do livro na verdade sugere um modelo de “seis por um”. Exemplo disso é Êx. 23:10-11, onde a terra seria trabalhada para produção durante seis anos, porém no sétimo daria a ela descanso para se recompor e para que os pobres e animais do campo dela se beneficiassem. Em Mc. 10:6, quando Jesus diz “Porém, desde o princípio da criação, Deus os fez homem e mulher”, dá a entender que eles não foram criados bilhões de anos depois do princípio da criação, mas no princípio desta. Embora esse argumento tenha alguma força, os defensores da teoria da terra antiga alegam que Jesus está se referindo ao conjunto de Gênesis 1-2 como “princípio da criação”, em contraposição com as leis mosaicas muito tempo depois criadas em que os fariseus estavam se baseando. 3.Teorias criacionistas da “terra antiga” a. Tese do dia-era Em favor dessa teoria, o cristão evangélico e geólogo profissional Davis A. Young demonstra que muitos geólogos cristãos concluíram que a Terra tem cerca de 4,5 bilhões de anos, baseados em aparentes esmagadoras provas. Mesmo que alguns proponentes da “terra jovem” aleguem que as técnicas de datação radiométrica são imprecisas por causa das mudanças que ocorreram na terra na época do dilúvio, Young observa que essa técnica aplicada nas rochas da lua, bem como nos meteoritos caídos na terra (e que não podem ter sido afetados pelo dilúvio de Noé), coincidem com muitos testes aplicados a vários materiais terrestres, e que os resultados apontam para uma idade entre 4,5 a 4,7 bilhões de anos. Embora essa concepção de dia-era seja atraente, ainda assim apresenta diversas dificuldades. A sequência de Gênesis 1 não coincide à explicação científica atual do desenvolvimento da vida, pois situa os seres marinhos (5º dia) antes das árvores (3º dia); os insetos e outros animais terrestres (6º dia), assim como os peixes (5º dia), antes das aves (5º dia). A maior dificuldade seria situar o sol, a lua e as estrelas (4º dia) milhões de anos depois da criação das plantas e das árvores (3º dia). Isso não faz sentido segundo a opinião científica corrente, que afirma que as estrelas foram formadas bem antes da Terra ou de qualquer ser vivo nela presente. Ademais, as plantas não crescem sem a luz do sol, e muitas delas (3º dia) dependem de aves e insetos voadores (5º dia) para o transporte de pólen; além de que muitas aves (5º dia) vivem de insetos rastejantes (6º dia). E, para finalizar, sem a luz do sol, as águas permaneceriam congeladas por milhões de anos. Com o intuito de conciliar as Escrituras com pensamento científico corrente, alguns afirmam que o sol, a lua e as estrelas foram criados no 1º dia (criação da luz), ou antes disso (“no princípio, criou Deus os céus e a terra” Gn. 1:1), e no 4º dia Deus os tornou visíveis. Mas isso não é convincente, pois no 4º dia ouve uma criação e não revelação desses elementos. Diante do citado acima, é possível uma modificação do dia-era em resposta a essa objeção. Os verbos em Gênesis 1:16 podem ser traduzidos como verbos no estado mais-que-perfeito, mudando a ideia corrente de algo que é feito (“fez”) para algo que fora feito (“fizera”): “Fizera Deus dois grandes luzeiros: o maior para governar o dia, e o menor para governar a noite; e fizera também as estrelas”. Gramaticalmente isso é possível. Sendo assim, isso implicaria que Deus havia feito o sol, a lua e as estrelas anteriormente (no versículo 1 ou no versículo 3), mas só no 4º dia foram vistos ou por aproximação à terra ou por mera revelação de Deus. Com respeito à luz para as plantas e o calor para as águas, já havia luz desde o 1º dia, ainda que não saibamos se era dos astros ou da glória de Deus (que substituirá o sol na Nova Jerusalém – Ap. 21:23). Nessa perspectiva, essa é uma defesa legítima e convincente para a tese do dia-era. b. Tese da estrutura literária Essa tese defende a ideia que Gênesis 1 não descreve os dias de forma cronologicamente sequencial, mas sim uma estrutura literária na qual os três primeiros dias se correspondam com os três últimos. Assim, o intuito do autor é retratar o quadro da criação sem se ater em tempos de 24 horas ou longos intervalos de tempo. Dias da formação 1º dia: separação de luz e trevas 2º dia: separação de firmamento e águas 3º dia: separação de terras secas e mares, plantas e árvores Nessa construção paralela, vemos que: a. Dias de preenchimento 4º dia: sol, lua e estrelas (luzes do céu) 5º dia: peixes e aves 6º dia: animais e homens No 1º dia Deus faz a separação de luz e trevas, e no 4º dia insere o sol a luz e as estrelas na luz e nas trevas.
. c. No 2º dia Deus separa o firmamento das águas, e no 5º dia insere os peixes nas águas e as aves nos céus. No 3º dia Deus separa a terra seca dos mares e faz a vegetação aflorar, e no 6º dia insere os animais e os homens na terra seca e os alimenta com a vegetação criada. Alguns sérios problemas, porém, podem ser levantados sobre essa questão, a saber: a. O sol, a lua e as estrelas criados no 4º dia não são inseridos no 1º dia, mas no firmamento criado no 2º dia. b. A preparação de um espaço para peixes e aves do 5º dia não vem do 2º dia, mas do 3º dia. Só no 3º dia Deus reúne as águas e as denomina “Mares”, e no 5º dia Ele ordena os peixes que preencham “as águas dos mares” (Gn 1:10). Nada é criado para habitar as “águas sobre o firmamento” e as aves (que inclui insetos voadores) voam no céu criado no 2º dia e vivem e se multiplicam na terra (porção seca) criada no 3º dia. c. d. No 6º dia nada é criado para preencher os mares reunidos no 3º dia. Além de uma simples estrutura literária, é evidente a sequência cronológica de eventos. Deus ordena ao homem que imite essa sequência de trabalho e descanso (Êx. 20:8-11). Se essa ordem não é considerada, então a ordem de imitá-lo seria enganosa, ou não faria sentido. 4.Teorias criacionistas da “terra jovem” a. Criação com aparência de antiguidade Os defensores dessa tese acreditam que a criação original fora feita com aparência de antiguidade desde o primeiro dia. Essa visão é denominada - 10
criacionismo maduro”. Sendo assim, Adão e Eva são exemplos disso. Provavelmente viram as estrelas na primeira noite de vida, pois Deus teria criado os astros com seus raios de luz já no lugar; enquanto as vegetações já estavam maduras a ponto de fornecer alimentos aos animais e ao casal humano. Seguindo esse raciocínio, as formações geológicas com aspecto de milhares de anos já foram criadas nessa configuração. O grande problema dessa tese é no tocante aos fósseis de dinossauros. Não seria lógico crer que Deus criou fósseis na Terra para dar a ela aspecto de antiguidade. Isso levaria o homem a se iludir com a verdadeira idade da Terra, fazendo com que ele visse Deus como um enganador. Além disso, seria preciso dizer que Deus criou esses animais já mortos e os considerou “muito bons”. Por que Deus deixaria tantas indicações de que a Terra tem por volta de 4,5 bilhões de anos se isso não é verdade? Concluindo, as posições a esse respeito só podem ser duas: ou os atuais métodos de datação estão incorretos em proporções colossais, ou esses métodos estão aproximadamente corretos e a Terra tem uma idade extremamente longa. b. A geologia do dilúvio Essa tese propõe que as tremendas forças naturais geradas pelo dilúvio (Gn. 6-9) alteraram significativamente a face da terra, provocando a formação de carvão e diamantes em função da pressão extremamente alta que a água exerceu sobre a terra. O dilúvio também teria depositado fósseis em camadas muitos espessas de sedimentos por toda a terra. Essa concepção também pode ser chamada de neocatastrofismo, pois é atribuída ao dilúvio a grande parte das alterações geológicas presentes no planeta. Por mais que o dilúvio tenha sido mundial, é muito difícil provar que ele foi o responsável pela grande presença de sedimentação, erupções vulcânicas, movimentos de geleiras, deslocamentos continentais e por aí afora. Por outro lado, é de fácil refutação a teoria da evolução darwiniana por meio de livros que registram 130 anos de objeções a essa crença. Objeções essas levantadas por um grande número considerável de biólogos, bioquímicos, zoólogos, antropólogos e paleontólogos, tanto cristãos quanto não cristãos, pois essa teoria tem sérias dificuldades em explicar o mundo observado. - 11
. Principais diferenças das teorias Terra Antiga Longos períodos indeterminados para cada dia Criação processual Morte no reino animal antes da Queda Sol necessário para se demarcar cada dia Terra Jovem 24 horas para cada dia Criação madura Morte no reino animal após a Queda “Luz” e “trevas” demarcam os dias antes do sol 6. Conclusão Por um lado, é evidente que Deus tanto pode como cria instantaneamente a partir de sua Palavra. Que a expressão “tarde e manhã” e a numeração corrida dos dias pesam para uma interpretação de dias de 24 horas. E aparentemente não há o porquê acreditar que Deus tardaria tanto tempo para criar o homem após os demais elementos de sua criação. Mas também há bons argumentos que pesam para o outro lado... O importante na relação entre Escrituras e descobertas científicas é saber que, quando há aparentes divergências entre elas, ou é porque a ciência ainda não está madura em seus argumentos, ou a interpretação bíblica está equivocada. Em ambas têm sido feitas constantes releituras que tem convergido a um ponto comum ao longo da história. É natural que seja assim, pois o Criador que nos deu Sua Palavra também foi o Criador de toda matéria existente. Para Aquele que vive para sempre, para quem um “dia é como mil anos, e mil anos, como um dia” 2Pe. 3:8, talvez 15 bilhões de anos seja um bom período para se preparar o universo para a chegada do homem, e 4,5 bilhões de - 12
anos para preparar a terra. A indizível antiguidade do universo serviria então como latente lembrança da excelsa natureza do Criador e da sua divina eternidade, assim como sua onipresença e onipotência em um universo tão absurdamente grande! Portanto, é possível que Deus tenha preferido ocultar as informações necessárias para a conclusão do tempo da criação, de modo que confiemos nele apesar da nossa finita compreensão de seus desígnios; e que sejamos tolerantes com aqueles que possuem opinião divergente à nossa.
7.Referências Bibligráficas GRUDEM, W1. Teologia Sistemática Grudem. São Paulo: Editora Vida Nova, 2011. 198246 p. Programa Vejam só. A criação, 7 dias ou 7 eras? <http://www.youtube.com/watch?v=3E_MfaXOBPQ&feature=plcp>
Mesmo criacionistas e proponentes do Design inteligente zombam das alegações dos terraplanistas. Mas será que eles poderiam realmente fazer isto? Se você é criacionista e ri dos argumentos terraplanistas, cuidado! Vocês não são tão diferentes quanto imaginam. Se o critério religioso é o que pauta suas asserções, lembre-se que: “Não julgueis, para que não sejais julgados. Porque com o juízo com que julgardes sereis julgados, e com a medida com que tiverdes medido vos hão de medir a vós”.
Terra-plana com 6 mil anos de idade?
Do ponto de vista epistemológico, terra-plana e criacionismo/design inteligente não são tão diferentes quanto pensamos. De fato, são mais próximos do que poderíamos imaginar. Estruturalmente compartilham exatamente as mesmas bases teológicas, apresentam um discurso de negação da ciência concomitantemente a ausência de critério de verificação das afirmações apresentadas.
O fato do terra-planismo ser observado como uma bizarrice pseudocientífica que condecora grupos propagadores de argumentos irracionais e não-empíricos não os torna tão diferente do discurso criacionista que defende uma terra-jovem com apenas 6 mil anos, um casal quase perfeito pós-Éden criador da espécie humana, um grande caixote de madeira salvou todas espécies do planeta ou que o ser humano recolonizou o planeta a partir de 4 famílias e uma nova leva de animais.
De fato, assim como os criacionistas da terra-jovem, os terraplanistas defendem suas asserções a partir de critérios bíblicos e não científicos.
O discurso bizarro do terra-planismo não é tão diferente do movimento criacionista/design inteligente. Terra-planismo e criacionismo compartilham exatamente a mesma essência pseudocientífica: negar ciência básica, selecionar evidências, criar métodos internos e alternativos de pregação de suas crenças pessoais religiosas, além de estruturar um argumento conspiracionista.
Pseudociência é qualquer tipo de informação que se apresenta como sendo baseada em fatos científicos, como tendo um alto padrão de conhecimento, mas que não resulta da aplicação de métodos científicos. Muitas vezes, junto a pseudociência vem a anti-ciência: refere-se a fatores individuais ou institucionais que se posicionam negando evidências científicas.
Publicidade
Há muitos motivos porque as pessoas abraçam as pseudociências, e com a ajuda da internet as adoções deixaram de ser individuais e passaram a formar convenções, comunidades em redes sociais onde a troca de informações se tornou mais eficiente.
Na medida em que a internet facilitou o acesso a informação de qualidade, a divulgação, popularização de conceitos e a artigos científicos, também facilitou a organização de grupos anti-ciência e pseudocientíficos que recrutam pessoas a partir de asserções como o criacionismo, terra-plana, homeopatia e tantas outras.
Entre as causas que leva as pessoas a adotarem pseudociências está a falta de pensamento crítico e a queda do hábito da leitura de qualidade. As pessoas não se preocupam mais em ler o que um cientista tem a dizer. Elas têm se focado em leituras que são confortáveis, sem o brio que os desafiem. Acabam alimentando um analfabetismo científico que associado a ideia de que a crença é mais importante do que o saber, promovendo assim o pensamento pseudocientífico.
Junta a este modus operandi o medo da ciência ou a educação recebida. As pessoas não praticam o criticismo verdadeiro buscando ver se o pilar de sustentação de uma esse é sustentável. Existe uma tendência atual das pessoas questionarem tudo o que não esta alinhado com suas crenças. O desalinhamento a crença leva a negação da ciência e ao pseudo-criticismo. Por esta razão a ciência tem sido questionada, por não estar alinhada com crenças individuais. A crítica a educação é direcionada devido se ensinar algo que supostamente se choca com uma crença determinada. Este tipo de pensamento ocorre não somente com pseudociências, mas mesmo com posições religiosas ou mesmo político/ideológicas.
O problema da falta de informação é opcional, pois com a facilidade da internet é possível checar a veracidade das informações. Portanto, informar-se sempre com estudos científicos antes de tomar qualquer decisão (ou entrar em um debate) ou até consultar com um profissional – que não deixa de ser um cientista – é o que temos que fazer se não quisermos acabar nas garras do charlatanismo.
Outro problema é que pseudociências são fáceis de colocar em prática e dão um retorno rápido, um falso positivo. Um dos exemplos mais interessantes de falsos positivos vem da homeopatia. As pessoas realmente acreditam que a administração do produto homeopático esta relacionada com uma cura, mas cientificamente não há nada que sustente a suposta correlação. Não há a descrição de como o elemento administrado age de tal forma a proporcionar uma cura – até porque, as concentrações dos componentes na homeopatia são mínimas. Assim, as pessoas acreditam que a administração do produto e a cura estão relacionadas, quando na realidade a cura pode advir de outras variáveis que o paciente não introduziu na equação ao avaliar o próprio caso. O problema é que muitas vezes o falso positivo mascara doenças que são muito graves: como um recente caso onde uma criança morreu vítima de uma infecção no ouvido (otite) porque fez uso de produto homeopático e não um medicamento cientificamente eficaz. Como resultado, uma simples otite custou a vida de uma criança.
Confortabilidade é outro critério que faz as pessoas adotarem pseudociências. Colocar em prática diferentes estratégias ou técnicas comprovadas cientificamente são nada agradáveis. Qualquer paciente diagnosticado com câncer descreve com clareza os incômodos e dificuldades que uma quimioterapia traz. No entanto, este é o procedimento em que há chances maiores de fazer a doença desaparecer. As pseudociências não farão o paciente experimentar frustrações e tão pouco irão te expor ao medo. Como consequência, as pessoas ficam dependentes desta postura porque ela é cômoda, sendo compreendida com a causa e sem sair da zona de conforto.
Publicidade
A pseudociência ajuda também a aliviar a dissonância cognitiva: a contradição que existe às vezes entre o que pensamos e o que realmente fazemos. Enquanto a tolerância pressupõe parte da comunicação e a aceitação, convivência e suporta idéias opostas a sua – ainda que haja discordância quanto a manifestação alheia -, aceita-la é uma virtude moral. A intolerância é o que os psicólogos chamam de dissonância cognitiva e estabelece a tendência de evitar conceitos que não estejam de acordo com uma concepção pessoal. A tolerância é, então, uma forma de superar a dissonância cognitiva: uma resistência ao ódio sobre o que não está de acordo com seus pressupostos – sendo este ódio uma forma de tristeza que se estabelece seguido de sua causa. O ódio não é uma virtude moral e sim sentimento emoção irracional que se impõem a forma de pensar desalinhada (saiba mais aqui).
Na dissonância também as pessoas buscam confirmação de suas crenças e não a busca da verdade ou de uma solução a um problema.
A crença nas pseudociências não é só devido à dissonância cognitiva ou à comodidade. O desespero que algumas pessoas sofrem de não obter uma cura para sua doença ou para a de algum familiar faz com que recorram a aparentes soluções alternativas. Dois exemplos recentes que tiveram grande comoção popular foram: a morte do jornalista Marcelo Rezende que correu para métodos alternativos rejeitando o tratamento cientificamente comprovado; e a grande corrida que se deu atrás da fosfoetanolamina.
Quando uma pessoa já não tem nada a perder, ela se agarra no que puder – quase sem se importar com as consequências – o que é esperado diante do desespero.
No entanto, a ciência é a melhor ferramenta atual que dispomos capaz de dar resposta satisfatórias aos problemas que encontramos; sejam eles problemas de índole psicológica ou física, e se em algum momento ela estiver limitada, é porque até agora não existe maneira de solucionar a questão.
Muitas pseudociências compartilham elementos em comum e algumas até congregam diversas pseudociências; um exemplo disto é a ufologia. Nela encontramos diversos discursos presentes em outras pseudociências: criptozoologia (chupa-cabras), pseudo-arqueologia (pirâmides egípcias feitas por alienígenas) teorias de conspiração (maçonaria, reptilianos e illuminati), criação da humanidade por extraterrestres (design inteligente) entre tantas outras ideias.
No caso do criacionismo e do terraplanismo há uma mesma fonte que serve de inspiração para a defesa de suas teses, a bíblia. Muitas vezes lida de forma literal (ignorando o contexto sócio/histórico/cultural em que foi escrita) os proponentes defendem tanto uma terra-jovem quando a Terra-plana.
Para calcular a idade da terra, os criacionistas calculam as genealogias dos personagens citados em Gênesis 5 e 11. Para defender uma terra plana, usam diversos versículos bíblicos:
“Jó 22:14 – “Grossas nuvens o encobrem, de modo que não pode ver; e ele passeia em volta da abóbada do céu”.
Amós 9:6 – “Ele é o que edifica as suas câmaras no céu, e funda sobre a terra a sua abóbada; que chama as águas do mar, e as derrama sobre a terra; o Senhor é o seu nome”.
Daniel 4: 10-11 – “Eram assim as visões da minha cabeça, estando eu na minha cama: eu olhava, e eis uma árvore no meio da terra, e grande era a sua altura; crescia a árvore, e se fazia forte, de maneira que a sua altura chegava até o céu, e era vista até os confins da terra”.
Lucas 4:5 – “Então o Diabo, levando-o a um lugar elevado, mostrou-lhe num relance todos os reinos do mundo”
Eclesiastes 1:5 – “O sol nasce, e o sol se põe, e corre de volta ao seu lugar donde nasce”
Publicidade
Assim, as defesas ditas “científicas” por ambos os grupos se pautam em leituras literais da bíblia, negando as constatações empíricas a respeito da transmutação das espécies, aspectos básicos da biologia molecular e genética, métodos atuais e confiáveis de datações radiométrica, as observações astronômicas e astrofísicas para fundamentar um conceito dito “científico” usando métodos alternativos para dar uma travestida de ciência em suas crenças.
Aquilo que que foi alegado (especialmente aspectos geológicos) e poderia eventualmente ser verificado cientificamente dentro do criacionismo da terra-jovem se mostrou falso e foi abandonado como tese científica há décadas. Na época de Darwin a grande maioria dos pesquisadores que aceitavam que a Terra era uma criação divina não aceitava uma terra de 6 mil anos. A popularização deste conceito falacioso (pautado os cálculos informais do arcebispo James Ussher) começaram com o adventista George McCready Price e posteriormente com Henry M. Morris.
As alegações de que a Terra tinha uma forma plana foram abandonadas há milênios (graças a Erastótenes e Aristóteles) com a observação de sombras projetadas sob o solo em locais distantes do planeta e pela constatação em eclipses. Mesmo o geocentrismo, posição em que via a terra como centro geográfico do universo foi abandonada há pelo menos 475 anos graças aos trabalhos de Copérnico.
Porém, da mesma forma com que criacionistas negam o que se tornou evidente a partir dos cálculos de decaimento radioativo das rochas magmáticas ou as evidências genéticas da evolução, a terra-plana nega as imagens coletadas por agências espaciais.
O registro fóssil é bastante preciso. Se a meia vida do carbono é de meros 5.730 mil anos e é possível datar registros da arqueologia bíblica porque não seria no caso de outros elementos de meia-vida maiores?
É possível usar outros elementos cuja meia-vida seja maior, por exemplo, isótopos de Plutônio cujo decaimento radioativo é de 24.360 anos. Isso ocorre também com outros elementos de meia-vida muito maior como o Urânio238 que decai para Chumbo206 em 4,5 bilhões de anos. O método urânio/chumbo e potássio/argônio são os elementos utilizados para datar fósseis que viveram em longa escala de tempo geológico. Assim, a datação por radioisótopos pode ser tirada não por um único elemento, mas vários, sendo um utilizado para calibrar o outro.
O formato da terra é mais do que auto-evidente e pode ser visto desde um simples eclipse, a uma viagem de avião, o acompanhamento da ISS-Detector que envia imagens 24 horas/dia em tempo real para aplicativos de celular ao voar sobre a terra. O modelo heliocentrismo explica melhor uma serie de fenômenos astronômicos que o modelo ptolomaico não explicava. Ele explica os equinócios e solstícios e as estações do ano. Além, claro, das imagens tiradas de sondas espaciais em outros planetas que investigam as condições geológicas de marte, as eventuais fotos do espaço retiradas do planeta terra, o funcionamento de aparelhos de GPS.
No Brasil há dois representantes do terraplanismo: Bruno Alves que é presidente do Centro de Pesquisas Terra Plana Brasil e Samuel Trovão que é autor da página “A Terra é Plana” (são pseudônimos).
Segundo eles, parte significativa dos terraplanistas é criacionista e categoricamente negam a teoria da evolução proposta por Darwin e explicam a origem do planeta e dos homens como criação divina. O que revela mais um indicio da igualdade na forma a qual ambos os movimentos atuam. Além disto, assim como criacionistas que acusam o ambiente acadêmico de obscurecer o mundo da verdade e impedir que ela revele uma criação divina, o terraplanismo compartilha da mesma teoria de conspiração.
Publicidade
Para Samuel Trovão, há uma motivação financeira e ateia por trás do “sistema”, especialmente a NASA (BBC, 2017).
A moda da vez
Durante duas décadas, a narrativa de abdução alienígena foi alimentada por filmes de ficção científica como “Contatos Imediatos do Terceiro Grau”, “Intruders”, “Arquivo-X” (mais recentemente em filmes do “Aliens” e “Predador”) e reportagens sem fôlego de incidentes misteriosos. Em 1966, uma pesquisa Gallup perguntou aos americanos se eles já tinham visto um OVNI; 5% disseram que tinham, mas no sentido literal de um objeto voador não identificado – apenas 7% dos americanos acreditavam que os UFOs eram do espaço exterior. Em 1986, uma pesquisa de opinião pública descobriu que 43% dos entrevistados concordaram com a afirmação: “É provável que alguns dos UFOs que foram relatados sejam realmente veículos espaciais de outras civilizações”.
Nada diferente com o Design inteligente, criacionismo ou a terra-plana. Terraplanismo é a “sensação” do momento. Como sabemos disto? Bem, a internet dá um aviso quanto a isto.
Uma pesquisa de 2011 da Gallup afirmou que cerca de 30% dos adultos norte-americanos interpretam a bíblia literalmente.
Existe uma ferramenta na Google chamada “Google Trends” que mostra os termos mais populares buscados em um passado recente. A ferramenta apresenta gráficos com a frequência em que um termo particular é procurado em várias regiões do mundo, e em vários idiomas. Com uma pesquisa simples nesta ferramenta podemos saber entre 2004 e 2017 quais termos foram os temas mais procurados no Brasil e no mundo.
No mundo todo, entre 2004 e 2015 as pessoas pesquisavam mais sobre criacionismo do que Terra-plana. Somente a partir de 2015 a ideia da terraplana começa a ficar popular:
No Brasil a mesma tendência ocorre no mesmo período:
Publicidade
Quanto as pesquisas sobre design inteligente no mundo, chamou muita atenção no ano de 2005, devido ao julgamento de Dover. Nele, Michael Behe foi escrutinado diante do júri sobre a validade de sua tese sobre complexidade irredutível (considerada refutada) após uma tentativa de se inserir o termo design inteligente como alternativa a evolução biológica, mascarando seu caráter criacionista:
Quando comparamos Terra-plana com design inteligente notamos novamente que a partir de 2015 a ideia terraplanista começa a se popularizar e é mais pesquisada que o termo design: inteligente:
Em 2005 o Brasil também pesquisou mais sobre o design inteligente tamanha foi a repercussão do julgamento de Dover.
No ano de 2017 as buscas por Terra-plana já superavam pesquisas sobre criacionismo e design inteligente em todo o mundo (inclusive Brasil):
Publicidade
Quando há uma popularização da pseudociência, então parte das pessoas passam a aceitar seus termos. Infelizmente, se compararmos “terraplanismo” com “criacionismo” e “evolução”, a ideia de Darwin disparadamente é mais pesquisada, porém, o Google Trends não faz uma distinção entre a busca por conhecimento e informação sobre a teoria da evolução e as pessoas que escrevem textos espalhando conceitos errados e denegrindo a teoria da evolução.
É possível que haja mais sites falando mau da evolução do que falando bem sobre o criacionismo, dado que a maioria das argumentações criacionistas provém negação da evolução.
No ano de 2017 o terraplanismo se tornou mais popular nas pesquisas do Google do que o criacionismo no mundo todo:
No Brasil temos fenômenos interessantes acontecendo. Há páginas pseudocientíficas em redes sociais que estão ampliando seu “cardápio” e absorvendo tendências de outras. Assim como líderes terraplanistas informaram que a grande maioria de seus representantes são criacionistas, há uma movimentação de proponentes do design inteligente aderindo ao geocentrismo e ao terraplanismo – alguns formados em física e negando a gravidade.
Quando há a popularização destas pseudociências e elas se tornam banalizadas, passam a ser aceitas por outras pseudociências.
Existia uma resistência muito grande do design inteligente se assumir como criacionistas, hoje a grande maioria dos criacionistas defende o deus cristão como sinônimo do designer inteligente e muitos proponentes do design inteligente (seja internacionalmente ou no Brasil) que adotam posturas cristãs assumidamente criacionistas (adotando a Terra-Jovem e até Terra-Plana).
William Dembsky que é assumidamente cristão ortodoxo praticante é autor de vários livros sobre o design inteligente, teologia foi professor de Teologia e Ciência no Southern Baptist Theological Seminary em Louisville, Kentucky, bem como o primeiro diretor do Centro para Teologia e Ciência da escola e membro do Discovery Institute. Na página do Discovery Institute onde há um de seus textos omitiram sua formação cristã ortodoxa e referiram-se a ele apenas como “Professor de teologia e ciência”. O Discovery Institute tenda blindar-se do estigma criacionista, mas na prática seus membros escancaram a formação cristã e sua definição de design inteligente como sendo o deus do cristianismo.
No Brasil temos Marcos Eberlin professor na Unicamp que defende uma Terra-Jovem e é organizador de palestras criacionistas e do design inteligente. Deixando claro a relação entre os dois movimentos e mostrando que formam apenas uma linha de pensamento teológica. Ao defender uma Terra-Jovem, defende uma leitura literal da bíblia, do conto de noé e organiza os seminários como presidente do grupo do design inteligente no Brasil.
Publicidade
Temos também o “Inteligentista”, uma página que promove o design inteligente e que tem adotado posturas com tendências terraplanistas:
Em alguns “hangouts” terraplanistas apareceram também proponentes defendendo que a Terraiplana é fruto de um designer inteligente.
Publicidade
Esta incorporação entre pseudociências é um fenômeno comum para alguns segmentos (como a ufologia, citada acima), especialmente quando partilham uma mesma fonte de referências e inspiração.
Não se espera que todos os proponentes do design inlteigente sejam criacionistas e/ou terraplanistas, mas a partir da popularização do terraplanismo e de outras posturas anti-científicas fusões ocorreram. A tendência é que surjam: 1) pseudociências cada vêz mais bizarras, 2) uma segregação da pseudociência – como ocorreu ao longo da história do criacionismo no século XX quando não havia acordo entre os próprios membros a respeito da idade da terra, do universo e a idade em que o homem foi criado (Veja mais aqui), 3) a rejeição delas por alguns segmentos cristãos visando um cristianismo despoluído destes termos.
Independente de como se dará a movimentação, algo interessante está ocorrendo e talvez fosse interessante um estudo sociológico a respeito destas tendências.
Um jovem carpinteiro, que aparentava ter pouco mais do que vinte anos, e que havia recentemente iniciado um trabalho na escadaria do abrigo em minha casa, olhou para mim com receio. “Tudo bem, ” disse ele, “quantos anos vocês acham que a Terra tem? ”
Eu sabia que ele não teve uma base doutrinal Cristã, nada conhecia sobre a bíblia, e tinha sido “doutrinado na crença na teoria da evolução” ao longo de sua vida estudantil. Eu tinha apenas dito a ele que eu trabalhava para um grupo criacionista, e ele ficou curioso. Mas quando ele me perguntou sobre a idade da Terra, eu disse para mim mesmo, “Uh oh, aí vamos nós. ”
Previamente consciente sobre como as pessoas na nossa cultura são condicionadas a crer que a Terra possui milhões de anos de idade, eu me preparei para a rejeição frequente quando eu disse que eu realmente acreditava que “A Terra tem apenas alguns milhares de anos de idade — menos do que 10.000, provavelmente em torno de 6.000 anos. ”
Para minha surpresa ele falou, “Isso é bom. ”
“Por quê? ” Eu perguntei, impressionado.
“Porque, ” ele respondeu, “Eu sempre achei que ela parecesse jovem. ”
Dias depois, enquanto eu refletia sobre este acontecimento, eu percebi que minha própria reação (isso me ocorreu de repente) mostrou que, apesar da minha convicção sólida no relato bíblico, e ainda que existam evidências consistentes que apoiam o modelo criacionista, eu havia me tornado inconscientemente influenciado pela noção de que a Terra, apesar de jovem, parece antiga.
De fato, existem vários crentes na Bíblia que pensam dessa forma. Mesmo na “genuína” literatura criacionista existem algumas tentativas de explicar porque a Terra tem uma “aparência de idade avançada” - em outras palavras, parece antiga.
Porém, é fácil demonstrar que isso não é verdade. Mesmo que a Terra tivesse milhões ou bilhões de anos, ninguém poderia dizer que ela “parece antiga” - ou que apenas uma olhada para as camadas nas rochas e desfiladeiros fosse suficiente para declarar, “Terra antiga! ”. Para justificar esta afirmação, não é nem preciso abordar referências sofisticadas dos filósofos modernos da ciência, que concordam que os fatos não “falam por si mesmos”. Tudo o que precisamos fazer é nos lembrar de que algumas das maiores mentes que já existiram, os pais da ciência moderna – Newton, por exemplo – olharam para a mesma Terra que nós vemos hoje, e não “viram” milhões de anos de idade. Assim como o jovem carpinteiro, um genuíno pensador independente, que tem resistido a doutrinação de nossos tempos, da mesma forma, não “viu” os milhões de anos.
A Terra somente “aparenta ser antiga”, porque todos nós aceitamos de maneira inconsciente o atual sistema de crenças ao avaliar a evidência. Em outras palavras, pode-se dizer que a Terra não aparenta ser antiga nem jovem – tudo depende dos “óculos” pelos quais alguém está vendo (interpretando) a evidência. Ou, abordando de outra forma, é também válido dizer que, olhando para o mundo através das “lentes” da Bíblia (ao invés da lente humanística e evolutiva da nossa cultura), ela “parece jovem” (isto é, milhares, não bilhões de anos de idade).
Resumindo apenas algumas das evidências que são consistentes com um mundo jovem:
1) Os continentes estão erodindo muito rapidamente.
Se os continentes tivessem bilhões de anos de idade, eles já teriam sido completamente erodidos pelo vento e pela água por diversas vezes na atual taxa de erosão. O soerguimento de montanhas e outros processos de “reciclagem” não são nem de perto capazes de compensar isso (1).
2) Não existe hélio suficiente na atmosfera.
Hélio é um gás leve, formado durante o decaimento alfa-radioativo em minerais rochosos. Ele é liberado e entra na atmosfera mais rápido do que consegue escapar da gravidade terrestre (2). Mesmo se Deus tivesse criado a Terra com nenhuma quantidade inicial de hélio, a pequena quantidade na atmosfera precisaria de em torno de dois milhões de anos, no máximo, para acumular. Este tempo é bem menor do que os 3 bilhões de anos de idade atribuídos a atmosfera.
3) Muitos fósseis indicam uma formação rápida, em processos que não requerem longos períodos de tempo.
a) Fósseis comuns.
Existem bilhões de fósseis de peixes em camadas de rocha ao redor do mundo, os quais são incrivelmente bem preservados. Frequentemente, estes fósseis indicam nadadeiras intactas, e frequentemente escamas, o que indica que eles foram enterrados rapidamente e as rochas foram endurecidas num curto período de tempo. No presente, peixes mortos sofrem deterioração o tempo todo. Mesmo num ambiente líquido com condições ideais, ou seja, frio, estéril, livre de predadores e sem oxigênio, estes peixes descartados ficam encharcados de água e se deterioram em questão de semanas (3). Um peixe enterrado rapidamente por sedimento, e que não endurece dentro de poucas semanas, vai ainda, pelo menos, sofrer decomposiçãodevido a ação de oxigênio e bactérias, de forma que as partes mais sensíveis de sua estrutura, tais como nadadeiras, escamas, etc., não poderiam ser preservados. O rápido soterramento desencadeado pelos vários deslocamentos de terra que ocorreram debaixo d'água (correntes de turbidez) e outros processos de sedimentação que ocorreram simultaneamente ao Diluvio de Noé, explicariam não apenas o excelente estado de preservação dos fósseis, mas também o porquê de estes serem encontrados em enormes depósitos, frequentemente cobrindo milhares de quilômetros quadrados.
b) Exemplos especiais.
Diversas vezes nós publicamos nesta revista, exemplos que são particularmente espetaculares, como a mãe ictiossaurea, aparentemente “congelada no tempo” no processo de parto. Outros exemplos são os fósseis de peixes já localizados, que estavam engolindo outros peixes ou com algum peixe ainda não digerido, de forma intacta, dentro de seus estômagos (procure na revista Creation por fotos – nós tivemos apenas uma única permissão para algumas das fotos). Link do artigo original, essa informação pode tirar a atenção do leitor porque ele lembra que é uma tradução)
4) Muitos processos, sobre os quais nós somos ensinados que precisariam de milhões de anos, definitivamente não precisam de períodos de tempo tão grandes para ocorrer.
a) Formação de carvão.
O Argonne National Laboratories demonstrou que o processo de aquecimento da madeira (lignina, um importante componente) junto com argila, sob uma temperatura de 150c (ainda que frio geologicamente), por um período de 4 a 36 semanas, em um tubo selado de quartzo com nenhuma pressão adicionada, é capaz de formar um carvão negro de alto nível (4).
b) Estalactites e estalagmites.
Muitos exemplos já mencionados na revista Creation mostram que as decorações de caverna são formadas rapidamente sob condições ideais. A foto (na revista Creation) é de um túnel em uma mina localizada em Mt Isa, Queensland, Austrália. O túnel tinha apenas 50 anos de idade quando a foto foi tirada.
c) Opalas
Apesar do ensino comum de que são necessários milhões de anos para formar a opala, o pesquisador Australiano Len Cram possui uma opala crescendo em seu laboratório doméstico já por vários anos. Sua opala é indistinguível daquela garimpada no campo, quando vista através de um microscópio eletrônico. Ele foi premiado com um doutorado honorário (por uma universidade secular) devido à sua pesquisa. Tudo o que ele faz é misturar os elementos químicos corretos – sem calor, sem pressão, e definitivamente sem os milhões de anos alegados.
d) Formação de fósseis e rochas.
Cientistas já sabem há muito tempo que o processo de petrificação pode ocorrer rapidamente. Um exemplo é o chapéu-coco “petrificado” que fica em mostra no “The Buried Village”, um museu aberto dedicado à erupção do Monte Tarawera, na Nova Zelândia. A foto (foto 1) mostra um rolo de cercas de arame de tamanho 8, o qual, depois de apenas 20 anos, ficou envolto em arenito sólido, contendo centenas de conchas fósseis. Madeira petrificada também pode se formar rapidamente sob as condições adequadas – um desses processos chegou até a ser patenteado. (5)
Recentemente, foi mostrado que os famosos níveis múltiplos de “florestas fósseis”, localizados no Parque Nacional Yellowstone, foram formados em apenas um evento de atividade vulcânica (6). Sucessivos fluxos de lama transportaram árvores em posição vertical (com exceção da maioria de suas raízes e galhos), de modo que os seus anéis de árvore confirmam seu crescimento contemporâneo.
5) Os oceanos não são suficientemente salgados
Todos os anos, rios e correntes subterrâneas de todo o planeta depositam milhões de toneladas de sal nos oceanos, e apenas uma pequena parte disso retorna à terra seca. Usando as suposições mais favoráveis que justifiquem longas eras para o planeta, a idade máxima absoluta dos oceanos é apenas uma fração pequena dos bilhões de anos de idade já assumidos (7).
Apesar de alguns inevitáveis problemas ainda sem solução num assunto tão complexo (veja abaixo o porquê da datação radiométrica não ser infalível), ainda assim não é difícil estabelecer que:
i) É razoável crer no que o Criador do mundo diz em sua Palavra, a Bíblia, sobre o mundo ter milhares, não milhões ou bilhões de anos de idade.
ii) O fato de que a Terra não aparenta ser antiga e nem jovem – tudo isso depende dos “óculos” através dos quais a evidência é interpretada. Todos nós precisamos estar conscientes do quanto fomos condicionados pela nossa cultura a “ver” aspectos geológicos como “se fossem antigos”.
A Terraéantiga!
Mas vamos exercitar nossas mentes ainda mais. É importante a forma como usamos palavras tais como “antiga” ou “jovem” para a idade da Terra. Eu na verdade penso que a Terra é antiga – muito antiga. Ela tem milhares de anos de idade – ao todo são seis mil. Essa interpretação te surpreende? Meu objetivo é nos fazer pensar sobre o quanto nós temos aceitado um condicionamento cultural ao considerar que mil anos é um período curto de tempo, e que “antigo” sempre significa milhões ou bilhões de anos.
Por essa razão, muitos turistas, quando conhecem o “moinho d'água petrificado” no Oeste da Austrália, ficam extasiados. “Foram necessários apenas sessenta anos para cobrir esta coisa com rocha sólida? ” Sessenta anos, com água transportando calcário dissolvido gotejando dia e noite num objeto, é, na verdade, um período de tempo incrivelmente longo. É a nossa cultura, mergulhada no mito de “tempo profundo”, que nos doutrinou na crença de que um milhão de anos (na realidade, um período de tempo inimaginável) pode ser comparado a “ontem”.
Nós precisamos resgatar nossos conceitos dessa capataz da filosofia secular (veja Colossenses… 2 Coríntios 10:4-5)! A Bíblia discorda dessa forma de interpretação. 1 Crônicas 4:22 se refere aos registros humanos como “antigos”. Mas, é evidente que, do ponto de vista genealógico bíblico, na época em que foi escrito, “antigo” significava não mais do que 4000 anos – certamente não bilhões. Esta compreensão coloca as coisas em perspectiva quando as Escrituras também falam sobre “montanhas antigas” (Deuteronômio 33:15), ou sobre um “antigo” rio (Juízes 5:21) ou ainda quando diz “antiguidade” (Isaías 46:10). Comparando com a “expectativa de vida” de uma pessoa, tais coisas são de fato antigas – milhares de anos de idade. A ideia de “milhões de anos” não é encontrada na Bíblia.
Além disso, a crença nos tradicionais bilhões de anos de idade para o tempo gasto durante a Criação (algo muito comum entre líderes evangélicos), enfraquece o testemunho de Jesus Cristo, o Criador do mundo – veja a direita. Como agravante, essa doutrina coloca a lógica do Evangelho completamente ao avesso, ao colocar os efeitos da Maldição antes da Queda. De acordo com essa crença, morte, espinhos, câncer, sofrimento e derramamento de sangue que teriam ocorrido milhões de anos antes do pecado devem ser aceitos, se os fósseis foram depositados antes dos seres humanos terem sido criados. Esse pensamento distorce a Bíblia, tornando-a contraditória, porque isso colocaria morte, o “último inimigo” (1 Coríntios 15:26) numa Criação que Deus define como “muito boa” (Gênesis 1:31).
Então, da próxima vez que você ouvir alguém dizer que a Terra “parece antiga”, você pode discordar respeitosamente – a Terra pode parecer ter “qualquer idade”, dependendo de como você interpreta a evidência real através do sistema de crenças que você já possui.
E se alguém disser que a Terra é velha – você pode concordar com essa pessoa, contanto que você defina aquilo que você quer dizer como velha – a Terra realmente é velha, bastante velha, antigade fato. Por volta de seis milênios completos já se passaram desde que Deus criou o mundo (um mundo perfeito, agora corrupto devido ao pecado e à Maldição) em seis dias com duração aproximada de 24 horas.
Como explicar as medidas de datação radiométrica
Fatos:
1. TODOS os métodos de datação, incluindo aqueles que indicam uma idade de milhares, em vez de bilhões de anos, são baseados em pressuposições – crenças - não importa o quão preciso estes métodos possam parecer, não é possível comprovar essas crenças, somente aceitá-las pela fé. Por exemplo:
Presumir qual era a quantidade inicial presente de um determinado elemento químico em particular;
Presumir que não houve vazamento destes elementos químicos para dentro ou fora da rocha devido a ação da água;
Presumir que as taxas de decaimento radioativo permaneceram as mesmas ao longo debilhões de anos, dentre outros.
2. Laboratórios de “datação” radiométrica não calculam idade – eles simplesmente medem a quantidade de elementos químicos, e a partir disso inferem a idade, baseados nas suposições básicas.
3. Quando as suposições são testadas por medições feitas em rochas de idade conhecida – por exemplo, ascorrentezas de lava de idade recente – elas muitas vezes falham de forma gritante.
4. Objetos que possuem uma mesma idade, quando testados por meio de diferentes métodos, têm apresentado “idades” que variam num um fator de 1000.
5. A razão pela qual parece haver uma aparente consistência na datação radiométrica é explicada parcialmente devido à tendência comum de que sejam publicados apenas dados que sejam consistentes com a “idade evolutiva”, supostamente já “estabelecida” pelos fósseis. Muitos laboratórios de datação radiométrica preferem inclusive conhecer previamente qual a idade aguardada para o objeto. É difícil encontrar uma razão para isso uma vez que esses métodos são supostamente “absolutos”. Todo o sistema baseado no conceito de uma idade geológica de “milhões de anos” já era difundido, baseado nas pressuposições filosóficas de homens como Charles Lyell e James Hutton, antes que a radioatividade fosse ao menos descoberta. Quando uma idade radioativa contradiz o “sistema”, ela é rapidamente descartada.
6. Se uma idade “radiométrica” e uma idade “fóssil” (evolutiva) são conflitantes, a idade radiométrica é sempre descartada.
Existem outras várias razões pelas quais não se deve aceitar os falhos métodos de datação criados pelos humanos, como a “datação” radioativa, como se tivessem autoridade de oposição ao testemunho claro da infalível Palavra de Deus.
Referências
1. Snelling, A., Radioactive ‘dating’ failure, Creation 22(1):18–21, 2000; Dalrymple, G. e Moore, J., Argon 40: Excess in submarine pillow basalts from Kilauea Volcano, Hawaii, Science 161:1132–1135, 13 de Setembro, 1968.
2. Snelling, A., Radioactive dating in conflict, Creation 20(1):24–27, 1997; Snelling, A., Conflicting ‘ages’ of Tertiary basalt and contained fossilised wood, Crinum, Central Queensland, Australia, CEN Tech. J. 14(2):99–122, 2000. .
3. Zangerl, R. and Richardson, E.S., The paleoecological history of two Pennsylvanian black shales, Fieldiana: Geology Memoirs 4, 1963 citado por Garner, P., Green River blues, Creation 19(3):18–19, 1997.
4. Organic Geochemistry 6:463–471, 1984.
5. Snelling, A., Instant petrified wood, Creation 17(4):38–40, 1995.
6. Sarfati, J., The Yellowstone petrified forests, Creation 21(2):18–21, 1999.
7. Sarfati, J., Salty seas: evidence the earth is young, Creation 21(1):16–17, 1998.
Jesus e a idade do mundo
A “linha do tempo convencional”, tendo como início o suposto “big bang” até o presente, é aceita por muitas pessoas no mundo cristão evangélico, apesar de negarem a evolução. Entretanto, isso colocaria o seres humanos no “fim” da criação (veja diagrama). Mas em várias partes da Bíblia, o Senhor Jesus Cristo, o Criador que se fez carne, deixa claro que isso é errado – os seres humanos estavam lá desde o início da criação. Isso significa que o mundo não podeter bilhões de anos de idade.
Por exemplo, ao abordar a teoria do casamento, Jesus declara em Marcos 10:6, “ Mas no princípio da criação, Deus os fez macho e fêmea.”
Em Lucas 11:50-51, Jesus disse:
“Para que desta geração seja requerido o sangue de todos os profetas que, desde a fundação do mundo, foi derramado; Desde o sangue de Abel, até ao sangue de Zacarias, que foi morto entre o altar e o templo; assim, vos digo, será requerido desta geraçã…rdquo;.
Romanos 1:20 deixa claro que as pessoas podem ver claramente o poder de Deus ao olhar para “as coisas criadas”, e que as pessoas puderam ver isso “desde a criação do mundo”. Não bilhões de anos depois da criação.
As 10 Melhores Evidências da Ciência que Confirmam uma Terra Jovem
em 6 de setembro de 2012; última atualização em 02 de outubro de 2012
A Palavra de Deus ensina claramente que a Terra é jovem, e as evidências poderosamente confirmam isso. Então não perca esta edição de Answers (revista ao lado, tradução: 'respostas'), que nos trás as dez melhores evidências para uma Terra jovem.
Também descubra incríveis novos exemplos de 'design' inegáveis do Criador, uma visão bíblica sobre o ativismo político, as últimas descobertas sobre os pergaminhos do Mar Morto, e muito mais!
A Terra tem apenas alguns milhares de anos de idade. Isso é um fato, claramente revelado na Palavra de Deus. Portanto, devemos esperar encontrar muitas evidências para a sua juventude. E isso é o que encontramos - na geologia da terra, biologia, paleontologia, e até astronomia.
Literalmente centenas de métodos de datação poderiam ser usados para tentar uma estimativa da idade da terra, e a grande maioria deles apontam para uma terra muito mais jovem do que os 4,5 bilhões anos reivindicados por secularistas. A seguinte série de artigos apresenta o que os pesquisadores da Answers in Genesis escolheram como as dez melhores evidências científicas que contradizem os bilhões de anos e confirma uma terra e universo relativamente jovens.
Apesar desta riqueza de evidências, é importante entender que, do ponto de vista da ciência observacional, ninguém pode provar absolutamente quão jovem (ou velho) o universo é. Apenas um método de datação é absolutamente confiável - uma testemunha que não mente, que tem todas as evidências, e que pode revelar-nos quando o universo começou!
E nós temos esse testemunho - o Deus da Bíblia! Ele nos deu uma história específica, começando com os seis dias da Criação e seguido por genealogias detalhadas que nos permitem determinar quando o universo começou. Com base nessa história, o começo foi apenas cerca de seis mil anos atrás (cerca de quatro mil anos desde a Criação até Cristo).
Na pressa de examinar todas estas incríveis "evidências" científicas , é fácil perder de vista o quadro geral. Essa montanha de evidências científicas acumuladas por pesquisadores, parece contradizer, obviamente, os supostos bilhões de anos, então por que não mais pessoas correm para aceitar a verdade de uma jovem Terra baseada na Bíblia?
O problema é que, como nós consideramos o tema das origens, todas as chamadas "evidências" devem ser interpretadas. Os fatos não falam por si. Interpretando os fatos do presente se torna especialmente difícil quando reconstruindo os acontecimentos históricos que produziram esses fatos atuais, porque os seres humanos não estiveram sempre presentes para observar todas as provas e para registrar como toda a evidência foi produzida.
Cientistas forenses devem fazer várias suposições sobre coisas que não podemos observar. Quão diferente estava o cenário original? Foram diferentes processos em jogo? Foi a cena mais tarde contaminada? Apenas uma suposição errada ou um pequeno pedaço de evidência faltando poderia mudar totalmente a forma como eles reconstroem os acontecimentos passados que levaram à evidência atual.
É por isso que, quando se discute a idade da terra, os cristãos devem estar prontos para explicar a importância dos pontos de partida e suposições. Chegar às conclusões corretas requer o ponto de partida certo.
A Bíblia é que ponto de partida. Esta é a Palavra revelada do Criador Todo-Poderoso, fiel e verdadeiro, que estava presente para observar todos os eventos da história da Terra e que deu à humanidade um registro infalível dos principais eventos no passado.
A Bíblia, a revelação de Deus para nós, nos dá a base que nos permite começar a construir a cosmovisão para entender corretamente como o presente e o passado estão conectados. Todos os outros documentos escritos pelo homem são falíveis, ao contrário do "inspirado por Deus" a infalível Palavra (2 Timóteo 3:16). A Bíblia claramente e inequivocamente descreve a criação do universo, do sistema solar, e da terra cerca de seis mil anos atrás. Sabemos que isso é verdade com base na autoridade do próprio caráter de Deus. "Porque Ele não podia jurar por ninguém maior, jurou por si mesmo" (Hebreus 6:13).
Em certo sentido, o testemunho de Deus é tudo que precisamos; mas o próprio Deus nos diz para dar razões para o que acreditamos (1 Pedro 3:15). Por isso, também é importante a realização de pesquisas científicas (que faz parte de assumir o domínio da terra, como Adão foi dito para fazer em Gênesis 1:28). Com esta pesquisa, podemos desafiar aqueles que rejeitam a palavra clara de Deus e defender a cosmovisão bíblica.
De fato, o testemunho de Deus deve ter um papel central no nosso pensamento que parece humilhante mesmo chamá-lo de a "melhor" evidência de uma Terra jovem. Ele é, na verdade, a única base sobre a qual todos os outros elementos podem ser corretamente compreendidos!
As 10 Melhores Evidências da Ciência
que Confirmam uma Terra Jovem
*Clique em cada um dos itens abaixo para ser redirecionado aos artigos.
Se os sedimentos vêm se acumulando no fundo do mar há três bilhões de anos, o fundo do mar deveria estar repleto de sedimentos a muitos quilômetros de profundidade.
Todos os anos, a água e o vento erodem cerca de 20 bilhões de toneladas de detritos de terra e rocha dos continentes, depositando-os no fundo do mar. 1 ( Figura 1 ). A maior parte desse material se acumula como sedimentos soltos perto dos continentes. No entanto, a espessura média de todos esses sedimentos em todo o fundo do mar não chega a 400 metros (1.300 pés). 2
Cadastre-se para receber atualizações por e-mail e ganhe um audiobook grátis!
Será que a igreja conseguirá recuperar sua posição de influência entre os jovens que buscam a “verdade” enquanto rejeitam a Palavra de Deus?
Alguns sedimentos parecem ser removidos à medida que as placas tectônicas deslizam lentamente (cerca de 2,5 a 5 cm por ano) sob os continentes. Estima-se que 1 bilhão de toneladas de sedimentos sejam removidas dessa forma a cada ano.<sup> 3 </sup> O ganho líquido é, portanto, de 19 bilhões de toneladas por ano. A essa taxa, 400 metros de sedimentos se acumulariam em menos de 12 milhões de anos, e não bilhões de anos.
Essa evidência faz sentido dentro do contexto do cataclismo do Dilúvio de Gênesis, e não da ideia de evolução geológica lenta e gradual. Nos estágios finais do Dilúvio global que durou um ano, a água escoou rapidamente da terra emergente, depositando suas cargas de sedimentos no mar. Assim, a maior parte dos sedimentos do fundo do mar se acumulou rapidamente há cerca de 4.300 anos .
Onde está todo o sedimento?
Figura 1: Todos os anos, 20 bilhões de toneladas de detritos de terra e rocha são levadas para o oceano e se acumulam no fundo do mar. Apenas 1 bilhão de toneladas (5%) são removidas pelas placas tectônicas. Nesse ritmo, a espessura atual dos sedimentos do fundo do mar se acumularia em menos de 12 milhões de anos. Esses sedimentos são facilmente explicados pelo escoamento da água dos continentes no final do Dilúvio.
Dispositivos de resgate
Aqueles que defendem uma Terra antiga insistem que os sedimentos do fundo do mar devem ter se acumulado a uma taxa muito mais lenta no passado. Mas essa justificativa não se sustenta! Assim como as camadas de sedimentos nos continentes, os sedimentos nas plataformas e margens continentais (a maioria dos sedimentos do fundo do mar) apresentam características que indicam inequivocamente que foram depositados muito mais rapidamente do que as taxas atuais. Por exemplo, a estratificação e os padrões de vários tamanhos de grãos nesses sedimentos são os mesmos produzidos por deslizamentos submarinos, quando correntes densas carregadas de detritos (chamadas correntes de turbidez) fluem rapidamente pelas plataformas continentais e os sedimentos se depositam em espessas camadas sobre vastas áreas. Um problema adicional para a visão da Terra antiga é que não existem evidências de que muitos sedimentos tenham sido subduzidos e misturados ao manto.
A Palavra de Deus ensina claramente que a Terra é jovem, e as evidências confirmam isso de forma poderosa. Portanto, não perca esta edição da Answers , que apresenta as dez melhores evidências de uma Terra jovem. Descubra também novos e incríveis exemplos dos inegáveis desígnios do Criador, uma visão bíblica sobre ativismo político, as últimas descobertas sobre os Manuscritos do Mar Morto e muito mais!
John D. Milliman e James PN Syvitski, “Controle geomórfico/tectônico da descarga de sedimentos para o oceano: a importância de pequenos rios montanhosos”, The Journal of Geology 100 (1992): 525–544.
William W. Hay, James L. Sloan II e Christopher N. Wold, “Distribuição de massa/idade e composição de sedimentos no fundo do oceano e a taxa global de subducção de sedimentos”, Journal of Geophysical Research 93, nº B12 (1998): 14.933–14.940.
William W. Hay, James L. Sloan II e Christopher N. Wold, “Distribuição de massa/idade e composição de sedimentos no fundo do oceano e a taxa global de subducção de sedimentos”, Journal of Geophysical Research 93, nº B12 (1998): 14.933–14.940.
Para uma análise mais completa e informações adicionais, consulte: John D. Morris, The Young Earth (Green Forest, AR: Master Books, 2000), pp. 88–90. Andrew A. Snelling, Earth's Catastrophic Past: Geology, Creation and the Flood (Dallas, TX: Institute for Creation Research, 2009), pp. 881–884.
Em muitas áreas montanhosas, camadas rochosas com milhares de metros de espessura foram dobradas e curvadas sem se fraturarem. Como isso é possível se elas foram depositadas separadamente ao longo de centenas de milhões de anos e já estavam endurecidas?
Se as camadas sedimentares fossilíferas da Terra foram depositadas ao longo de 460 milhões de anos, elas não poderiam ser dobradas sem se quebrar.
Camadas de rocha endurecida são quebradiças. Tente dobrar uma laje de concreto para ver o que acontece! Mas se o concreto ainda estiver úmido, ele pode ser facilmente moldado antes que o cimento endureça. O mesmo princípio se aplica às camadas de rocha sedimentar. Elas podem ser dobradas logo após a deposição do sedimento, antes que os cimentos naturais tenham a chance de unir as partículas em rochas duras e quebradiças .
A região ao redor do Grand Canyon é um ótimo exemplo, mostrando como a maioria das camadas fossilíferas da Terra foram depositadas rapidamente e muitas foram dobradas enquanto ainda estavam úmidas. Expostas nas paredes do cânion, encontram-se cerca de 1.370 metros de camadas fossilíferas, convencionalmente classificadas como do período Cambriano ao Permiano.² Supostamente, elas foram depositadas ao longo de um período que durou de 520 a 250 milhões de anos atrás. Então, surpreendentemente, toda essa sequência de camadas se elevou por mais de 1,6 quilômetros , há cerca de 60 milhões de anos. O planalto por onde o Grand Canyon se estende está agora entre 2.150 e 3.450 metros acima do nível do mar.
Camadas dispostas rapidamente e dobradas enquanto macias
Figura 1: O Grand Canyon agora corta muitas camadas de rocha. Anteriormente, todas essas camadas estavam elevadas à sua altitude atual (uma região plana e elevada conhecida como Planalto Kaibab). De alguma forma, toda essa sequência foi dobrada e curvada sem fraturar. Isso é impossível se a primeira camada, o Arenito Tapeats, foi depositada sobre a América do Norte 460 milhões de anos antes de ser dobrada. Mas todas as camadas ainda estariam relativamente macias e maleáveis se tudo isso tivesse acontecido durante o recente Dilúvio global.
Figura 2: Esse fenômeno não foi regional. O arenito Tapeats abrange todo o continente, e outras camadas se estendem por grande parte do globo.
Pense nisso. O período entre os primeiros depósitos no Grand Canyon (há 520 milhões de anos) e sua curvatura (há 60 milhões de anos) foi de 460 milhões de anos!
Observe as fotos de algumas dessas camadas na borda do planalto, a leste do Grand Canyon. Toda a sequência dessas camadas de rocha sedimentar endurecida foi dobrada e curvada, mas sem fraturas ( Figura 1 ) .³ Na base dessa sequência encontra-se o Arenito Tapeats, com 30 a 100 metros de espessura. Ele está dobrado e curvado em 90° ( Foto 1 ). O Calcário Muav, acima dele, também foi dobrado ( Foto 2 ).
Foto cedida por Andrew A. Snelling
Foto 1: Toda a sequência de camadas sedimentares que o Grand Canyon atravessa foi dobrada e curvada sem fraturar. Isso inclui o Arenito Tapeats, localizado na base da sequência. (Uma dobra de 90° na porção leste do Grand Canyon é mostrada aqui.)
Foto cedida por Andrew A. Snelling
Foto 2: Todas as camadas atravessadas pelo Grand Canyon — incluindo o calcário Muav mostrado aqui — foram dobradas sem fraturar.
No entanto, supostamente foram necessários 270 milhões de anos para depositar essas camadas específicas. Certamente, nesse período, o arenito Tapeats na base teria secado e os grãos de areia teriam se cimentado, especialmente com 1.220 metros de camadas de rocha empilhadas sobre ele, pressionando-o. A única explicação científica viável é que toda a sequência foi depositada muito rapidamente — o modelo criacionista indica que levou menos de um ano, durante o cataclismo global do Dilúvio. Portanto, os 520 milhões de anos nunca aconteceram e a Terra é jovem.
Dispositivos de resgate
Qual a solução sugerida pelos defensores da teoria da Terra antiga? O calor e a pressão podem tornar as camadas de rocha dura maleáveis, então eles afirmam que isso deve ter acontecido no leste do Grand Canyon, à medida que a sequência de muitas camadas acima pressionava e aquecia essas rochas. Só que há um problema: o calor e a pressão teriam transformado essas camadas em quartzito, mármore e outras rochas metamórficas. No entanto, o Arenito Tapeats ainda é arenito, uma rocha sedimentar!
Mas esse dilema é ainda pior para aqueles que negam a criação recente de Deus e o Dilúvio. O Arenito Tapeats e seus equivalentes podem ser rastreados por toda a América do Norte ( Figura 2 ) <sup>4 </sup> e além, atravessando o norte da África até o sul de Israel.<sup> 5 </sup> De fato, toda a sequência sedimentar do Grand Canyon é parte integrante de seis megassequências que cobrem a América do Norte.<sup> 6</sup> Somente um cataclismo global do Dilúvio poderia transportar os sedimentos para depositar espessas camadas em vários continentes, uma após a outra, em rápida sucessão, em um único evento.<sup> 7</sup>
O Dr. Andrew Snelling possui doutorado em geologia pela Universidade de Sydney e trabalhou como geólogo consultor de pesquisa na Austrália e nos Estados Unidos. Autor de inúmeros artigos científicos, o Dr. Snelling é atualmente diretor de pesquisa da Answers in Genesis.
A Palavra de Deus ensina claramente que a Terra é jovem, e as evidências confirmam isso de forma poderosa. Portanto, não perca esta edição da Answers , que apresenta as dez melhores evidências de uma Terra jovem. Descubra também novos e incríveis exemplos dos inegáveis desígnios do Criador, uma visão bíblica sobre ativismo político, as últimas descobertas sobre os Manuscritos do Mar Morto e muito mais!
F. Alan Lindberg, Correlação de Unidades Estratigráficas da América do Norte (COSUNA) , Série de Cartas de Correlação (Tulsa, OK: Associação Americana de Geólogos de Petróleo, 1986).
LL Sloss, “Sequências no interior cratônico da América do Norte”, Boletim da Sociedade Geológica da América 74 (1963): 93–114.
Para uma análise mais completa e informações adicionais, consulte:
John D. Morris, The Young Earth (Green Forest, AR: Master Books, 2000), pp. 106–109.
Andrew A. Snelling, Earth's Catastrophic Past: Geology, Creation and the Flood (Dallas, TX: Institute for Creation Research, 2009), pp. 528–530, 597–605.
Pergunte a uma pessoa comum como ela sabe que a Terra tem milhões ou bilhões de anos, e essa pessoa provavelmente mencionará os dinossauros, que quase todo mundo "sabe" que foram extintos há 65 milhões de anos. Uma descoberta recente da Dra. Mary Schweitzer, no entanto, deu motivos para que todos, exceto os evolucionistas convictos, questionem essa suposição.
Se os dinossauros viveram há mais de 65 milhões de anos, por que alguns fósseis de dinossauros ainda contêm tecidos moles bem preservados?
Fatias ósseas do fêmur fossilizado de um Tyrannosaurus rex, encontrado na formação Hell Creek, em Montana, foram estudadas ao microscópio por Schweitzer. Para sua surpresa, o osso revelou o que pareciam ser vasos sanguíneos do tipo encontrado em ossos e medula óssea, contendo o que pareciam ser glóbulos vermelhos com núcleos, típicos de répteis e aves (mas não de mamíferos). Os vasos pareciam inclusive estar revestidos por células endoteliais especializadas, encontradas em todos os vasos sanguíneos.
Surpreendentemente, a medula óssea continha o que parecia ser tecido flexível. Inicialmente, alguns cientistas céticos sugeriram que biofilmes bacterianos (bactérias mortas agregadas em uma substância viscosa) formavam o que aparentavam ser apenas vasos sanguíneos e células ósseas. Recentemente, Schweitzer e seus colaboradores encontraram evidências bioquímicas de fragmentos intactos da proteína colágeno, que é o componente básico do tecido conjuntivo. Isso é importante porque o colágeno é uma proteína altamente específica, não produzida por bactérias. (Veja o artigo de revisão de Schweitzer na Scientific American [dezembro de 2010, pp. 62–69] intitulado “Sangue da Pedra”.)
Alguns evolucionistas criticaram veementemente as conclusões de Schweitzer, pois, compreensivelmente, relutam em admitir a existência de vasos sanguíneos, células com núcleos, elasticidade tecidual e fragmentos de proteínas intactos em um osso de dinossauro datado de 68 milhões de anos. Outros evolucionistas, que consideram as evidências de Schweitzer demasiado convincentes para serem ignoradas, simplesmente concluem que existe alguma forma de fossilização até então desconhecida que preserva células e fragmentos de proteínas por dezenas de milhões de anos.<sup> 1 </sup> É evidente que nenhum evolucionista considerou publicamente a possibilidade de que os fósseis de dinossauros não tenham milhões de anos.
Tyler Lyson, Associated Press
Um pouco de pele: Uma múmia de dinossauro praticamente intacta, chamada Dakota, foi encontrada na Formação Hell Creek, no oeste dos EUA, em 2007. Alguns tecidos moles do hadrossauro de pescoço comprido foram rapidamente preservados como fósseis, como as escamas de seu antebraço mostradas aqui.
Uma questão óbvia surge do trabalho de Schweitzer: é minimamente plausível que vasos sanguíneos, células e fragmentos de proteínas possam existir praticamente intactos por mais de 68 milhões de anos? Embora muitos considerem essa preservação de tecidos e células a longo prazo muito improvável, o problema é que não se sabe com certeza que nenhum resto humano ou animal tenha 68 milhões de anos. Mas, se os criacionistas estiverem certos, os dinossauros foram extintos há apenas 3.000 a 4.000 anos. Então, seria de se esperar a preservação de vasos, células e moléculas complexas do tipo que Schweitzer relata em tecidos biológicos historicamente conhecidos por terem entre 3.000 e 4.000 anos?
A resposta é sim. Muitos estudos de múmias egípcias e de outros humanos dessa antiguidade (confirmados por evidências históricas) mostram todos os tipos de detalhes que Schweitzer relatou em seu estudo sobre o T. rex . Além das múmias egípcias, o Homem de Gelo do Tirol, encontrado nos Alpes em 1991 e que se acredita ter cerca de 5.000 anos, apresenta uma preservação incrível de DNA e outros detalhes microscópicos.
Concluímos que a preservação de vasos sanguíneos, células e moléculas complexas em dinossauros é totalmente consistente com uma perspectiva criacionista da Terra jovem, mas é altamente implausível com a perspectiva evolucionista sobre dinossauros que foram extintos milhões de anos atrás.
O Dr. David Menton possui doutorado em biologia celular pela Universidade Brown e é um autor e professor muito respeitado. Ele é Professor Emérito da Faculdade de Medicina da Universidade de Washington em St. Louis. O Dr. Menton tem diversas publicações e é um dos palestrantes mais populares da Answers in Genesis.
A Palavra de Deus ensina claramente que a Terra é jovem, e as evidências confirmam isso de forma poderosa. Portanto, não perca esta edição da Answers , que apresenta as dez melhores evidências de uma Terra jovem. Descubra também novos e incríveis exemplos dos inegáveis desígnios do Criador, uma visão bíblica sobre ativismo político, as últimas descobertas sobre os Manuscritos do Mar Morto e muito mais!
As melhores evidências científicas que confirmam uma Terra jovem.
Por Dr. Danny R. Faulkner Em 1º de outubro de 2012 ; última publicação em 27 de julho de 2021.
Republicado com permissão e publicado na revista Answers.
Compartilhar
#4 de 10 Melhores Evidências Científicas que Confirmam uma Terra Jovem
As evidências agora corroboram a crença dos astrônomos de que a energia do Sol provém da fusão do hidrogênio em hélio no interior do seu núcleo, mas existe um grande problema. À medida que o hidrogênio se funde, a composição do núcleo solar deveria se alterar, aumentando gradualmente a temperatura do Sol. Se isso for verdade, significa que a Terra era mais fria no passado. De fato, a Terra teria estado abaixo de zero há 3,5 bilhões de anos, época em que supostamente a vida evoluiu.
Cadastro na newsletter
Respostas mais recentes
Fique por dentro das novidades toda semana com os melhores artigos, blogs, notícias, vídeos e muito mais.
Inscreva-se agora
A taxa de fusão nuclear depende da temperatura. À medida que a temperatura do núcleo do Sol aumenta, a produção de energia solar também deve aumentar, fazendo com que o Sol brilhe mais ao longo do tempo. Cálculos mostram que o Sol brilharia 25% mais após 3,5 bilhões de anos. Isso significa que um Sol primitivo teria sido mais fraco, aquecendo a Terra 17°C a menos do que aquece hoje. Isso é abaixo de zero.
Mas os evolucionistas reconhecem que não há evidências disso no registro geológico. Eles até chamam esse problema de paradoxo do Sol jovem e fraco. Embora isso não seja um problema ao longo de muitos milhares de anos, torna-se um problema se o mundo tiver bilhões de anos.
Dispositivos de resgate
Ao longo dos anos, os cientistas propuseram diversos mecanismos para explicar esse problema. Essas sugestões requerem mudanças na atmosfera terrestre. Por exemplo, uma maior quantidade de gases de efeito estufa no início da história da Terra teria retido mais calor, mas isso significa que a quantidade desses gases teve que diminuir gradualmente para compensar o aumento da intensidade da radiação solar.
Nenhuma dessas propostas pode ser comprovada, pois não há evidências. Além disso, é difícil acreditar que um mecanismo totalmente alheio ao brilho do Sol possa compensar a variação da emissão solar com tanta precisão por bilhões de anos.
O Dr. Danny Faulkner é professor de física e astronomia na Universidade da Carolina do Sul em Lancaster. Ele escreveu inúmeros artigos em periódicos astronômicos e é o autor de "Universo por Design" .
A Terra é rodeada por um campo magnético que protege os seres vivos da radiação solar. Sem ele, a vida não poderia existir. Por isso, os cientistas ficaram surpresos ao descobrir que esse campo está se desgastando rapidamente. No ritmo atual, o campo, e consequentemente a Terra, não podem ter mais de 20.000 anos.
O campo magnético da Terra está se desgastando tão rapidamente que pode não ter mais de 20.000 anos.
Diversas medições confirmam esse declínio. Desde o início das medições, em 1845, a energia total armazenada no campo magnético da Terra tem diminuído a uma taxa de 5% por século.<sup> 1 </sup> Medições arqueológicas mostram que o campo era 40% mais forte em 1000 d.C.<sup> 2 </sup> Registros recentes do Campo Geomagnético de Referência Internacional, os mais precisos já obtidos, mostram uma perda líquida de energia de 1,4% em apenas três décadas (1970–2000).<sup> 3</sup> Isso significa que a energia do campo foi reduzida à metade a cada 1.465 anos, aproximadamente.
Os criacionistas propuseram que o campo magnético da Terra é causado por uma corrente elétrica que se dissipa livremente no núcleo terrestre. Isso significa que a corrente elétrica perde energia naturalmente, ou "se dissipa", à medida que flui pelo núcleo metálico. Embora difira do modelo convencional mais aceito, é consistente com o nosso conhecimento sobre a composição do núcleo terrestre. Além disso, com base no que sabemos sobre as propriedades condutoras do ferro líquido, essa corrente que se dissipa livremente teria começado quando o núcleo externo da Terra foi formado. No entanto, se o núcleo tivesse mais de 20.000 anos, a energia inicial teria tornado a Terra quente demais para ser coberta por água, como revela Gênesis 1:2 .
Figura 1: Os criacionistas propuseram que o campo magnético da Terra é causado por uma corrente elétrica que se dissipa livremente no núcleo terrestre. (Os cientistas que defendem a Terra antiga são obrigados a adotar um processo teórico autossustentável conhecido como modelo do dínamo, que contradiz algumas leis básicas da física.) Dados geológicos de campo confiáveis, precisos e publicados confirmaram enfaticamente esse modelo da Terra jovem.
Dados geológicos de campo confiáveis, precisos e publicados confirmaram enfaticamente o modelo da Terra jovem: uma corrente elétrica em decaimento livre no núcleo externo gera o campo magnético. 5 Embora esse campo tenha invertido sua direção diversas vezes durante o cataclismo do Dilúvio, quando o núcleo externo foi agitado ( Figura 1 ), ele vem perdendo energia total de forma rápida e contínua desde a criação ( Figura 2 ). Tudo indica que a Terra e seu campo magnético têm apenas cerca de 6.000 anos. 6
Figura 2: O campo magnético da Terra perdeu energia total de forma rápida e contínua desde a sua origem, independentemente do modelo adotado para explicar o seu magnetismo. De acordo com o modelo de decaimento dinâmico dos criacionistas, o campo magnético da Terra perdeu mais energia durante o Dilúvio, quando o núcleo externo foi agitado e o campo inverteu a sua direção diversas vezes.
Dispositivos de resgate
Os defensores da Terra antiga sustentam que o planeta tem mais de 4,5 bilhões de anos, e por isso acreditam que o campo magnético deve ser autossustentável. Eles propõem um processo teórico complexo conhecido como modelo de dínamo, mas esse modelo contradiz algumas leis básicas da física. Além disso, o modelo não explica a corrente elétrica medida atualmente no fundo do mar. 7 Tampouco explica as inversões de campo do passado, apesar das simulações computacionais. 8
Para salvar sua antiga Terra e dínamo, alguns sugeriram que o decaimento do campo magnético é linear em vez de exponencial, apesar das medições históricas e décadas de experimentos confirmarem o decaimento exponencial. Outros sugeriram que a intensidade de alguns componentes aumenta para compensar outros componentes que estão decaindo. Essa afirmação resulta da confusão sobre a diferença entre a intensidade do campo magnético e sua energia, e foi refutada categoricamente por físicos criacionistas.⁹
O Dr. Andrew Snelling possui doutorado em geologia pela Universidade de Sydney e trabalhou como geólogo consultor de pesquisa na Austrália e nos Estados Unidos. Autor de inúmeros artigos científicos, o Dr. Snelling é atualmente diretor de pesquisa da Answers in Genesis.
A Palavra de Deus ensina claramente que a Terra é jovem, e as evidências confirmam isso de forma poderosa. Portanto, não perca esta edição da Answers , que apresenta as dez melhores evidências de uma Terra jovem. Descubra também novos e incríveis exemplos dos inegáveis desígnios do Criador, uma visão bíblica sobre ativismo político, as últimas descobertas sobre os Manuscritos do Mar Morto e muito mais!
AL McDonald e RH Gunst, “Uma análise do campo magnético da Terra de 1835 a 1965”, Relatório Técnico da ESSA , IER 46-IES 1 (Washington, DC: Imprensa Oficial do Governo dos EUA, 1967).
RT Merrill e MW McElhinney, O Campo Magnético da Terra (Londres: Academic Press, 1983), pp. 101–106.
Essas medições foram coletadas pelo Campo Geomagnético de Referência Internacional. Veja D. Russell Humphreys, “O campo magnético da Terra ainda está perdendo energia”, Creation Research Society Quarterly 39, nº 1 (2002): 1–11.
Thomas G. Barnes, “Decaimento do Campo Magnético da Terra e as Implicações Geocronológicas”, Creation Research Society Quarterly 8, nº 1 (1971): 24–29; Thomas G. Barnes, Origem e Destino do Campo Magnético da Terra , Monografia Técnica nº 4, 2ª edição (Santee, CA: Instituto de Pesquisa da Criação, 1983).
D. Russell Humphreys, “Inversões do Campo Magnético da Terra Durante o Dilúvio do Gênesis”, em Anais da Primeira Conferência Internacional sobre Criacionismo , vol. 2, RE Walsh, CL Brooks e RS Crowell, eds. (Pittsburgh, PA: Creation Science Fellowship, 1986), pp. 113–126.
Para uma análise mais completa e informações adicionais, consulte:
John D. Morris, The Young Earth (Green Forest, AR: Master Books, 2000), pp. 74–85;
Andrew A. Snelling, Earth's Catastrophic Past: Geology, Creation and the Flood (Dallas, TX: Institute for Creation Research, 2009), pp. 873–877.
LJ Lanzerotti, et al., “Medições do potencial terrestre de corrente contínua em grande escala e possíveis implicações para o dínamo geomagnético”, Science 229, nº 4708 (1985): 47–49.
D. Russell Humphreys, “Podem agora os evolucionistas explicar o campo magnético da Terra?” Creation Research Society Quarterly 33, n.º 3 (1996): 184–185;
D. Russell Humphreys, “Mecanismo físico para a inversão do campo magnético da Terra durante o dilúvio”, em Anais da Segunda Conferência Internacional sobre Criacionismo , vol. 2, RE Walsh e CL Brooks, eds. (Pittsburgh, PA: Creation Science Fellowship, 1990), pp. 129–142.
Durante o decaimento radioativo do urânio e do tório contidos nas rochas, uma grande quantidade de hélio é produzida. Como o hélio é o segundo elemento mais leve e um gás nobre — ou seja, não se combina com outros átomos — ele se difunde (vaza) facilmente e acaba escapando para a atmosfera. O hélio se difunde tão rapidamente que todo o hélio deveria ter vazado em menos de 100.000 anos. Então, por que essas rochas ainda estão cheias de átomos de hélio?
Durante perfurações em rochas graníticas pré-cambrianas (pré-diluvianas) no Novo México, geólogos extraíram amostras de cristais de zircão (silicato de zircônio) de diferentes profundidades. Os cristais continham não apenas urânio, mas também grandes quantidades de hélio. Quanto mais quentes as rochas, mais rápido o hélio deveria escapar; portanto, os pesquisadores ficaram surpresos ao descobrir que os zircões mais profundos, e consequentemente mais quentes (a 197 °C), continham muito mais hélio do que o esperado. Até 58% do hélio que o urânio poderia ter gerado ainda estava presente nos cristais.
A taxa de vazamento de hélio foi determinada em diversos experimentos.² Todas as medições concordam. O hélio se difunde tão rapidamente que todo o hélio nesses cristais de zircão deveria ter vazado em menos de 100.000 anos. O fato de ainda haver tanto hélio presente significa que eles não podem ter 1,5 bilhão de anos, como sugere a datação por urânio-chumbo. De fato, usando a taxa de difusão de hélio medida, essas rochas pré-diluvianas têm uma “idade de difusão” média de apenas 6.000 (± 2.000) anos.³
Esses resultados, determinados experimentalmente e reproduzíveis, baseados no processo físico bem compreendido de difusão, demonstram enfaticamente que esses zircões têm apenas alguns milhares de anos. A suposta idade de 1,5 bilhão de anos baseia-se em pressupostos não verificáveis da datação por radioisótopos, que são radicalmente errôneos.⁴
Outra evidência de uma Terra jovem é a baixa quantidade de hélio na atmosfera. A taxa de vazamento de gás hélio para a atmosfera foi medida. 5 Mesmo que algum hélio escape para o espaço sideral, a quantidade ainda presente não é suficiente se a Terra tiver mais de 4,5 bilhões de anos. 6 De fato, se assumirmos que não havia hélio na atmosfera original, todo o hélio teria se acumulado em apenas 1,8 milhão de anos, mesmo de um ponto de vista evolutivo. 7 Mas quando se leva em conta o catastrófico dilúvio, que liberou rapidamente enormes quantidades de hélio na atmosfera, ele poderia ter se acumulado em apenas 6.000 anos. 8
Dispositivos de resgate
A quantidade surpreendentemente grande de hélio é tão gritante e devastadora que os defensores da teoria da Terra antiga tentaram desacreditar essa evidência.
Um crítico sugeriu que o hélio não provinha apenas do decaimento do urânio nos cristais de zircão, mas que uma grande quantidade se difundia para eles a partir dos minerais circundantes. No entanto, essa proposta ignora medições que mostram que há menos gás hélio nos minerais circundantes. Devido à lei da difusão, bem estabelecida na física, os gases sempre se difundem de áreas de maior concentração para áreas circundantes de menor concentração.
Outro crítico sugeriu que as bordas dos cristais de zircão devem ter impedido o vazamento de hélio, efetivamente "engarrafando" o hélio dentro dos zircões. No entanto, essa hipótese também foi facilmente refutada, pois os cristais de zircão estão encaixados entre lâminas planas de mica, e não envoltos por elas, de modo que o hélio poderia fluir livremente entre as lâminas, sem restrições.<sup> 10 </sup> Todas as outras críticas foram respondidas. <sup> 11</sup> Assim, todas as evidências disponíveis confirmam que a idade real desses zircões e da rocha granítica hospedeira é de apenas 6.000 (± 2.000) anos.
Hélio em rochas radioativas
Escape rápido de hélio
Figura 1: Elementos radioativos em rochas produzem muito hélio ao se desintegrarem. Esse gás escapa rapidamente para a atmosfera, especialmente quando as rochas estão quentes. No entanto, rochas radioativas na crosta terrestre contêm muito hélio. A única explicação possível: o hélio não teve tempo de escapar!
O Dr. Andrew Snelling possui doutorado em geologia pela Universidade de Sydney e trabalhou como geólogo consultor de pesquisa na Austrália e nos Estados Unidos. Autor de inúmeros artigos científicos, o Dr. Snelling é atualmente diretor de pesquisa da Answers in Genesis.
A Palavra de Deus ensina claramente que a Terra é jovem, e as evidências confirmam isso de forma poderosa. Portanto, não perca esta edição da Answers , que apresenta as dez melhores evidências de uma Terra jovem. Descubra também novos e incríveis exemplos dos inegáveis desígnios do Criador, uma visão bíblica sobre ativismo político, as últimas descobertas sobre os Manuscritos do Mar Morto e muito mais!
RV Gentry, GL Glish e EH McBay, “Retenção diferencial de hélio em zircões: implicações para o confinamento de resíduos nucleares”, Geophysical Research Letters 9, nº 10 (1982): 1129–1130.
SW Reiners, KA Farley e HJ Hicks, “Difusão de He e termocronometria (U-Th)/He de zircão: resultados iniciais de Fish Canyon Tuff e Gold Butte, Nevada”, Tectonophysics 349, nº 1–4 (2002): 297–308;
D. Russell Humphreys, et al., “Taxas de difusão de hélio apoiam o decaimento nuclear acelerado”, em Anais da Quinta Conferência Internacional sobre Criacionismo , RL Ivey, Jr. (Pittsburgh, PA: Creation Science Fellowship, 2003), ed., pp. 175–196;
D. Russell Humphreys, “Idade de difusão de hélio jovem de zircões apoia decaimento nuclear acelerado”, em Radioisótopos e a idade da Terra: Resultados de uma iniciativa de pesquisa criacionista da Terra jovem , L. Vardiman, AA Snelling e EF Chaffin, eds. (El Cajon, CA: Instituto de Pesquisa da Criação e Chino Valley, AZ: Sociedade de Pesquisa da Criação, 2005), pp. 25–100.
Humphreys et al., 2003;
Humphreys, 2005.
Andrew A. Snelling, “Datação radiométrica: de volta ao básico”, Answers 4, nº 3 (julho-setembro de 2009): 72-75;
Andrew A. Snelling, “Datação radiométrica: problemas com as suposições”, Answers 4, nº 4 (outubro-dezembro de 2009): 70-73.
GE Hutchinson, “Marginalia,” American Scientist 35 (1947): 118; Melvin A. Cook, “Where Is the Earth's Radiogenic Helium?” Nature 179, no. 4557 (1957): 213.
JCG Walker, Evolução da Atmosfera (Londres: Macmillan, 1977);
JW Chamberlain e DM Hunten, Teoria das Atmosferas Planetárias , 2ª edição (Londres: Academic Press, 1987).
Larry Vardiman, A Idade da Atmosfera Terrestre: Um Estudo do Fluxo de Hélio Através da Atmosfera (El Cajon, CA: Instituto de Pesquisa da Criação, 1990).
Para uma análise mais completa e informações adicionais, consulte:
John D. Morris, The Young Earth (Green Forest, AR: Master Books, 2000), pp. 83–85.
Don B. DeYoung, Thousands . . . Not Billions (Green Forest, AR: Master Books, 2005), pp. 65–78.
Andrew A. Snelling, Earth's Catastrophic Past: Geology, Creation and the Flood (Dallas, TX: Institute for Creation Research, 2009), pp. 887–890.
D. Russell Humphreys, et al., “Idade de difusão de hélio de 6.000 anos apoia decaimento nuclear acelerado”, Creation Research Society Quarterly 41, nº 1 (2004): 1–16.
Humphreys, 2005.
D. Russell Humphreys, “Críticos das evidências de hélio para um mundo jovem agora parecem estar em silêncio”, Journal of Creation 24, nº 1 (2010): 14–16;
D. Russell Humphreys, “Críticos das evidências de hélio para um mundo jovem agora parecem estar em silêncio?” Journal of Creation 24, nº 3 (2010): 35–39.
O carbono-14 (ou radiocarbono) é uma forma radioativa de carbono que os cientistas usam para datar fósseis. Mas ele se decompõe tão rapidamente — com uma meia-vida de apenas 5.730 anos — que não se espera que nenhum resíduo permaneça nos fósseis após apenas algumas centenas de milhares de anos. No entanto, o carbono-14 tem sido detectado em fósseis “antigos” — supostamente com até centenas de milhões de anos — desde os primórdios da datação por radiocarbono .
Se o radiocarbono dura apenas algumas centenas de milhares de anos, por que ele é encontrado em todos os diamantes da Terra datados de bilhões de anos?
Mesmo que cada átomo em toda a Terra fosse carbono-14, eles se desintegrariam tão rapidamente que nenhum carbono-14 restaria na Terra após apenas 1 milhão de anos. Contrariando as expectativas, somente entre 1984 e 1998, a literatura científica relatou a presença de carbono-14 em 70 amostras provenientes de fósseis, carvão, petróleo, gás natural e mármore, representando a porção fossilífera do registro geológico, supostamente abrangendo mais de 500 milhões de anos. Todas continham radiocarbono.² Além disso, análises de amostras de madeira e carvão fossilizados, supostamente com idades entre 32 e 350 milhões de anos, revelaram idades entre 20.000 e 50.000 anos usando a datação por carbono-14.³ Diamantes supostamente com 1 a 3 bilhões de anos apresentaram idades de carbono-14 de apenas 55.000 anos.⁴
Uma criatura marinha, chamada amonita, foi descoberta perto de Redding, na Califórnia, juntamente com madeira fossilizada. Acredita-se que ambos os fósseis tenham entre 112 e 120 milhões de anos, com base em estratos geológicos, mas as datações por radiocarbono indicaram apenas milhares de anos.
Mesmo essa estimativa é muito antiga quando consideramos que essas datações pressupõem que o campo magnético da Terra sempre foi constante. Mas ele era mais forte no passado, protegendo a atmosfera da radiação solar e reduzindo a produção de radiocarbono. Como resultado, as criaturas do passado tinham muito menos radiocarbono em seus corpos e suas mortes ocorreram muito mais recentemente do que o relatado!
Assim, as datações por radiocarbono de todos os fósseis e carvão deveriam ser reduzidas para menos de 5.000 anos, coincidindo com o período em que foram soterrados durante o Dilúvio. A idade dos diamantes deveria ser reduzida para o período aproximado da criação bíblica — cerca de 6.000 anos atrás .
Dispositivos de resgate
Os defensores da teoria da Terra antiga repetem as mesmas duas defesas batidas, mesmo que elas tenham sido refutadas de forma contundente há anos. O primeiro argumento é: "É tudo contaminação". No entanto, por trinta anos, os laboratórios de radiocarbono da AMS submeteram todas as amostras, antes de datá-las por carbono-14, a repetidos tratamentos brutais com ácidos fortes e alvejantes para eliminá-las de toda contaminação.⁶ E quando os instrumentos são testados com amostras em branco, eles produzem zero radiocarbono, então não pode haver contaminação ou problemas com os instrumentos.
O segundo argumento é: “Novo radiocarbono foi formado diretamente nos fósseis quando o urânio em decomposição próximo bombardeou traços de nitrogênio nos fósseis enterrados”. O carbono-14 de fato se forma a partir dessa transformação do nitrogênio, mas cálculos concretos demonstram conclusivamente que esse processo não produz os níveis de radiocarbono encontrados em fósseis, carvão e diamantes encontrados por laboratórios de renome mundial .
O Dr. Andrew Snelling possui doutorado em geologia pela Universidade de Sydney e trabalhou como geólogo consultor de pesquisa na Austrália e nos Estados Unidos. Autor de inúmeros artigos científicos, o Dr. Snelling é atualmente diretor de pesquisa da Answers in Genesis.
A Palavra de Deus ensina claramente que a Terra é jovem, e as evidências confirmam isso de forma poderosa. Portanto, não perca esta edição da Answers , que apresenta as dez melhores evidências de uma Terra jovem. Descubra também novos e incríveis exemplos dos inegáveis desígnios do Criador, uma visão bíblica sobre ativismo político, as últimas descobertas sobre os Manuscritos do Mar Morto e muito mais!
Robert L. Whitelaw, “Tempo, Vida e História à Luz de 15.000 Datações por Radiocarbono”, Creation Research Society Quarterly 7, nº 1 (1970): 56–71.
Paul Giem, “Conteúdo de carbono-14 do carbono fóssil”, Origins 51 (2001): 6–30.
John R. Baumgardner, et al., “14C mensurável em materiais orgânicos fossilizados: confirmando o modelo de criação da Terra jovem e dilúvio”, em Anais da Quinta Conferência Internacional sobre Criacionismo , RL Ivey, Jr., ed. (Pittsburgh, PA: Creation Science Fellowship, 2003), pp. 127–142.
John R. Baumgardner, “ Evidências de 14C para um dilúvio global recente e uma Terra jovem”, em Radioisótopos e a Idade da Terra: Resultados de uma Iniciativa de Pesquisa Criacionista da Terra Jovem , L. Vardiman, AA Snelling e EF Chaffin, eds. (El Cajon, CA: Instituto de Pesquisa da Criação e Chino Valley, AZ: Sociedade de Pesquisa da Criação, 2005), pp. 587–630.
Para uma análise mais completa e informações adicionais, consulte:
Don B. DeYoung, Thousands . . . Not Billions (Green Forest, AR: Master Books, 2005), pp. 45–62.
Andrew A. Snelling, Earth's Catastrophic Past: Geology, Creation and the Flood (Dallas, TX: Institute for Creation Research, 2009), pp. 855–864.
Andrew A. Snelling, “Carbon-14 Dating—Understanding the Basics,” Answers 5, no. 4 (out.–dez. 2010): 72–75.
Andrew A. Snelling, “Carbon-14 in Fossils and Diamonds—an Evolution Dilemma” Answers 6, no. 1 (jan.–mar. 2011 ): 72–75.
Andrew A. Snelling, “Fósseis de 50.000 anos — Um enigma criacionista”, Answers 6, nº 2 (abril–junho de 2011): 70–73.
Andrew A. Snelling, “Idades de radiocarbono para amonites fósseis e madeira em estratos cretáceos perto de Redding, Califórnia”, Answers Research Journal 1 (2008): 123–144.
Um cometa passa a maior parte do tempo longe do Sol, no frio intenso do espaço. Mas, a cada órbita, o cometa se aproxima bastante do Sol, permitindo que o calor solar evapore grande parte do gelo e desloque poeira, formando uma bela cauda. Os cometas têm pouca massa, então cada aproximação do Sol reduz drasticamente seu tamanho, e eventualmente eles desaparecem. Eles não conseguem sobreviver por bilhões de anos.
Outros dois mecanismos podem destruir cometas: ejeções do sistema solar e colisões com planetas. As ejeções ocorrem quando os cometas passam muito perto dos planetas maiores, principalmente Júpiter, e a gravidade desses planetas os expulsa do sistema solar. Embora as ejeções tenham sido observadas muitas vezes, a primeira colisão registrada ocorreu em 1994, quando o cometa Shoemaker-Levi IX colidiu com Júpiter.
Considerando as taxas de perda, é fácil calcular a idade máxima dos cometas. Essa idade máxima é de apenas alguns milhões de anos. Obviamente, sua prevalência faz sentido se todo o sistema solar tivesse sido criado há apenas alguns milhares de anos, mas não se tivesse surgido há bilhões de anos.
Dispositivos de resgate
Os astrônomos evolucionistas responderam a esse problema afirmando que os cometas devem vir de duas fontes. Eles propõem que um cinturão de Kuiper além da órbita de Netuno abriga cometas de curto período (cometas com órbitas inferiores a 200 anos), e uma nuvem de Oort muito maior e distante abriga cometas de longo período (cometas com órbitas superiores a 200 anos).
No entanto, não há evidências da suposta Nuvem de Oort, e provavelmente nunca haverá. Nos últimos vinte anos, astrônomos descobriram milhares de asteroides orbitando além de Netuno, e presume-se que eles façam parte do Cinturão de Kuiper. Contudo, o grande tamanho desses asteroides (Plutão é um dos maiores) e a diferença na composição entre eles e os cometas contradizem essa conclusão.
O Dr. Danny Faulkner é professor de física e astronomia na Universidade da Carolina do Sul em Lancaster. Ele escreveu inúmeros artigos em periódicos astronômicos e é o autor de "Universo por Design" .
Todos os anos, rios, geleiras, infiltrações subterrâneas e poeira atmosférica e vulcânica despejam grandes quantidades de sais nos oceanos ( Figura 1 ). Considere o influxo do sal predominante, o cloreto de sódio (sal de cozinha comum). Cerca de 458 milhões de toneladas de sódio se misturam à água do oceano a cada ano, ¹ mas apenas 122 milhões de toneladas (27%) são removidas por outros processos naturais² ( Figura 1 ).
Após 3 bilhões de anos, esperaríamos encontrar 70 vezes mais sal no oceano do que vemos hoje.
Se a água do mar originalmente não continha sódio (sal) e o sódio se acumulou nas taxas atuais, então a salinidade oceânica atual seria atingida em apenas 42 milhões de anos³ — apenas cerca de 1/70 dos três bilhões de anos propostos pelos evolucionistas. Mas essas suposições não levam em conta a probabilidade de Deus ter criado um oceano de água salgada para todas as criaturas marinhas que Ele criou no quinto dia. Além disso, o cataclismo global do Dilúvio, que durou um ano, deve ter despejado uma quantidade sem precedentes de sal no oceano por meio de erosão, sedimentação e vulcanismo. Portanto, a salinidade oceânica atual faz muito mais sentido dentro da escala de tempo bíblica de cerca de seis mil anos.⁴
Sal no mar
Os números simplesmente não batem.
Figura 1: Todos os anos, os continentes, a atmosfera e o fundo do mar adicionam 458 milhões de toneladas de sal ao oceano, mas apenas 122 milhões de toneladas (27%) são removidas. Nesse ritmo, a salinidade atual levaria 42 milhões de anos para ser atingida. Mas Deus criou originalmente um oceano salgado para as criaturas marinhas, e o Dilúvio rapidamente adicionou mais sal.
Dispositivos de resgate
Aqueles que acreditam em um oceano com três bilhões de anos dizem que as entradas de sódio no passado tiveram que ser menores e as saídas, maiores. No entanto, mesmo as estimativas mais generosas só conseguem estender o período de acumulação para 62 milhões de anos.⁵ Os defensores da hipótese da idade avançada do oceano também argumentam que enormes quantidades de sódio são removidas durante a formação de basaltos nas dorsais meso-oceânicas, ⁶ mas isso ignora o fato de que o sódio retorna ao oceano à medida que os basaltos do fundo do mar se afastam das dorsais.⁷
O Dr. Andrew Snelling possui doutorado em geologia pela Universidade de Sydney e trabalhou como geólogo consultor de pesquisa na Austrália e nos Estados Unidos. Autor de inúmeros artigos científicos, o Dr. Snelling é atualmente diretor de pesquisa da Answers in Genesis.
A Palavra de Deus ensina claramente que a Terra é jovem, e as evidências confirmam isso de forma poderosa. Portanto, não perca esta edição da Answers , que apresenta as dez melhores evidências de uma Terra jovem. Descubra também novos e incríveis exemplos dos inegáveis desígnios do Criador, uma visão bíblica sobre ativismo político, as últimas descobertas sobre os Manuscritos do Mar Morto e muito mais!
M. Meybeck, “Concentrations des eaux fluvials en majeurs et apports en solutions aux oceans”, Revue de Géologie Dynamique et de Géographie Physique 21, no. 3 (1979): 215.
FL Sayles e PC Mangelsdorf, “Características de troca catiônica da Amazônia com sedimentos em suspensão e sua reação com a água do mar”, Geochimica et Cosmochimica Acta 43 (1979): 767–779.
Steven A. Austin e D. Russell Humphreys, “O sal que falta no mar: um dilema para os evolucionistas”, em Anais da Segunda Conferência Internacional sobre Criacionismo , RE Walsh e CL Brooks, eds., volume 2 (Pittsburgh, PA: Creation Science Fellowship, 1990), pp. 17–33.
Para uma análise mais completa e informações adicionais, consulte:
John D. Morris, The Young Earth (Green Forest, AR: Master Books, 2000), pp. 85–87.
Andrew A. Snelling, Earth's Catastrophic Past: Geology, Creation and the Flood (Dallas, TX: Institute for Creation Research, 2009), pp. 879–881.
Cálculos baseados em muitos outros elementos da água do mar também indicam idades muito mais recentes para o oceano. Veja Stuart A. Nevins (Steven A. Austin), “Evolution: The Oceans Say No!” Impact no. 8. (Santee, CA: Institute for Creation Research, 1973).
Em 2000, cientistas afirmaram ter "ressuscitado" bactérias, denominadas bactérias Lázaro, descobertas em um cristal de sal datado convencionalmente em 250 milhões de anos. Eles ficaram surpresos ao constatar que o DNA da bactéria era muito semelhante ao DNA de bactérias modernas. Se as bactérias modernas fossem o resultado de 250 milhões de anos de evolução , seu DNA deveria ser muito diferente do da bactéria Lázaro (com base nas taxas de mutação conhecidas).
Além disso, os cientistas ficaram surpresos ao descobrir que o DNA ainda estava intacto após os supostos 250 milhões de anos. O DNA normalmente se degrada rapidamente, mesmo em condições ideais. Até mesmo os evolucionistas concordam que o DNA em esporos bacterianos (um estado dormente) não deveria durar mais de um milhão de anos. O dilema deles é bastante considerável.
Contudo, a descoberta da bactéria Lázaro não é chocante nem surpreendente quando baseamos nossas expectativas nos relatos bíblicos . Por exemplo, o Dilúvio de Noé provavelmente depositou os leitos de sal que abrigavam a bactéria. Se a bactéria Lázaro tem apenas cerca de 4.500 anos (o número aproximado de anos que se passaram desde o dilúvio mundial), é mais provável que seu DNA esteja intacto e seja semelhante ao das bactérias modernas.
Dispositivos de resgate
Alguns cientistas rejeitaram a descoberta e acreditam que as bactérias Lázaro são uma contaminação por bactérias modernas. Mas os cientistas que descobriram as bactérias defendem os procedimentos rigorosos usados para evitar a contaminação. Eles alegam que a idade avançada é válida se as bactérias tivessem tempos de geração mais longos, taxas de mutação diferentes e/ou pressões seletivas semelhantes às das bactérias modernas. É claro que esses "mecanismos de resgate" são apenas conjecturas para fazer os dados se encaixarem em sua visão de mundo.
Russell H. Vreeland, William D. Rosenzweig e Dennis W. Powers, “Isolamento de uma bactéria halotolerante de 250 milhões de anos de um cristal de sal primário”, Nature 407 (2000): 897–900, http://www.nature.com/nature/journal/v407/n6806/abs/407897a0.html (link para o resumo).
David C. Nickle, et al., “DNA curiosamente moderno para uma bactéria de “250 milhões de anos””, Journal of Molecular Evolution 54 (2002): 134–137, http://www.ncbi.nlm.nih.gov/pubmed/11734907 (link para o resumo).
A Dra. Georgia Purdom é palestrante e pesquisadora da Answers in Genesis. Ela obteve seu doutorado em genética molecular pela Universidade Estadual de Ohio e atuou como professora de biologia na Universidade Mt. Vernon Nazarene por seis anos.
Os geólogos não medem diretamente a idade de uma rocha. Eles escolhem rochas contendo isótopos radioativos "pai" que emitem partículas e radiação para se tornar um elemento "filha" diferente e medir as taxas de elementos para os seus isótopos. Tentativas de transformar estas taxas em datas são onde isso se torna problemático. Atribuir uma data requer que a taxa na qual o pai decai no elemento filha tem sido o mesmo ao longo da história da rocha. É similar ao assumir que a constrição em uma ampulheta tem sido sempre do mesmo diâmetro, e o mesmo número de grãos de areia passa a cada minuto.
Taxas de decaimento de radioisótopos são famosos por constância em condições normais, de modo que esta suposição parece razoável. Mas duas observações e duas pistas omitidas das discussões de livros de física de radiodatação mostram que estes "relógios" radioisótopos estão quebrados.
Primeiro, os cientistas observaram que as taxas de decaimento de isótopos radioativos (radioisótopos) flutuam, incluindo Th-228, Rn-22, e Si-32. Embora esses isótopos particulares não sejam usados para datar rochas, ilustram que o decaimento radioisótopo (radiodecaimento) não é sempre constante.¹
Segundo, rochas observadas para formar em uma data específica muitas vezes mostram estimativas de idade de radioisótopos que ultrapassam em muito as suas idades reais. Por exemplo, quando a cúpula de lava fresca no Monte St. Helens tinha apenas dez anos de idade, mostrou-se uma estimativa da idade de radioisótopos de 340 mil anos!² Muitos exemplos põem em dúvida todo o método de datação.³
Resultados como estes levaram uma equipe de sete pesquisadores da criação a investigar as causas de estimativas de idade de radioisótopos incorretas. Eles encontraram duas pistas em rocha de granito que são melhor explicadas por radioisótopos que decairam muito mais rápido no passado do que hoje. Uma pista foi o hélio abundante preso em minúsculos cristais de zircão dentro granito. 4 Átomos de urânio em decaimento emitem partículas alfa, que são equivalentes aos núcleos de hélio. O hélio escapa dos cristais a uma taxa mensurável. Se granitos têm bilhões de anos de idade, os níveis de hélio no interior dos cristais deveriam ter a muito tempo já esgotado. Mas cristais de granitos supostamente de bilhões de anos de vida estão cheios com hélio. A melhor explicação para isto é que o decaimento radioativo que normalmente levaria bilhões de anos realmente ocorreu muito rapidamente.
A presença de abundantes de radiohalos microscópicos em granito - escureceu cicatrizes em certos minerais dentro de granito - previsto pela segunda pista. O radioativo de polônio-210 emite partículas para se tornar rapidamente chumbo-206. Além disso, como o magma líquido quente arrefece para formar granito sólido, só pode capturar os de radiohalos de polônio de curta duração num intervalo de temperaturas específicas - o que permite uma janela de tempo de poucos dias. Os pesquisadores descobriram muitos radiohalos de polônio de curta duração ao lado direito de radiohalos de urânio, o que não seria de esperar. A melhor explicação para o granito lento-resfriamento e de radiohalos rápido-formando é o decaimento acelerado. Bilhões de anos de decaimento de urânio (em taxas de hoje) devem ter ocorrido durante a vida de polônio em centenas de dias. Isso só poderia ocorrer se o radiodecaimento já foi muito mais rápido. 4
O que poderia ter causado a aceleração? Os cientistas descobriram algumas condições, tais como ionização 5 e transporte de fluido de produtos filhas, 6, mas ninguém sabe ainda a causa exata da aceleração.
O hélio preso e radiohalos de polônio de vida curta presentes em granito sugerem que as taxas de radiodecaimento uma vez foram muito maiores do que são hoje. Além disso, radiodatas significativamente mais velhas para rochas de idade conhecida mostram que a datação radiométrica não é confiável. Embora os métodos de radioisótopos pode ter alguma utilidade na estimativa de idade relativa das rochas, os métodos de radioisótopos dão estimativas de idade inflacionadas, muitas vezes porque falsamente assumem uma taxa de decaimento constante. 7
Jung, M. et al. 1992. First observation of bound-state β- decay. Physical Review Letters. 69 (15): 2164–2167.
Frost, C. D. and Frost B. R. 1995. Open-system dehydration of amphibolite, Morton Pass, Wyoming: Elemental and Nd and Sr isotopic effects. The Journal of Geology.103: 269-284.
Baumgardner, J. 2012. Do radioisotope methods yield trustworthy relative ages for the earth’s rocks? Journal of Creation. 26 (3): 68-75.
* Mr. Thomas é Escritor Científico no Institute for Creation Research, e o Dr. Morris é o Presidente do Institute for Creation Research (ICR).
Como Podemos Observar Estrelas Que Estão Bilhões De Anos-Luz De Distância?
Há três coisas a serem consideradas ao responder a pergunta da luz das estrelas:
1. Cientistas não podem medir distâncias superiores a 100 anos-luz com precisão.
2 Ninguém sabe o que a luz é ou que ela viaja sempre na mesma velocidade por todo o tempo, espaço e matéria.
3 A Criação foi concluída ou amadureceu quando Deus a fez. Adão foi consumado, as árvores tinham frutos nelas, a luz das estrelas era visível, etc
Medindo Distância das Estrelas
Para elaborar estes três pontos: Em primeiro lugar, ninguém pode medir a distância estrela com precisão. A distância mais longa que o homem pode medir com precisão é 20 anos-luz (alguns livros dizem até 100), e não vários bilhões de anos-luz.
O homem mede distâncias de estrelas usando trigonometria de paralaxe. Ao escolher dois pontos de observação mensuráveis e fazendo um triângulo imaginário com um terceiro ponto, e utilizando trigonometria simples, o homem calcula a distância para o terceiro ponto.
Os pontos de observação mais distantes disponíveis para um observador terrestre são as posições da Terra em órbita solar no intervalo de seis meses, dito junho e dezembro. Isso criaria um triângulo de 186 milhões de milhas, o que equivale a apenas 16 minutos de luz. Há 525.948 minutos em um ano. Mesmo que a estrela mais próxima ficou a apenas um ano-luz de distância (e não está), o ângulo no terceiro ponto mede 0,017 graus.
Em termos mais simples, um triângulo como este estaria no mesmo ângulo de dois inspetores que iriam ver se eles estavam de pé dezesseis centímetros de distância e com foco em um terceiro ponto de 525.948 polegadas ou 8,24 milhas de distância. Se ficassem 16 centímetros de distância e focado em um ponto 824 milhas de distância, eles teriam o mesmo ângulo que um astrônomo medindo um ponto 100 anos-luz de distância.
Um ponto de 5 milhões de anos-luz de distância é impossível descobrir com a trigonometria. As estrelas podem estar muito longe, mas o homem moderno não tem como medir essas grandes distâncias. Ninguém pode afirmar definitivamente a distância para as estrelas.
Vários outros métodos tais como a luminosidade e desvio para o vermelho são empregues para tentar adivinhar a maiores distâncias, mas todos estes métodos têm problemas graves e pressupostos envolvidos.¹
Velocidade da Luz Não É Constante
Em segundo lugar, a velocidade da luz pode não ser uma constante. Ela varia em diferentes meios (daí o efeito arco-íris de luz passando por um prisma) e também podem variar em locais diferentes no espaço.
Toda a ideia por trás da teoria do buraco negro é que a luz pode ser atraída pela gravidade e ser incapaz de escapar da grande atração destes buracos negros imaginários. Ninguém sabe o que a luz é muito menos que a sua velocidade tem sido o padrão de tempo. Se a velocidade da luz se decompõe, o relógio estaria a mudar, à mesma taxa e, por conseguinte, não ser notada como o seguinte demonstra:
CIENTISTAS afirmam que eles quebraram a barreira da velocidade final: a velocidade da luz. Em pesquisa realizada nos Estados Unidos, os físicos de partículas têm mostrado que os pulsos de luz podem ser acelerados para até 300 vezes a sua velocidade normal das 186.000 milhas por segundo.²
O trabalho foi realizado pelo Dr. Lijun Wang, do Instituto de Pesquisa NEC em Princeton, que transmitiu um pulso de luz em direção a uma câmara cheia de gás césio especialmente tratado. 3,4
REFERÊNCIAS:
1. For a more complex and slightly different answer to the star light question from another Christian perspective, see the bookStarlight and Time by Russel Humphry available from http://www.icr.org.
2. Sunday Times from UK. “Eureka! Scientists Break Speed of Light” Jonathan Leake, Science Editor, June 4, 2000 United States.
3. See also; New York Times May 30, 2000.
4. See Seminar 7 for much more.
Disclaimer: This article is provided by a third-party source. Providing a third-party article on amazingdiscoveries.org indicates that we stand behind the content of that particular article, but it is not an endorsement by Amazing Discoveries of the author's opinion, lifestyle or work published elsewhere.
pelo: Dr. Jason Lisle em 8 de dezembro de 2010; última modificação feita em: 25 de maio de 2011.
A teoria da relatividade de Einstein lançou uma nova maneira de olhar para o universo.
Mas uma pergunta ficou: Quanto tempo leva luz para chegar à Terra? A resposta depende de suas suposições. "Instantaneamente!", Declara uma nova teoria criacionista.
Em praticamente todas as áreas da ciência, encontramos evidências que confirmam fortemente o relato de Gênesis sobre a criação. E ainda alguns fatos não parecem se encaixar na superfície. Realmente não deve surpreender-nos que nem sempre entendamos corretamente todas as facetas do universo.
Afinal, nossas mentes são finitas e falíveis, e o universo é complexo, e temos explorado tão pouco. Mas, muitas vezes, se perseverarmos, o Senhor nos permite descobrir coisas novas sobre a Sua criação, e percebemos que o que parecia ser um problema à primeira vista é, na verdade, perfeitamente em linha com Gênesis. Um desses problemas aparentes é a luz das estrelas distantes.
O Problema
Os cientistas sabem há quase um século que o universo é muito, muito grande. Algumas galáxias estão tão distantes que até mesmo a luz (viajando a 186.000 milhas por segundo [300,000 km / s]) levariam bilhões de anos para percorrer essa distância, pelo menos do nosso entendimento finito. Mas uma vez que já vemos essas galáxias, a luz delas deve ter viajado de lá para cá.
Portanto, se a luz realmente levou bilhões de anos para chegar até aqui, então o universo (ou pelo menos aquelas galáxias) seriam, portanto, de bilhões de anos de idade. Mas esta interpretação colide com uma simples leitura da Bíblia, a qual indica que Deus criou o universo apenas a poucos milhares de anos atrás.
Para lidar com este problema, vários cientistas ao longo dos anos têm proposto modelos, como a velocidade de mudança de luz e "dilatação do tempo gravitacional." Também deve ser notado que os astrônomos seculares têm seu próprio problema de tempo de viagem - chamado problema "o problema horizonte "(o big bang não pode explicar como a luz poderia ter viajado por todo o universo para produzir temperaturas uniformes "de fundo" 1).
Acredito que agora podemos ter a resposta para esta pergunta.
Ao contrário da crença popular, é possível que a luz se mova instantaneamente mesmo hoje. Assim, a quantidade de tempo que a luz leva para viajar de estrelas mais distantes para terra é realmente zero, não só durante o Dia Quatro da criação, mas hoje também.
Este princípio não foi descoberto por um criacionista bíblico em uma tentativa de resolver o problema a luz das estrelas. Em vez disso, foi descoberto por Albert Einstein. Isso mostra que o problema de viagem da luz é mais sobre suposições do que coisas que podemos observar e estudar com a ciência empírica subjacente.
Aviso para aqueles não familiarizados com a teoria da relatividade de Einstein: isso vai parecer contraditório, então esteja preparado para pensar fora da caixa!
A Física de Einstein
As descobertas de Einstein mudaram a nossa maneira de pensar sobre o espaço, o tempo, e a luz. Antes do século XX, a maioria das pessoas pensava que o espaço e o tempo não são afetados pela velocidade (velocidade e direção). A nossa experiência cotidiana parece confirmar isso; nossos relógios parecem não marcar mais devagar quando se dirige um carro. E o comprimento do carro não parece mudar com a velocidade.
Mas por volta da virada do século, Einstein mostrou que a nossa intuição dessas coisas pode ser muito enganadora. A velocidade realmente afeta a passagem do tempo, e isso afeta a nossa medida do comprimento também.
No entanto, estes efeitos são muito pequenos quando as velocidades são extremamente lentas em comparação com a luz. Mas todas as nossas experiências ocorrem em velocidades muito mais lentas do que a luz. Assim, em nossa vida diária nós nunca percebemos os efeitos que Einstein descobriu.
Na verdade, você teria que viajar a 14% da velocidade da luz, a fim de observar um efeito de 1% no comprimento de um objeto ou a taxa de um relógio. Uma vez que nenhum ser humano jamais se moveu tão rápido, ninguém nunca realmente experimentou esses efeitos em nossas vidas cotidianas. No entanto, os físicos foram capazes de acelerar as partículas (menores do que um átomo) de quase a velocidade da luz. E essas partículas se comportam exatamente como Einstein previu. Uma vez que comprimentos e durações de tempo não são absolutos, mas são em relação à velocidade, a física de Einstein é muitas vezes referida como "relatividade".
O Sentido Único da Velocidade da Luz
Um aspecto menos conhecido da física de Einstein é que a velocidade da luz em uma direção não pode ser medido objetivamente, e por isso deve ser estipulado (acordado por convenção). Isto está em contraste com a velocidade de ida e volta de luz, que é sempre constante.
Por exemplo, se a luz viaja de A para B e depois de volta para A, ela sempre terá a mesma quantidade de tempo para fazer a viagem (porque a velocidade é sempre a mesma), e que o tempo é objetivamente mensurável. No entanto, o tempo que leva para ir apenas de A para B, ou apenas de B para A não é objetivamente mensurável. Assim, a velocidade da luz em uma direção deve ser estipulada.
O que sabemos sobre a velocidade da luz
Podemos calcular a velocidade de ida e volta da luz. Digamos, por exemplo, nós lançamos uma luz por um longo corredor e ela reflete em um espelho. Se o nosso cronômetro diz que leva 2 segundos para ir de ida e volta, podemos ter certeza desse tempo.
O que não sabemos
Embora possamos ter a certeza do tempo de ida e volta, não podemos ter certeza do tempo que a luz levou viajando para o espelho ou o tempo que levou para retornar.
- Podemos supor que a luz leva uma quantidade igual de tempo para viajar em cada direção
- Contudo, a luz poderia viajar à velocidades diferentes para cada direção.
Encontrando o Sentido Único da Velocidade da Luz
A fim de evitar supor o tempo para o sentido único da velocidade da luz, precisamos ser capazes de medir a viagem só de ida. Mas é impossível porque mover um relógio para o espelho pode mudar o tempo no relógio!
PODEMOS SINCRONIZAR OS DOIS RELÓGIOS E ENTÃO MOVER UM PARA O ESPELHO?
Não. De acordo com Einstein, a viagem afeta o tempo, então nós não podemos ter certeza que os relógios ainda estão sincronizados depois que um se move para o espelho.
PODEMOS MOVER UM RELÓGIO PARA O ESPELHO E ENTÃO SINCRONIZÁ-LOS?
Não. Quando um relógio envia um sinal de rádio para o outro relógio na velocidade da luz, nós não podemos ter certeza quanto tempo o sinal levou a menos que nós já saibamos a velocidade de direção única da luz!
Em outras palavras, somos livres para escolher qual a velocidade da luz será em uma direção, embora a "ida e volta" da velocidade média de tempo seja sempre constante.
A razão que o sentido único da velocidade da luz não pode ser medido objetivamente é que você precisa encontrar uma maneira de sincronizar dois relógios separados por uma distância. Mas, a fim de sincronizar dois relógios separados por uma certa distância, você já tem que conhecer a velocidade do sentido único da luz. Por isso, não pode ser feito sem raciocínio circular.
Nós precisamos ter uma maneira de sincronizar os relógios para saber o sentido único velocidade da luz. Mas precisamos saber o sentido único da velocidade da luz, a fim de sincronizar os relógios. Einstein estava bem ciente deste dilema. Ele disse: "Parece, assim, como se estivéssemos em movimento aqui em um círculo lógico." 2
A resolução de Einstein para este dilema foi sugerir que o sentido único velocidade da luz não é realmente uma propriedade da natureza, mas é, ao invés uma convenção - algo que podemos escolher! Por uma questão de simplicidade, muitas físicos escolhem considerar a da velocidade da luz como sendo a mesma em todas as direções.
No entanto, qualquer outra alternativa, também é aceitável, desde que a velocidade de ida e volta seja de 186,000 milhas por segundo. Einstein disse que a velocidade da luz em sentido único "é, na realidade, não uma suposição, nem uma hipótese sobre a natureza física da luz, mas uma estipulação que eu posso fazer do meu próprio livre arbítrio, a fim de chegar a uma definição de simultaneidade". 3
Luz Estelar Distante
Assim, podemos escolher considerar a da velocidade da luz como sendo instantânea quando se viaja em direção a nós, providenciando a velocidade de ida e volta (no espaço vazio) sendo sempre 186.000 milhas por segundo. Neste caso, a luz das estrelas distantes leva pouco tempo para atingir a Terra desde que a luz esteja viajando na nossa direção. Então, a luz das estrelas distantes não é um problema.
Esta convenção poderia ser chamada de "convenção de sincronia anisotrópica," ou ASC (anisotropic synchrony convention), porque afirma que a luz viaja a velocidades diferentes em diferentes direções (anisotrópicas). Claro, é perfeitamente justo usar outras convenções também.
Einstein nos diz que podemos escolher livremente qual convenção de usar. Por uma questão de simplicidade, a maioria dos físicos escolhem a considerar a luz como movendo-se à mesma velocidade, em todas as direcções (isotrópica). No entanto, não há nenhuma razão fundamental que não pode usar, a ASC ao invés.
Parece que os escritores bíblicos usaram a convenção ASC. Gênesis 1:15 nos diz que as luzes no céu foram projetadas para alumiar a terra, e ela também nos diz "e assim foi." Isto sugere fortemente que as estrelas imediatamente começaram a cumprir o seu propósito ordenado por Deus para dar a luz sobre a terra.
A ASC é a única convenção em que a luz de todas as estrelas no espaço chegaria a Terra instantaneamente, como se pode inferir de Gênesis. É também a convenção implicitamente usada por todas as culturas antigas (embora elas provavelmente não tenham pensado nisso exatamente na forma como fazemos hoje).4
Deus quer que as pessoas leiam e compreendem a Sua Palavra (como Ele ensina em Deuteronômio 30: 11-14 e em outros lugares). A ASC seria a melhor convenção a se usar para fazer isso, uma vez que seria usada por culturas antigas e ainda hoje é utilizada.
Se entendermos que a Bíblia em Gênesis (e em toda) usa a ASC, então isso explica como podemos ver a luz das galáxias mais distantes; Deus criou as luzes celestiais no Dia Quatro e levou a luz pouco tempo para chegar a terra (porque a luz estava em uma viagem só de ida). Então Adão não teria necessidade de esperar 4,3 anos para Alpha Centauri se tornar visível. Ele poderia ter visto a estrela imediatamente, junto com todas as outras estrelas.
Para propósitos do desenvolvimento de um modelo científico da cosmologia, podemos fazer algumas suposições adicionais sobre o universo e de como Deus poderia ter originalmente distribuído o material de dentro dele. Estes pressupostos levaram ao desenvolvimento de um modelo baseado cosmologia da criação que faz previsões testáveis.
Muitas das previsões deste "modelo ASC" já foram confirmadas, e esperamos muitas mais no futuro próximo. Para mais informações sobre o modelo de ASC, por favor visite nosso Jornal gratuito de Pesquisa "Answers" em www.answersingenesis.org/arj.
Linha de fundo. Não temos todos os dados sobre o universo não estávamos lá no início - e assim, como Jó, devemos reconhecer humildemente que não sabemos nada comparado a Deus (Jó 42: 1-6). No entanto, Deus nos permite compreender Alguns aspectos de seu cosmos, e agora podemos ter a resposta para o desafio da luz das estrelas distantes. Pesquisas sobre este tema continuam, mas devemos sempre estar intransigentemente na Palavra de Deus.
Luz Estelar "Virtual"?
No passado, alguns criacionistas pensaram que Deus poderia simplesmente ter criado a luz irradiando-se. Em outras palavras, quando olhamos para uma galáxia distante, não estamos realmente vendo a luz que vinha da galáxia, mas sim uma imagem de uma galáxia que Deus colocou em um feixe de luz na criação.
Este ponto de vista também significa que qualquer coisa que vemos acontecendo no espaço distante (como uma estrela explodindo) nunca realmente aconteceu. Eventos celestiais seriam simplesmente filmes ficcionais criados por Deus. Mas isso não parece consistente com o caráter de Deus, como descrito na Bíblia (1 Coríntios 14:33).
Ainda mais significativamente, essa visão parece entrar em conflito com o que a própria Bíblia diz sobre as estrelas. Gênesis 1:15 ensina que Deus fez as luzes no céu, para alumiar a terra. Mas se Deus criou a luz em trânsito, então a luz na verdade não vêm das estrelas. Isto significa que mais de 99% do universo ainda não está a cumprir o seu propósito ordenado por Deus: de alumiar a terra.
Mas Gênesis 1:15 também diz: "E assim foi", o que implica que as estrelas imediatamente começaram o cumprimento do seu papel ordenado por Deus. Assim, os feixes de luz não foram criados no local. Aparentemente, a luz, na verdade, veio das estrelas. Além disso, Gênesis parece implicar que isso aconteceu imediatamente.
Notas de Rodapé
See The New Answers Book, Chapter 19 (Green Forest, Arkansas: Master Books, 2006), pp. 251–254.
A. Einstein, Relativity: The Special and General Theory, authorized translation by R. W. Lawson (New York: Crown Publishers, 1961), pp. 22–23.
Ref. 2, p. 23.
Tanto quanto sabemos, as culturas antigas não subtraiam o tempo da viagem da luz a partir dos eventos cósmicos. Até onde eles observavam, as coisas no espaço aconteciam no mesmo tempo em que eram vistas. Esta é a essência da ASC (Anisotropic Synchrony Convention - Convenção da Sincronia Anisotrópica).
*Nota do tradutor:
A nota de rodapé número 2 pode ser verificada também no neste link: http://www.gutenberg.org/cache/epub/5001/pg5001.html (livro de A. Einstein: Relativity: The Special and General Theory) fazendo uma busca pelo atalho "Ctrl+f" pelo texto:
is in reality neither a supposition nor a hypothesis about the physical nature of light, but a stipulation which I can make of my own freewill in order to arrive at a definition of simultaneity. Como demonstrado na imagem abaixo:
Para entender melhor o sobre o que Lisle explica na Convenção da Sincronia Anisotrópica da velocidade da luz, considere um pensamento sobre experiência da medição da velocidade da luz. Se você quiser medir a velocidade da luz de um feixe de luz que vai de A para B você precisaria de dois relógios que estejam perfeitamente sincronizados.
Isto parece intuitivamente fácil, dado que nós podemos fazer isso para carros que viajam entre cidades ou corredores em uma pista. No entanto, para ter plenamente em conta os efeitos relativísticos e medir a velocidade da luz com a confiabilidade, uma convenção deve ser introduzida para determinar como manter sincronizados os relógios. Inocentemente, pode-se dizer que você teria sincronizar os relógios no ponto A, em seguida, caminhar para um relógio no ponto B. Você pararia o relógio A quando você disparasse o fóton e pararia relógio B quando o fóton atingisse o relógio B. Você levaria relógio B de volta para o relógio A e compararia as duas vezes (ou enviaria uma mensagem de alguma outra forma), e isto, em seguida, lhe dá o sentido único da velocidade da luz.
Aqui, a relatividade ergue sua face horrenda. O processo de mover um relógio para o ponto B significa, necessariamente, que os dois relógios serão executados em taxas diferentes, uma vez que eles estão separados e, portanto, não serão mais sincronizadas quando o fóton é acionado. Em um quadro isotrópico você diria que eles se separaram porque tinham velocidade relativa; em uma estrutura anisotrópica você diria que eles se separaram porque foram separados pela distância (embora o efeito seja mínimo em baixa velocidade, ainda acontece independentemente de quão rápido eles se separaram).
Qualquer tentativa de sincronizar os relógios, calculando o quanto eles devem ter se afastado ao longo da viagem exigirá que você, na sua essência, escolha como você acha que a luz se comporta: se acha que viaja à velocidade igual em todas as direções, você ajusta o seu relógio movido em mão única; se você acha que a luz não viaja em velocidade igual em todas as direções você faz um cálculo diferente e obtem um resultado diferente. O experimento em si não pode lhe dizer que escolha está correta, já que ambos os quadros produzem as mesmas observações experimentais.Assim, esta velocidade "one way" da luz de A para B é indefinida. Podemos, no entanto, medir com sucesso uma velocidade "two way" da luz por onde passa de A para B, antes de ser refletida de volta para A; isso requer apenas um relógio e o problema de sincronizar duas definições de tempo desaparece. Basta medir o tempo que leva para a luz voltar, o dobro da distância, e chega-se a um valor confiável para a velocidade média da luz sobre o circuito fechado completamente independente do problema colocado pela sincronização do relógio.
A pergunta seguinte foi recebida de JD, em resposta a uma das apresentações World By Desig na Austrália recentemente, depois que eu já havia respondido por via oral na parte Hobart do World By Design.
Supernova - imagem wikipédia
"Deus não é homem para que minta, nem filho do homem para que mude Sua mente." (Números 23:19, NVI)
A referência da Escritura acima resume a confiabilidade essencial de Deus. Em vista disso, se o universo inteiro (e não apenas a Terra) foi criado cerca de 6.000 anos atrás, como você entende tais eventos como, por exemplo, a supernova 1987A, no qual uma estrela que explodiu a uma distância de cerca de 170.000 anos-luz do sistema solar?
A escala astronômica distância, naturalmente, não é absoluta, mas há pouca base para acreditar que ela seja superestimada por um fator de cerca de 30 a uma tal distância relativamente perto. Outras observações astronômicas parecem representar objetos muito mais distantes, vistas portanto, em uma época muito anterior.
Sugerir que todo o universo observável foi criado com uma história de eventos (que na verdade nunca ocorreram) parece ser inconsistente com o caráter do Deus descrito na Bíblia.
Como é possível que a luz de estrelas distantes chegue até nós em apenas 6.000 anos?
Por Dr. Mark Harwood
Publicado em 17 de janeiro de 2009 | Atualizado em 16 de março de 2024
Os criacionistas têm agora mais recursos à sua disposição para lidar com essa questão do que nunca — enquanto os problemas para os evolucionistas que defendem uma longa era só pioram.
A seguinte pergunta foi recebida de JD em resposta a uma das apresentações do World by Design na Austrália recentemente, depois que eu já havia respondido oralmente na parte da turnê do World by Design em Hobart.
“Deus não é homem para que minta, nem filho do homem para que se arrependa.” ( Números 23:19 )
Imagem WikipédiaSupernova
A referência bíblica acima resume a essencial confiabilidade de Deus. Diante disso, se todo o universo (e não apenas a Terra) foi criado há aproximadamente 6.000 anos, como entender eventos como, por exemplo, a supernova 1987A, na qual uma estrela explodiu a uma distância de aproximadamente 170.000 anos-luz do sistema solar?
A escala de distância astronômica não é, obviamente, absoluta, mas há poucos motivos para acreditar que ela esteja superestimada por um fator de cerca de 30 a uma distância relativamente curta. Outras observações astronômicas parecem representar objetos muito mais distantes, vistos, portanto, em uma época muito anterior.
Sugerir que todo o universo observável foi criado com uma história de eventos (que nunca ocorreram de fato) parece ser inconsistente com o caráter do Deus descrito na Bíblia.
Abordarei agora cada uma das questões na ordem em que JD as levantou:
“Deus não é homem para que minta, nem filho do homem para que se arrependa.” ( Números 23:19 )
A referência bíblica acima resume a essência da fidelidade de Deus.
De fato, foi a fidelidade de Deus que forneceu a base para o estudo e o desenvolvimento da ciência, e é por isso que a ciência se desenvolveu em culturas que compartilhavam uma visão de mundo judaico-cristã (veja o primeiro capítulo de "Refutando a Evolução", de J. Sarfati ). Além disso, a fidelidade de Deus fornece a base para nossa compreensão da clareza das Escrituras, ou seja, a crença de que elas foram escritas para serem compreendidas e que Deus não nos enganaria nem nos induziria ao erro. O significado literal dos capítulos iniciais de Gênesis pode, portanto, ser interpretado como um relato histórico do que realmente aconteceu durante a Semana da Criação, a Queda, o Dilúvio e a dispersão na Torre de Babel.
É claro que isso não significa que declarações feitas por pessoas falíveis , baseadas em suas observações do mundo físico, sejam necessariamente válidas ou confiáveis.
Diante disso, se todo o universo (e não apenas a Terra) foi criado há aproximadamente 6.000 anos, como se explicam eventos como, por exemplo, a supernova 1987A, na qual uma estrela explodiu a uma distância de aproximadamente 170.000 anos-luz do sistema solar?
A supernova 1987A foi observada em 1987 (daí o seu nome) e é geralmente considerada como estando a 170.000 anos-luz de distância (veja também este artigo , que inclui uma seção sobre a supernova 1987A). À primeira vista, parece que a luz viajou por 170.000 anos, o que não é consistente com um universo de 6.000 anos. Mas a questão é: por qual relógio o tempo está sendo medido?
A escala de distância astronômica não é, obviamente, absoluta, mas há poucos motivos para acreditar que ela esteja superestimada por um fator de cerca de 30 a uma distância relativamente curta. Outras observações astronômicas parecem representar objetos muito mais distantes, vistos, portanto, em uma época muito anterior.
É interessante notar que as teorias do Big Bang apresentam exatamente o mesmo problema . Ou seja, a temperatura da radiação de fundo é quase uniforme, com uma variação de uma parte em 100.000, em torno de 2,725 K, mesmo quando observamos em direções opostas do cosmos. Já que o Big Bang preveria temperaturas extremamente diferentes, como elas se tornaram tão uniformes? Somente se houve transferência de energia de partes quentes para partes frias. No entanto, não houve tempo suficiente para que isso ocorresse, nem mesmo no período estimado desde o suposto Big Bang — veja o esclarecedor artigo " Tempo de viagem da luz: um problema para o Big Bang", do astrofísico Jason Lisle, doutor em física .
A publicação misoteísta New Scientist admitiu em 13 coisas que não fazem sentido (19 de março de 2005, atualizado em 14 de abril de 2009):
Esse “problema do horizonte” é uma grande dor de cabeça para os cosmólogos, tão grande que eles propuseram algumas soluções bastante inusitadas. A “inflação”, por exemplo. Você pode resolver o problema do horizonte fazendo o universo se expandir ultrarrápidamente por um período, logo após o Big Bang, explodindo por um fator de 10⁵⁰ em 10⁻³³ segundos. Mas será que isso não passa de um desejo?
Outros defensores da teoria do Big Bang tentaram remediar esse problema propondo que a velocidade da luz era muito maior no passado, como João Magueijo e John Barrow . No entanto, quando alguns criacionistas propuseram algo semelhante algumas décadas atrás , foi considerado heresia! Ou seja, tudo é permitido quando se trata de resgatar o dogma do Big Bang, mas resgatar o Gênesis exatamente pelos mesmos meios é proibido. Contudo, as observações de uniformidade na radiação cósmica de fundo, que desafiam explicações evolucionistas plausíveis, são consistentes com um único Criador do espaço e do tempo que mantém o universo unido ( Colossenses 1:17 ).
Sugerir que todo o universo observável foi criado com uma história de eventos (que nunca ocorreram de fato) parece ser inconsistente com o caráter do Deus descrito na Bíblia.
Imagem da NASANebulosa
Concordo. Uma ideia que foi apresentada para abordar esse problema é que Deus criou a informação sobre tais eventos no feixe de 'luz' em seu caminho para a Terra. No entanto, isso implicaria um ato enganoso de Deus se o evento nunca tivesse realmente ocorrido. A maioria dos criacionistas não apoiaria essa ideia. (Veja Alex Williams e John Hartnett, Criação funcional e o aparecimento da idade, páginas 168–173 em: Desmantelando o Big Bang .)
Desenvolvimentos recentes na cosmologia criacionista oferecem uma explicação elegante para a questão da luz estelar distante, consistente com o relato da criação no Gênesis e baseada em observações astronômicas recentes e nas equações da Relatividade Geral de Einstein. Embora uma explicação detalhada dessa nova cosmologia esteja além do escopo deste artigo de feedback, ela é explicada mais completamente no livro *Starlight, Time and the New Physics*, de John Hartnett . A explicação de Hartnett é uma extrapolação da Relatividade Geral, baseada na expansão do universo e na Relatividade Geral Cosmológica 5D (espaço-tempo-velocidade) desenvolvida por Carmeli. Um dos aspectos de confirmação mais importantes dessa cosmologia é que os conceitos altamente especulativos do Big Bang, como matéria escura e energia escura, não são necessários para explicar as observações feitas nas regiões mais distantes do cosmos — veja "A matéria escura foi realmente comprovada?".
Outro modelo, também baseado na Relatividade Geral, desenvolvido por Russell Humphreys, explora a dilatação gravitacional do tempo e é explicado em seu DVD chamado Anos-luz? Sem problemas!
Este artigo busca fornecer uma estrutura para a compreensão da resposta à questão da luz estelar distante. Os elementos-chave são a dilatação do tempo, as observações recentes que mostram que vivemos em um universo galactocêntrico e as referências bíblicas a Deus "estendendo os céus" no quarto dia da Semana da Criação.
Dilatação do tempo
Uma previsão da Teoria da Relatividade Geral de Einstein, comprovada experimentalmente, é um fenômeno chamado dilatação gravitacional do tempo. Há muito se sabe que a gravidade afeta a velocidade com que o tempo flui em qualquer local específico do universo. Um exemplo gráfico desse fenômeno é o sistema de navegação por satélite GPS, que está se tornando um recurso padrão em muitos veículos atualmente.
A posição de um indivíduo é determinada comparando o tempo que os sinais de vários satélites visíveis em um dado momento levam para chegar ao receptor, exigindo, portanto, uma precisão de temporização extremamente alta. A constelação de satélites orbita a Terra a uma altitude de cerca de 20.000 km. Nessa altitude, os relógios atômicos a bordo dos satélites funcionam 45 microssegundos por dia mais rápidos do que os relógios equivalentes na Terra. Os satélites viajam a cerca de 12.000 km por hora, o que produz um efeito relativístico oposto, retardando os relógios em cerca de 7 microssegundos por dia. O efeito combinado é que os relógios nos satélites GPS funcionam 38 microssegundos por dia mais rápidos do que os relógios terrestres equivalentes. Por que isso importa? Se essa diferença de tempo fosse ignorada e nenhuma compensação fosse feita, os erros de posicionamento se acumulariam a uma taxa de cerca de 400 m por hora, o que tornaria o sistema completamente inútil!
Outro mecanismo para a dilatação do tempo é a rápida aceleração da estrutura do espaço em um universo em expansão. Isso é explicado mais detalhadamente no livro de Hartnett citado acima.
Vivemos em um universo galactocêntrico.
A teoria padrão do Big Bang afirma que o universo não possui centro nem borda, uma suposição, chamada Princípio Cosmológico, criada para evitar que a Terra seja considerada um lugar especial. Se a Terra fosse especial de alguma forma, isso implicaria em um projeto e, portanto, em um Criador, o que contradiz a crença evolucionista ateísta. Quando Edwin Hubble descobriu o desvio para o vermelho nos espectros de estrelas e galáxias e o interpretou como distância (conhecido como Lei de Hubble), ele ficou horrorizado com a implicação de que a Terra pudesse estar em um lugar especial. Ele escreveu:
'Tal condição [desvio para o vermelho] implicaria que ocupamos uma posição única no universo… Mas a indesejável suposição de uma localização privilegiada deve ser evitada a todo custo… [e] é intolerável… além disso, representa uma discrepância com a teoria, porque a teoria postula homogeneidade.'¹
De fato, em seus trabalhos posteriores, Hubble rejeitou a interpretação da velocidade para o desvio para o vermelho e, em vez disso, preferiu ideias como a de "luz cansada", para rejeitar o Big Bang e o universo em expansão em favor de um universo infinito e estacionário.²
Estudos recentes <sup> 3,4 </sup> mediram o desvio para o vermelho galáctico de cerca de 250.000 galáxias e revelaram uma superabundância de galáxias em certos desvios para o vermelho, nos quais os dados se desviam da distribuição teórica esperada em uma série de grandes picos. Uma interpretação direta desses dados é que as galáxias estão distribuídas com uma simetria esférica em forma de concha, com a Via Láctea no centro ou próximo a ele! Tal resultado é totalmente consistente com a visão bíblica, mas está em desacordo com as crenças padrão do Big Bang e não é consistente com o Princípio Cosmológico.
Deus estendeu os céus
Em pelo menos 11 passagens, as Escrituras falam de Deus 'estendendo os céus' (por exemplo, Jó 9:8 , Isaías 40:22 e 42:5 , Jeremias 10:12 , Zacarias 12:1 ) e, em Gênesis 1:15, as palavras 'E assim foi' são registradas em conexão com os eventos do quarto dia da Semana da Criação, implicando a conclusão dos eventos descritos naquele dia. É razoável concluir que Deus estendeu os céus até a vasta extensão do universo observável em apenas um dia de 24 horas e então cessou a ação de 'estender'. Isso é mais racional do que a explicação inflacionária do Big Bang discutida anteriormente . Ou seja, onde o universo simplesmente se expandiu muito mais rápido que a luz, embora não haja nenhuma causa física conhecida para o início ou a interrupção dessa expansão superluminal.
Devemos também observar que Deus criou a Terra primeiro, antes do Sol, da Lua e das estrelas (e, por inferência, dos planetas etc.), então parece razoável supor que o universo se estendia com a Terra em seu centro ou muito próximo a ele. Além disso, o Salmo 147:4 e Isaías 40:26 sugerem que existe um número finito de estrelas no universo. Portanto, a Bíblia parece ensinar que vivemos em um universo finito que tem, no mínimo, a nossa galáxia, a Via Láctea, em seu centro.
Luz estelar distante e a escala de tempo bíblica
Equipe Científica da NASA/COBE/WikimediaIlustração artística do satélite COBE.
Agora temos as chaves para entender como a luz das estrelas pode nos alcançar de distâncias tão vastas em apenas alguns milhares de anos terrestres. Os dias da Semana da Criação foram registrados do ponto de vista de um observador na Terra, portanto, a referência temporal em Gênesis é o tempo terrestre. No quarto dia, quando Deus começou a estender os céus, a massa do universo (presumivelmente incluindo as 'águas acima', que foram separadas no segundo dia) teria sido confinada a um volume de espaço muito menor do que o atual. Supondo que a teoria de Hartnett-Carmeli esteja correta, o Universo se expandiu rapidamente com uma enorme dilatação temporal como resultado da aceleração muito rápida do tecido do espaço no quarto dia. O modelo de Humphreys⁵, por outro lado, também baseado na Relatividade Geral, apresenta relógios na borda externa do cosmos funcionando muito mais rápido do que relógios terrestres devido à dilatação gravitacional do tempo.
Ao final do quarto dia, quando Deus completou sua obra de criar o sol, a lua e as estrelas, e estendeu os céus à sua imensidão, bilhões de anos de tempo cósmico poderiam ter transcorrido nas extremidades do cosmos em apenas um dia terrestre de 24 horas. Haveria tempo mais do que suficiente para que a luz de estrelas distantes chegasse à Terra, de modo que, quando Adão contemplou o céu noturno naquela sexta noite, teria visto algo muito semelhante ao que vemos hoje.
Seis mil anos se passaram desde a Semana da Criação. Se os modelos descritos acima estiverem corretos, a luz que vemos hoje de qualquer estrela a mais de 6.000 anos-luz da Terra terá se originado no próprio quarto dia. Isso incluiria a maioria das estrelas visíveis, todas pertencentes à Via Láctea. Na prática, estamos observando a atividade criativa de Deus no quarto dia enquanto contemplamos o universo!
Então, o que podemos concluir sobre a supernova 1987A? A 170.000 anos-luz de distância, estamos observando um evento que ocorreu no quarto dia, mas cuja luz só chegou até nós em 1987.
A explosão de uma estrela é compatível com uma criação perfeita? Deus disse que as estrelas foram criadas para servirem de sinais e para marcar as estações ( Gênesis 1:14 ) e Deus previu tudo o que aconteceria desde o princípio. O que nos parece destruição é, na verdade, apenas um processo físico que não denota necessariamente qualquer falta de perfeição na criação original. É importante ressaltar que não há perda de vida bíblica envolvida (as criaturas afetadas pela morte causada pela Queda foram aquelas que a Bíblia chama de נֶפֶשׁ חַיָּה ( nephesh chayyāh )) . 6
Referências e notas
Hubble, EP, A Abordagem Observacional da Cosmologia , The Clarendon Press, Oxford, Reino Unido, pp. 50–59, 1937.
Assis, AKT, Neves, MCD e Soares, DSL, Cosmologia de Hubble: de um universo finito em expansão para um universo estático infinito, Segunda Conferência sobre a Crise na Cosmologia, 7–11 de setembro de 2008 | arxiv.org/abs/0806.4481v1, 27 de junho de 2008.
Levantamento de desvio para o vermelho galáctico do campo de dois graus, www2.aao.gov.au/2dF.
Levantamento Digital do Céu de Sloane, www.sdss.org.
Certa vez, em uma aula, usei uma proveta graduada para ilustrar aos meus alunos como funcionam os métodos de datação científica. Meu esquema mostrava uma torneira que pingava diretamente na proveta. Estava bem marcada, por isso meu público podia ver que a proveta tinha exatamente 300 ml de água. O diagrama também mostrava que a água pingava a uma taxa de 50 ml por hora. Perguntei:
– Há quanto tempo a água está pingando na proveta?
– Seis horas – responderam imediatamente alguns deles.
– Muito bom. Como vocês descobriram?
– Dividindo a quantidade de água na proveta (300 ml) pela taxa (50 ml/h).
– Excelente! – disse eu. Vocês veem como é fácil calcular cientificamente a idade de alguma coisa? Todos os métodos de datação que os cientistas usam funcionam exatamente do mesmo modo. Consistem em medir algum fator que está mudando com o passar do tempo.
Os alunos começaram a relaxar quando entenderam que a datação científica não é tão difícil. Então eu os surpreendi:
– O problema é que seis horas é a resposta errada.
Eles me olharam perplexos e desconfiados.
– Eu montei esse experimento e posso lhes dizer que a água está pingando há apenas uma hora. Vocês podem me dizer o que aconteceu?
Depois de se recuperarem do choque, alguém perguntou:
– A torneira estava gotejando mais rápido antes?
– Pode ser – respondi.
– A proveta estava quase cheia quando você começou o experimento?
– Talvez. Mas vocês percebem o que estão fazendo? – perguntei – A fim de calcular uma idade vocês fizeram suposições sobre o passado. Vocês assumiram que a taxa sempre foi 50 ml/h e que a proveta estava vazia quando o experimento começou. Baseados nessas suposições vocês calcularam o tempo de 6 horas.
(Balançaram as cabeças afirmativamente.)
– Vocês ficaram perfeitamente satisfeitos com aquela resposta. Ninguém a desafiou.
(E eles concordaram.)
– Então, quando eu lhes contei a resposta certa, perceberam o que fizeram? Vocês rapidamente mudaram suas suposições sobre o passado a fim de que concordassem com a idade que eu disse a vocês.
Cada cientista deve primeiro fazer suposições sobre o passado antes que possa calcular uma idade. Se o resultado parece concordar com as suposições, ele o aceita alegremente. Mas se não concordar com outra informação, ele mudará suas suposições para que sua resposta seja coerente.
Não importa se a idade calculada é muito velha ou muito jovem. Sempre há muitas suposições que um cientista pode fazer para obter uma resposta consistente.
Subitamente, luzes se acenderam sobre a cabeça de meus ouvintes. Meu público viu, em poucas palavras, como funcionam os métodos de datação1. A datação científica não é uma forma de medir, mas uma forma de pensar.
Replica of skull KNM-ER 1470
Como os métodos funcionam na prática
Uma camada de cinzas vulcânicas na África Oriental, chamada de tufo KBS, ficou famosa por causa dos fósseis humanos encontrados nas suas proximidades1.
Usando o método potássio-argônio (K-Ar), Fitch e Miller foram os primeiros a medir a idade do tufo. Mas seu resultado, de 212–230 milhões de anos, não concordou com a idade dos fósseis (elefante, porco, símios e ferramentas), por isso rejeitaram a data. Disseram que a amostra fora contaminada com argônio em excesso2.
Usando novas amostras de feldspato e pedra-pomes eles dataram “com segurança” o tufo em 2,61 milhões de anos – o que resolveu maravilhosamente bem o problema.
Mais tarde, essa data foi confirmada por outros dois métodos [paleomagnetismo e traços de fissão (fission-track)], e foi amplamente aceito.
Então Richard Leakey encontrou um crânio (chamado KNM-ER 1470) abaixo do tufo KBS, um crânio que pareceu muitíssimo moderno para ter 3 milhões de anos de idade.
Assim, Curtis e outros re-dataram o tufo KBS usando amostras selecionadas de pedras-pomes e feldspato, e obtiveram uma idade de 1,82 milhões de anos. Essa nova data estava de acordo com a aparência do novo crânio3.
Testes de outros cientistas que usaram paleomagnetismo e fission-tracks confirmaram a idade menor.
Então, nos anos 80, apareceu uma nova data, em notável acordo com o tufo KBS, e esta se tornou a mais amplamente aceita.
Tudo isso ilustra que, contrariamente ao senso comum, os métodos de datação não’são o meio principal de se determinar as idades. Os métodos de datação não levam a, eles seguem. Seus resultados’são sempre “interpretados” para concordar com outros fatores, tais como a interpretação evolucionista da geologia e fósseis.
Referências e notas
Para mais informações veja Lubenow, M.L., The pigs took it all, Creation17(3):36–38, 1995; <creation.com/pigstook>.
Fitch, F.J. e Miller, J.A., Radioisotopic age determiniations of Lake Rudolf artifact site, Nature226(5242):226–228, 1970.
Curtis, G.H., et al., Age of KBS Tuff in Koobi Fora Formation, East Rudolf, Kenya, Nature 258:395–398, 4 Dezembro 1975.
Questionando 'Como debater um Criacionista' por Michael Shermer
Um conselho cético é auto-refutável, mostrando um viés religioso
Por: Murk Post
Publicado em: 25 de Abril de 2013 (GMT+10)
Traduzido por: Venelouis PoLaR em 15/10/2014
O naturalismo é uma (irracional) postura religiosa auto-refutável.
[Editor da CMI: Murk Post, do Canadá, escreveu ao Dr. Michael Shermer, editor da The Skeptic, que escreveu um livro intitulado: Como debater um criacionista, pedindo-lhe algumas perguntas e fazendo algumas observações. É uma resposta incisiva muito interessante, apresentada aqui com um par de adições editoriais, mas substancialmente como Murk escreveu.]
Shermer: "Com tantas doutrinas criacionistas mutuamente exclusivas todas alegando infalibilidade e Verdade final, uma posição padrão lógica é de pender para a ciência porque ela nunca faz afirmações sobre verdades absolutistas. Na ciência, todas as conclusões são provisórias, sujeitas a novas evidências e argumentos melhores, a variar antítese da fé religiosa. "(P. 22 no folheto).
Você apresenta seis pontos:
1. Existem conflitantes doutrinas de verdade 2. Posição padrão lógica = ciência 3. Porque ela nunca faz afirmações sobre verdades absolutistas 4. Na ciência todas as conclusões são provisórias (tentativa) 5. A ciência está sujeita a novas evidências e argumentos melhores 6. A ciência é contra proposta - em contraste direto com a fé religiosa (antítese)
Michael Shermer segurando uma edição da revista The Skeptic
Inspecionando os seis pontos:
1. Dado que existem muitos dinheiros falsificados devemos então dizer que o dinheiro real não existe?
Não é a falsificação que dependente do real? Como a ciência pode ser o real se ela não pode nos dizer o que deve ser real? Como pode algo que é "sempre provisório" ser autoritário?
[CMI: Além disso, há muitas posições evolutivas conflitantes: os evolucionistas ateus, evolucionistas teístas (a quem os ateístas cooptam como "idiotas úteis", mas referem-se com desprezo completo), os evolucionistas da Nova Era, evolucionistas-acreditando em astrologia (astrólogos da Nova Era quase todos têm uma mentalidade de evolução), os evolucionistas invocadores de cristal-com-poder, os Raelianos, e até mesmo os evolucionistas de terra plana ...]
2. Invocando a lógica significa que você invoca uma universal, uma limitação conceitual - assim, uma verdade absoluta - a mesma coisa que você está tentando negar.
3. "Porque ela nunca faz afirmações sobre verdades absolutistas". Isto é tão óbvio que eu tenho certeza que você já percebeu isso.
Esta é uma reivindicação de verdade absolutista - portanto, não é ciência pelo seu próprio padrão. Então, qual é a religião que você está então empurrando?
4. "Todos" já diz tudo. Toda a ciência é experimental - mas esta afirmação não é. Como dito acima, esta declaração não pode, portanto, ser cientificamente conhecida, mas sua ciência repousa sobre esta declaração. Você está OK com isso? Sua religião professa o dogma da não-certeza apoiado pela certeza. Para ser um irracionalista (sem a priori existir) você deve primeiro ser um racionalista (a priori existir) porque a manter como verdade que não existe a priori é uma posição a priori.
5. "Sujeito a nova evidência" - emite um lote terrível como uma previsão sobre o futuro que não pode ser cientificamente confirmada porque a ciência é "sempre provisória". Você tem uma bola de cristal cientificamente verificada?
"Melhores argumentos"? Para ter um melhor argumento significa ter um argumento que se conforma mais com a verdade do que outro argumento. Você deve assumir a verdade absoluta para negar a verdade absoluta. Sua tolerância a tontura é admirável.
6. Por seus próprios padrões, é revelado que a sua afirmada "antítese", na verdade, baseia-se em 'apenas' declarações que são baseadas em uma crença de que a própria declaração tenta negar.
"A ciência é sempre provisória" é uma posição sobre a natureza da realidade que não é provisória - portanto, não é ciência. Isto é suficiente para expor que a ciência requer crença.
Todo mundo começa a partir da fé. Não é dado ao homem fazer o contrário - esta é a natureza da realidade. Deus estabeleceu limites para a possibilidade e não importa como nós, seres humanos tentamos, não podemos contorná-la. Não é uma questão de começar da crença ou não, mas se começamos a partir de uma crença de que é verdadeira ou não.
Uma refutação vem nessas formas:
> a verdade absoluta não existe (absolutamente?)
> a verdade absoluta não pode ser conhecida (e isto é absolutamente verdadeiro?)
ou:
> não há certeza (isto deve ser muito certo)
ou:
> não podemos conhecer nada com certeza (tem certeza?)
[CMI: ou:
> devemos acreditar apenas nas reivindicações que podem ser verificadas cientificamente (você pode verificar esta afirmação cientificamente?)]
Você está interessado em encontrar a verdade? Ou você já determinou de antemão que apenas explicações naturalistas são permitidas? (Mais uma vez a ironia disso é gritante; afirmando que só existem explicações naturalistas requer a crença metafísica de que a natureza da realidade é apenas material.)
Veja, pressupostos metafísicos (religiosos) não podem ser evitados - negar a possibilidade deles exige invocá-los (é um dos limites da possibilidade de que Deus determinou para que todas as pessoas possam ver claramente que Ele fez isso).
[CMI: Além disso, sua fé na ciência ignora as questões meta-ciência que fazem a ciência possível. Histórica e logicamente, a ciência nasceu da cosmovisão bíblica que você tentar minar.]
Se você substitui a ciência com explicações naturalistas você é um pouco mais preciso - no entanto, como eu tenho certeza que você já sabe, isso iria expor o fato de que você está empurrando uma religião. Esta posição não permite a procura da verdade 'onde ela pode ser encontrada' porque limita a pesquisa a relevantes explicações - antes da pesquisa mesmo ter começado!
A verdade é necessária - ninguém pode evitá-la. A verdade só pode ser garantida por uma fonte possível. Ele revelou a si mesmo. Se você está procurando a verdade que você vai encontrá-Lo. Se você não deseja encontrar a verdade - não é por causa de um problema intelectual ou dificuldades lógicas (como eu mostrei a sua religião é incoerente e auto refutável) e sim, é um problema da sua vontade.
Você sabe que Ele existe - você tem um machado para usar e não quer enfrentá-lo. Você não pode fugir da realidade que você é feita à imagem d'Ele - você não pode deixar de trabalhar para Ele, que é o que você está fazendo, embora involuntariamente. Não seria bom estar de acordo com o que determina a realidade?
Com Ele esta futilidade cessa. "Todos os que são da verdade me ouvem." (Jesus)
Sabemos hoje, que tudo o que preciso para ter um ciclo 'dia-noite' é uma Terra em rotação e luz vindo de uma direção. A Bíblia nos diz claramente que Deus criou a luz no primeiro dia, assim como a Terra. Assim, podemos deduzir que a Terra já estava girando no espaço em relação a essa luz criada.
Deus pode, é claro, criar luz sem uma fonte secundária. A Bíblia diz que nos novos Céus e Terra não haverá qualquer necessidade de sol nem de lua (Ap 21:23). E em Gênesis, Deus define um dia e uma noite em termos de luz ou de sua ausência.
"Criacionistas progressistas" às vezes usam o argumento de que os dias são realmente longos períodos, embora Deus poderia ter usado palavras para isso se Ele tivesse realmente quisesse significar isso (Veja: Quanto tempo eram os dias de Gênesis 1?). A criação do sol após a Terra compromete as tentativas dos criacionistas progressivos harmonizar a Bíblia com os bilhões de anos.
Então, eles têm de explicar esta doutrina ausente. Alguns afirmam que o que realmente aconteceu neste 'quarto dia' foi que o sol e outros corpos celestes 'apareceram' quando uma camada densa nuvem se dissipou depois de milhões de anos. Isto não é apenas ciência fantasiosa, mas má exegese do hebraico. A palavra 'asah significa' fazer' durante todo Gênesis 1, e às vezes é usada como sinônimo de "criar" (bara'), por exemplo, em Gênesis 1: 26-27.
É puro desespero aplicar um significado diferente para a mesma palavra na mesma construção gramatical na mesma passagem, só para se encaixar com ideias evolucionistas ateias como o "big bang". Se Deus quisesse ter significado 'apareceu', então ele provavelmente teria usado a palavra hebraica para aparecer (ra'ah), como quando a terra seca 'apareceu' assim como as águas se reuniram em um lugar no Dia 3 (Gênesis 1: 9). Nós checamos mais de 20 grandes traduções, e todas ensinam claramente que o sol, a lua e as estrelas foram feitas no quarto dia.
No quarto dia, o atual sistema foi instituído como luzeiros temporários da Terra que foram feitos, por isso a luz difundida a partir do primeiro dia já não era necessária. [Curiosamente, depois de escrever este artigo, eu achei que Calvin tinha feito o mesmo ponto (Veja: Calvin diz: Gênesis significa o que diz). Isto mostra que, mais uma vez, os céticos apenas repetem argumentos há muito tempo refutados por estudiosos que acreditam na Bíblia.]
Notas
1. Isso teria sido muito significativo para visões de mundo pagão que tendiam a adorar o sol como fonte de toda a vida. Deus parece estar tornando incisivamente claro que o sol é secundário ao Seu poder criador, como a fonte de tudo. Ele não 'precisa' do sol, a fim de criar a vida (em contraste com as crenças evolucionistas teístas.)
2. Esta, ordem contra-intuitiva incomum de criação (luz antes do sol), na verdade, acrescenta uma marca de autenticidade. Se a Bíblia tivesse sido o produto de "editores" tardios, como muitos críticos alegam (Veja: Será que Moisés realmente escreve Gênesis?), eles certamente teriam modificado isso para se encaixar com seu próprio entendimento. Só muito recentemente é que o fato astronômico tem percebido que um ciclo 'dia-noite' precisa apenas de luz + rotação. Ter 'dia' sem o sol seria geralmente inconcebível para os antigos.
Radiocarbono em diamantes: inimigo de bilhões de anos
O que diamantes brilhantes e rígidos e os grafites de lápis quebráveis 'principalmente' têm em comum? Eles são as duas formas (alótropos) de carbono. A maioria dos átomos de carbono são 12 vezes mais pesado que o hidrogênio (12C), cerca de um em 100 é 13 vezes mais pesado (13C), e um em cada trilhão (1012) é de 14 vezes mais pesado (14C). Destes diferentes tipos (isótopos) de carbono, 14C é chamado radiocarbono, porque é radioativo-se decompõe ao longo do tempo.
Radiocarbono em diamantes: inimigo de bilhões de anos
Por Dr. Jonathan Sarfati
Publicado em 24 de setembro de 2007 | Atualizado em 12 de novembro de 2024
A presença de carbono-14 radioativo (14C) em diamantes indica que eles não podem ter milhões de anos, mas são jovens, de acordo com a história bíblica.
Carbono
O que os diamantes duros e brilhantes e a mina de lápis macia e sem brilho têm em comum? Ambos são formas (alótropos) de carbono. A maioria dos átomos de carbono é 12 vezes mais pesada que o hidrogênio ( ¹²C ), cerca de um em cada 100 é 13 vezes mais pesado ( ¹³C ) e um em cada trilhão (10¹² ) é 14 vezes mais pesado ( ¹⁴C ). Desses diferentes tipos (isótopos) de carbono, o ¹⁴C é chamado de radiocarbono, porque é radioativo — ele se decompõe ao longo do tempo.
Datação por radiocarbono
wikimedia commonsO famoso Diamante Hope, que foi descoberto há cerca de quatro séculos.
Algumas pessoas tentam medir a idade pela quantidade de carbono -14 que se desintegrou. Muitos acreditam que a datação por radiocarbono comprova bilhões de anos.<sup> 1</sup> Mas os evolucionistas sabem que isso não é possível, porque o carbono -14 se desintegra muito rapidamente. Sua meia-vida (t <sub>1/2</sub> ) é de apenas 5.700 ± 30 anos — ou seja, a cada 5.700 anos, metade dele se desintegra. Após duas meias-vidas, resta um quarto; após três meias-vidas, apenas um oitavo; após 10 meias-vidas, resta menos de um milésimo.<sup> 2</sup> De fato, uma porção de carbono- 14 tão massiva quanto a Terra teria se desintegrado completamente em menos de um milhão de anos.<sup> 3</sup>
Portanto , se as amostras tivessem realmente mais de um milhão de anos, não haveria mais radiocarbono. Mas não é isso que encontramos, mesmo com detectores de 14C muito sensíveis .
Diamantes
O diamante é a substância mais dura conhecida, portanto seu interior deve ser muito resistente à contaminação. A formação de diamantes requer altíssima pressão — pressão encontrada naturalmente na Terra apenas em grandes profundidades. Assim, provavelmente se formaram a uma profundidade de 100 a 200 km. Geólogos acreditam que os diamantes que encontramos devem ter sido transportados supersônicamente para a superfície, em erupções extremamente violentas através de condutos vulcânicos. Alguns são encontrados nesses condutos, como os kimberlitos, enquanto outros diamantes foram liberados pela erosão hídrica e depositados em outros locais (chamados diamantes aluviais). Segundo os evolucionistas, os diamantes se formaram há cerca de 1 a 3 bilhões de anos .
Namoro com diamantes
O geofísico Dr. John Baumgardner , do grupo de pesquisa RATE , investigou o carbono -14 em vários diamantes. Não deveria haver carbono -14 se eles realmente tivessem mais de um bilhão de anos, mas o laboratório de radiocarbono relatou que havia mais de 10 vezes o limite de detecção. Portanto, a "idade" por radiocarbono era muito inferior a um milhão de anos! O Dr. Baumgardner repetiu o experimento com mais seis diamantes aluviais da Namíbia, e estes apresentaram ainda mais radiocarbono.
A presença de radiocarbono nesses diamantes, onde não deveria haver nenhum, é, portanto, uma prova brilhante de um mundo 'jovem', como registra a Bíblia .
Referências e notas
Por exemplo, o "Reverendo" Barry Lynn, líder do grupo anticristão Americans United for Separation of Church and State (Americanos Unidos pela Separação entre Igreja e Estado), proclamou em um debate televisionado nacionalmente: "Datação por carbono mostra que a Terra tem bilhões de anos!" ( Firing Line , PBS, 19 de dezembro de 1997). E em 2023, o renomado especialista em vacinas, Dr. Paul Offit, afirmou em uma análise imparcial do debate entre Ken Ham e Bill Nye : "Nye disse que a datação por carbono de rochas mostrou que Ham errou por cerca de 4,5 bilhões de anos". Ou o Dr. Offit ou o Sr. Nye cometeram um grave erro aqui. (Offit, P., Creationist Ken Ham vs. Bill "the Science Guy" Nye: Ham and Nye shown how debates about the unbatable can be valuable. But it depends on the integrity and honesty of the debaters, pauloffit.substack.com, 5 de julho de 2023.)
O tempo t desde o início do decaimento radioativo pode ser dado por N/N₀ = e⁻λt , onde N é o número de átomos medido no presente; N₀ é o número inicial; λ é a constante de decaimento, que está relacionada à meia-vida t½ por λ = ln2/t½ . Isso pressupõe que o sistema seja fechado, de modo que a perda de átomos ocorra exclusivamente por decaimento e que a taxa de decaimento seja constante. Veja também Sarfati, J., Refuting Compromise , 2ª ed ., cap. 12, CPB, 2011.
A massa da Terra é de 6 × 10²⁷ g, equivalente a 4,3 × 10²⁶ moles de ¹⁴C . Cada mol contém o número de Avogadro (N<sub> A</sub> = 6,022 × 10²³ ) de átomos. São necessárias apenas 167 meias-vidas para se chegar a um único átomo (log₂ ( 4,3 × 10²⁶ mol × 6,022 × 10²³ mol⁻¹ ) = log₁₀ ( 2,58 × 10⁵⁰ ) / log₁₀ 2 ), e 167 meias-vidas correspondem a um período bem inferior a um milhão de anos. Pesquisas de 2021 sobre taxas de decaimento radiométrico mostram que a meia -vida ( t½ ) do ¹⁴C é de 5,70 ± 0,03 mil anos. (Kondev, FG, Wang, M., Huang, WJ, Naimi, S., Audi, G., A avaliação das propriedades nucleares pelo NUBASE2020, Chinese Physics C. 45 (3):030001, 2021 | doi:10.1088/1674-1137/abddae.) Durante anos, a literatura apresentou uma meia-vida de 5.730 ± 40 anos. No entanto, os métodos mais antigos de medição de decaimento utilizavam contadores de cintilação beta, que contabilizam apenas os decaimentos. Métodos mais modernos podem ser mais precisos e exatos, utilizando a espectrometria de massa por agregação (AMS), que contabiliza os próprios átomos, e não apenas os que decaem.
A espectrometria de massa com acelerador (AMS) conta os próprios átomos e pode detectar um átomo de 14C em mais de 10¹⁶ átomos, ou medir uma razão 14C /C < 10¹⁶ ou 0,01% da razão moderna (0,01 pMC, porcentagem de carbono moderno).
Caso contrário, o diamante se transformaria em grafite, o chamado "grafite" de lápis. Veja Snelling, A., Diamonds—evidence of explosive geological processes , Creation 16 (1):42–45, 1993; cf. Diamond Science, diamondwholesalecorporation.com, acessado em 22 de maio de 2006.
Vardiman, L., Snelling, A. e Chaffin, E., Radioisótopos e a Idade da Terra , Vol. II, cap. 8, ICR, 2005. O Dr. Baumgardner também investigou muitas amostras de carvão, e descobriu-se que elas também continham 14C .
Dê uma olhada nas letras vermelhas. Observe onde diz que as áreas "pintadas" indicam evidências fósseis "sólidas". Assim, a evidência "real" mostra a estagnação, não mudança. Os dinossauros eram dinossauros e não se alteraram em outra coisa ou de outra coisa. As áreas "em branco" mais uma vez, são uma história sobre as provas. A evidência não prova a evolução como nos é dito.
Manetho foi um historiador/sacerdote egípcio do século 270 a.C.¹ Sua cronologia dos reis do Egito, a qual difere da Bíblia por vários séculos, levou alguns arqueólogos evangélicos extraviarem-se. Esta não é uma questão pequena, e tem sido usada para desacreditar a Bíblia. Mas mesmo vários historiadores seculares estão começando a perceber que a cronologia de Manetho está precisando de drástica revisão abaixo por razões que ele não teria conhecido; alguns dos reis que ele pensava terem reinado sucessivamente na verdade teriam governado simultaneamente.²
É importante ressaltar, no entanto, um pouco do que Manetho escreveu corrobora diretamente com Gênesis. Em sua história do Egito, ele "escreveu que 'depois do Dilúvio' Ham, filho de Noé gerou "Aegyptus ou Mestraim', que foi o primeiro a estabelecer-se na área hoje conhecida como o Egito no tempo em que as tribos começaram a se dispersar."³
A Bíblia diz que Ham gerou Mizraim. O Egito hoje (uma das primeiras civilizações a surgir depois do Dilúvio) é conhecido como Mizraim ou mitsrayim (מצרים) no hebraico. *4 Manetho escreveu que a dispersão das tribos foi cinco anos depois que Peleg, o descendente de Noé, nasceu. 5 Isto concorda com Gênesis 10:25, que diz de Peleg que "nos seus dias a terra *6 foi dividida."
Além disso, o egiptólogo Patrick Clarke diz que desde os primeiros tempos dos antigos egípcios "chamavam a si mesmos e sua terra km.t (tanto pronunciado como um gutural Kham (ou seja: Cham ou Ham)." *7,8 Claramente, não apenas Manetho, mas o antigo egípcios, em geral, sabia muito bem o que muitos teólogos e seminaristas modernos gostam de negar - que Gênesis é história.
Referências e notas
‘Manetho’s History of Egypt’ in Manetho, with an English Translation by W.G. Waddell, Harvard University Press, Cambridge, Massachusetts, 1964, p. xi, cited in ref. 3.
In recent times, CMI’s Journal of Creation has featured a still-to-be-finished series of articles developing a new revised chronology of Egypt.
Ashton, J, Evolution Impossible, Master Books, Green Forest AZ, 2012, p. 115, citing ref. 1, p. 7.
John Gill’s famous 18th century commentary states, “The word is of the dual number, and serves to express Egypt by, which was divided into two parts, lower and upper Egypt.” Egypt is also known as Miṣr (مصر) Arabic, Egypt’s current language, although that is likely a later development.
‘Book of Sothis App. IV’, in ref. 1, p. 239, also Ussher, J, The Annals of the World, 1658, sections 1657–1762 am, available creation.com/store.
Hebrew eretz (ארץ) can mean the physical earth, or its nation(s). Cf. English ‘land’ = physical ground or nation, thus eretz Israel = the nation (land) of Israel. The clear context here from Genesis 11 a few verses on is that the “earth” that was divided is “the earth [that] had one language and one speech”. Thus it must mean the division of nations following Babel. See creation.com/peleg2 for further documentation.
Clarke, P., personal communication, 4 November 2012.
The t at the end of km.t marked feminine gender and was not pronounced.
Muitos leitores da Bíblia são tentados a apenas pular as longas listas de nomes que, por vezes, parecem interromper a narrativa da Escritura. Estas genealogias aparecem muitas vezes em Gênesis, Crônicas e outros lugares no Velho Testamento. Mateus e Lucas ambos têm uma genealogia de Jesus, traçando sua ascendência de volta a Abraão e Adão. Enquanto as pessoas modernas tendem a se entediar por estas listas, as pessoas a quem a Escritura foi escrita originalmente teriam vistos estas genealogias como partes vitais das Escrituras, aterrando a narrativa na história real e as pessoas que realmente viveram.
Adão a Noé
As primeiras genealogias que encontramos em Gênesis (nos capítulos 5 e 11) são chamadas de 'chrono-genealogias' porque a idade do pai no momento do nascimento do filho são dadas. Isso nos permite saber com um grau muito elevado de precisão (dentro de um ano) quanto tempo se passou durante a cada geração. Também permite-nos saber que não há lacunas entre os nomes.
Genesis 5 dá 10 gerações, desde Adão a Noé, terminando com três filhos de Noé.
Além de dar seus nomes em ordem, a passagem parece focar em duas estatísticas-chave para cada descendente - a sua idade quando ele foi pai de um filho e sua vida útil total. Seu ponto principal é que muitas gerações e muitos anos se passaram entre Adão e Noé. Quanto ao contexto, aparentemente gira em torno de duas ideias - os resultados negativos da queda da humanidade e do seu crescimento numérico. ... Ela também serve como uma ponte literária entre eles, como se quisesse dizer simplesmente: "Muito tempo se passou aqui." 1
Mas não é só "quanto tempo se passou aqui". Ele é específico o suficiente para permitir-nos a construir uma linha do tempo desde a criação até o dilúvio. Há um par de pontos teológicos importantes que a genealogia faz. Em primeiro lugar, o filho de Adão, Seth foi "conforme à sua imagem e semelhança" (Gênesis 5: 3). Isto significa que Adão passou sua natureza pecaminosa a seus descendentes. Em segundo lugar, a morte entrou com o pecado. "E ele morreu" é um refrão constante na genealogia, o que torna a digressão de entrada imortal de Enoque ainda mais surpreendente, dando a entender que a morte não é o fim último da humanidade. A declaração de Lameque que Noé iria trazer para eles descanso também nos diz dessa promessa de Deus de um Redentor que vem em Gênesis 3:15 tendo sido a esperança de antediluvianos piedosos ao longo das gerações.
A Tabela das Nações
Gênesis 10 não é uma genealogia estrita como tal, mas ela traça a origem das nações ao redor de Israel na época de Moisés. Não lida com grupos de pessoas fora da área que Israel estaria familiarizado. Não vemos, por exemplo, a origem dos chineses, dos irlandeses, ou dos aborígines australianos; apenas os grupos de pessoas que viventes no Oriente Médio na época de Moisés. Esta passagem não está interessada nos filhos individuais de Sem, Cam e Jafé, tanto quanto os grupos de pessoas que vieram a partir deles. Isto é indicado em parte por uma omissão quase completa de detalhes cronológicos, exceto para a observação de que a terra foi dividida nos dias de Peleg (mas nesta parte do Gênesis, é uma parte da narrativa que ainda está por vir - a confusão em Babel) .
Mesmo que muitas dessas nações se tornam inimigos de Israel, aqui o foco está na sua origem comum a partir dos filhos de Noé, e mão soberana de Deus sobre a formação das nações após o Dilúvio. Por isso, não deve ser uma surpresa para o leitor astuto das Escrituras, que algumas dessas nações acabaram por ser incluídas de indivíduos que seriam salvos através do prometido Salvador. E alguns como - Tamar, Ruth, e Raabe - iriam mesmo ser incluídos na ascendência deste Salvador.
Shem a Abrão
Gênesis 11 dá 9 gerações de Sem a Terah, que, como Noé, pai de três filhos. O mais importante foi Abraão, é claro. Esta genealogia é uma chronogenealogia como a genealogia de Gênesis 5. Ao contrário de Gênesis 5, esta omite o "e ele morreu" abstendo-se, com o pouco mais otimista X viveu Y anos após gerando Z ". Isto serve a função literária de ligar a narrativa anterior de Babel para a história da Abrão e seus descendentes que se seguirão.
O elemento mais notável da genealogia é a constante diminuição da expectativa de vida. Enquanto o apenas tempo de vida muito curto (em comparação com a norma!) Em Gênesis 5 foi explicado por Enoque sendo levado para o céu, os outros antediluvianos todos pareciam viver uma vida muito longa. Mas, depois do dilúvio, cada geração vive vidas mais curtas e mais curtas, até que muitas crianças morrem antes dos pais de vida mais longa, e mesmo antes de avós e além. Na época de Abraão, a expectativa de vida eram apenas de cerca de duas vezes o que nós experimentamos no mundo moderno.
Estas genealogias são realmente indícios de que Genesis pretende ser tomado como história, e não mito, porque a cronologia reivindica para definir cada pessoa em um lugar específico na história. Muitas das pessoas nas genealogias não são mencionadas em outros lugares na Escritura, assim que seu único objetivo parece ser o de ligar um personagem importante com outro (ligando Noé de volta para Adão, por exemplo). No momento em que Moisés escreveu Gênesis, a maioria destes nomes não seriam de outra forma significativa para os hebreus.
Genealogias judaicas
No período do Antigo Testamento, era importante para todos os judeus ser capaz de rastrear sua linhagem de volta para provar sua filiação tribal, era ainda mais importante para levitas e os descendentes de Arão, a fim de provar que eram qualificados para serem sacerdotes (ver Ezra 2: 59-63). Assim, podemos ver que nos dias de Moisés, ele se diz ser o descendente de Levi, Coate e Amram. Isto é suposto para cobrir um período de 400 anos, e nos são dadas gerações suficientes para cobrir apenas cerca de ¼ disso. Que não é um problema, porém; a genealogia não se preocupa em dar uma lista exaustiva dos ancestrais; apenas o suficiente para nos dizer de onde Moisés vem. Portanto, temos Levi e seu filho, juntamente com o pai de Moisés.
Isto é verdadeiro com outras genealogias na OT. Por exemplo, há apenas cerca de 1.000 anos entre o filho de Judá: Perez e Davi, mas Ruth 4: 18-22 nos dá apenas 10 gerações - novamente, muito menos do que precisamos para ter uma genealogia exaustiva. Mas, pela mesma razão, isso não é um problema.
A genealogia de Mateus
Como argumentei em um artigo anterior, o propósito da genealogia de Mateus foi traçar a linha legal de legítimos herdeiros do trono de Davi. Isto, naturalmente, incluído descendência biológica, mas também alguns relacionamentos "adotivos ", onde um homem não tinha descendente, ou cujos descendentes foram desqualificados. A genealogia de Mateus usou do óbvio "telescópico", onde as pessoas menos importantes foram omitidas.
Mateus afirma que sua escolha dos nomes é significativa por causa do número de gerações listadas "Então todas as gerações desde Abraão até Davi foram quatorze gerações, e desde Davi até a deportação para Babilônia, catorze gerações, e desde a deportação para Babilônia até Cristo, catorze gerações "(Mateus 1:17). O significado mais plausível para isto é porque o valor numérico das letras no nome de Davi somavam 14.
A genealogia de Lucas
A genealogia de Lucas parece muito mais completa, e foi provavelmente a genealogia biológica de Maria, por isso vemos ascendência biológica de Jesus a partir de Davi, e de Adão. Seria de se esperar que Lucas iria querer dar-nos uma cadeia completa de vincular Jesus biologicamente com Davi. Mas desde Adão até Davi, ele usa fontes do Antigo Testamento, que têm lacunas, como explicado acima.
A genealogia de Lucas é incomum nisso, ele começa com Jesus e volta para Adão - todas as outras genealogias vão de pai para filho. Isto lhe permite terminar com, "o filho de Adão, filho de Deus." Isto significa que a genealogia começa e termina com um "filho de Deus", e agradavelmente faz o ponto teológico que Jesus está ligado a toda a humanidade via descendência comum de Adão.
Registros históricos confiáveis
Quando olhamos para as genealogias bíblicas, temos de apreciar o propósito por trás de cada uma delas, e isso nos ajuda a interpretá-las corretamente. E quando nós interpretamo-las corretamente, vemos que são registros históricos confiáveis.
Referências e notas
1. Kein, W., Blomberg, C., Hubbard, Jr, R., Introduction to Biblical Interpretation (Thomas Nelson: Nashville, 1993), p. 340.
Galáxia NGC 4414 fotografada em 1995 usando o Hubble Space Telescope. Distância estimada da Terra: 60 milhões de anos-luz.
Usando fotografia infravermelha, uma equipe de astrônomos do observatório “European Southern Observatory” capturaram fotos do que é chamado de galáxias extremamente distantes. Um artigo publicado por eles em 11 de dezembro de 2002 assegura-nos que: As imagens obtidas revelam galáxias extremamente distantes, que aparecem na radiação infravermelha, mas que mal são detectadas nas mais distantes imagens ópticas adquiridas com o telescópio Hubble (HST). 1
Estas galáxias ficam tão longe de nós que, de acordo com as teorias mais comuns de como a luz viaja no espaço, teria levado muitos bilhões de anos para sua luz ter chegado a nós. 2
Há diferentes modelos para explicar como a luz poderia ter nos alcançado num universo tão jovem,3 mas a síntese é a seguinte:
Se a hipótese do ‘big bang’ dos astrônomos evolucionistas estiver correta, então a luz das galáxias mais distantes levou mais tempo para nos alcançar. Portanto, as galáxias bilhões de anos-luz daqui estariam também bilhões de anos mais próximas do momento da ‘explosão’ primordial sugerida.4 Então, já que estamos vendo essas galáxias não como elas são hoje, mas como elas eram quando a luz partiu delas, os adeptos do ‘big bang’ esperam que nós as estejamos observando como existentes num estágio muito mais jovem da sua alegada evolução do que as galáxias mais perto de nós. De fato, estas descobertas recentes se encaixam muito bem com a cosmologia Bíblica, i.e. um universo jovem. Uma das admissões mais reveladoras no artigo recente foi o seguinte:
‘… algumas delas (galáxias) são claramente bastante grandes e exibem uma estrutura em espiral semelhante àquela vista em galáxias próximas (veja a foto). Não é óbvio que modelos teóricos atuais possam explicar facilmente tais galáxias terem evoluído até este estágio tão cedo na vida do Universo…’
A visão mais profunda do universo através do Hubble. Esta imagem, dito pela NASA, nos oferece uma visão… ‘de volta ao início do tempo’, e oferece ‘… dicas importantes para o nosso entendimento da evolução do universo’. Esta foto abrange uma vista do céu de cerca de 1/30 do diâmetro da lua cheia e representa uma visão’típica de todas as galáxias no céu inteiro, se pudessemos vê-lo.
Problemas de espiral
As galáxias estão em rotação, e as parte exteriores giram mais devagar do que as internas. Elas comumente mostram uma estrutura em espiral, que supostamente é resultado desta rotação, começando de uma estrutura de barra simples. Mas, isto significa que depois de alguns giros, as galáxias vão ‘se dar corda, como num despertador’, a ponto de destruir a estrutura espiral.
Tanto as galáxias vizinhas quanto aquelas distantes exibem o mesmo tipo de estrutura espiral. O astrônomo evolucionista é então ‘pego’ de duas formas:
As galáxias próximas não deveriam mais ser espirais, pois pelo tempo que se supõe que passou, elas há muito deveriam ter se ‘apertado’, obscurecendo sua aparência espiral.5,6
Estas galáxias recém-observadas são ultra-jovens (de acordo com a crença do ‘big bang’) porque elas estão tão distantes. Deste modo, elas não deveriam ter tido tempo para iniciar nem mesmo os princípios de um espiral.
O artigo ainda deu ênfase à confusão confrontando os astrônomos de ‘longas-eras’, dizendo:
‘… em contraste às galáxias com desvios do vermelho semelhantes7 (e assim, nesta época mais primordial), encontradas mais freqüentemente em pesquisas usando a parte visível do espectro eletromagnético, a maioria das galáxias ‘selecionadas por infravermelho’ demonstra relativamente pouca atividade visível de formação de estrelas. Elas parecem, de fato, já ter formado a maioria das suas estrelas [itálico adicionado] e em quantidades suficientes para explicar pelo menos a metade da massa luminosa total do Universo naquela época. Dado o tempo para chegar a este estado, elas deveriam ter se formado obviamente ainda mais cedo na vida do Universo e, então, provavelmente estão dentre as galáxias mais ‘velhas’ até agora conhecidas.1
Um par singular de galáxias conhecido como NGC 3314, localizado a cerca de 140 milhões de anos-luz da Terra. Neste alinhamento, uma galáxia espiral de face para nós fica exatamente na frente de uma galáxia espiral maior.
Os resultados parecem estar consistentes com a noção de que o Senhor, o qual falou e fez as estrelas existirem, também fez as galáxias basicamente ‘como’são’. Ele bem poderia ter criado algumas galáxias em formato de espiral, algumas sem este formato e outras em formato meio-espiral, e esta variedade ‘declararia a glória do Senhor’ (Salmo 19:1).
Num instante Ele esticou os céus (Isaías 48:13) e no Quarto Dia da Semana da Criação, exatamente como Ele diz em Sua Palavra, ‘ Ele fez as estrelas também’. (Gênesis 1:16).
Referências e notas
Deepest Infrared view of the universe—VLT images progenitors of today’s large galaxies, ESO Press release 23/02, 11 December 2002, <www.eso.org/outreach/press-rel/pr-2002/pr-23-02.html>. (A visão infravermelha mais profunda do universo – imagens VLT, progenitores das grandes galáxias de hoje, artigo publicado pela ESO em 23/02, de 11 de dezembro de 2002.). Regresar ao texto.
Desde Einstein, tem que se especificar um ponto de referência, pois foi demonstrado que o tempo passa de maneira diferente para observadores/localizações diferentes. Em particular, a gravidade atrasa o tempo. Então, aqui, a terra é o ponto de referência. Para mais informações, veja Humphreys, R., Starlight and Time, Master Books, Arizona, 1994. Regresar ao texto.
Cosmólogos do ‘Big bang’ não consideram esta como uma explosão no sentido usual, mas como uma expansão rápida do espaço de um ponto de densidade infinita. Regresar ao texto.
Scheffler, H. and H. Elsasser, Physics of the galaxy and interstellar matter, (Físicas da Galáxia e massa interestelar, Springer–Verlag, Berlin, pp. 352–353, 401–413, 1987. Porém, isto postula uma teoria complexa de ondas de densidade espiral como uma solução ao problema. Mas isto é um solução AD hoc (para essa finalidade) , i.e., não há evidência para isto, e é uma suposição arbitrária simplesmente inventada para resolver o problema, e requer muitos ajustes. Regresar ao texto.
Quando uma fonte da luz está se distanciando do observador, as linhas’são desviadas para a freqüencia mais baixa (vermelho) do espectrum, por isto o termo‘Red Shift’ (desvio para o vermelho). Mas para objetos distantes, o desvio vermelho é causado principalmente pela expansão do espaço que vai levando estes objetos. O famoso advogado-que-virou-cosmólogo, Edwin Hubble, de onde veio o nome HST, descobriu que objetos distantes tinham desvios vermelhos aproximadamente proporcionais à distância de nós. Então, de acordo com o dogma do ‘big bang’, objetos com desvios do vermelho semelhantes deveriam ter sido formados mais ou menos no mesmo momento. Regresar ao texto.
Energia e matéria são consideradas quantidades básicas universais. No entanto, o conceito de informação tornou-se tão fundamental e de longo alcance, justificando a sua classificação como a terceira quantidade fundamental. Uma das características intrínsecas da vida é a informação. Uma análise rigorosa das características da informação demonstra que os seres vivos intrinsecamente refletem tanto a mente e a vontade de seu Criador.
As informações nos confrontam, a cada passo, tanto em termos tecnológicos e nos sistemas naturais: em processamento de dados, em engenharia de comunicações, engenharia de controle, nas línguas naturais, em sistemas de comunicações biológicas, e em processos de informação em células vivas. Assim, a informação se tornou justamente conhecida como a terceira quantidade fundamental, universal. De mãos dadas com a rápida evolução da tecnologia de computadores, um novo campo de estudo - que de ciência da informação - tem atingido uma significância que não poderia ter sido prevista apenas duas ou três décadas atrás. Além disso, a informação tornou-se um conceito interdisciplinar de central importância indiscutível para campos como a tecnologia, biologia e linguística. O conceito de informação, portanto, requer uma discussão aprofundada, particularmente no que diz respeito à sua definição, com a compreensão de suas características básicas e o estabelecimento de princípios empíricos. Este artigo tem a intenção de fazer uma contribuição para essa discussão.
[...]
Informações em organismos vivos
A vida nos confronta em uma excepcional variedade de formas; para toda a sua simplicidade, mesmo um organismo monocelular é mais complexo e totalmente proposital em seu design do que qualquer produto de invenção humana. Embora a matéria e a energia sejam necessárias propriedades fundamentais da vida, que por si só não implica qualquer diferenciação básica entre animados e inanimados sistemas. Uma das características principais de todos os organismos vivos, no entanto, é a informação que eles contêm para todos os processos operacionais (desempenho de todas as funções da vida, a informação genética para a reprodução). Braitenberg, um cybernecista alemão, apresentou evidências "de que a informação é uma parte intrínseca da natureza essencial da vida." A transmissão da informação desempenha um papel fundamental em tudo o que vive. Quando os insetos transmitem o pólen das flores, informação (genética) é essencialmente transmitida; a matéria envolvida neste processo é insignificante. Embora isso em nada forneça uma descrição completa a vida ainda, isso toca em um fator extremamente crucial.
Sem dúvida, o mais complexo sistema de processamento de informação que existe é o corpo humano. Se tomarmos todos os processos de informação humanos em conjunto, isto é, os conscientes (linguagem, funções controladas por informações dos órgãos, sistema hormonal), isso envolve o processamento de 1024 bits por dia. Este número astronomicamente alto é maior por um fator de um milhão do que o conhecimento humano total de 1.018 bits armazenados em todas as bibliotecas do mundo.
O conceito de informação
Com base na teoria da informação de Shannon, o qual pode agora ser considerado como sendo matematicamente completo, estendemos o conceito de informação que diz respeito ao quinto nível. Os princípios empíricos mais importantes relacionados com o conceito de informação foram definidos na forma de teoremas. Aqui está um breve resumo deles:¹
1. Nenhuma informação pode existir sem um código.
2. Nenhum código pode existir sem uma convenção livre e deliberada.
3. Nenhuma informação pode existir sem os cinco níveis hierárquicos: estatística, sintaxe, semântica, pragmática e aporia.
4. Nenhuma informação pode existir em processos puramente estatísticos.
5. Nenhuma informação pode existir sem um transmissor.
6. Nenhuma cadeia de informação pode existir sem uma origem mental.
7. Nenhuma informação pode existir sem uma fonte mental inicial; isto é, a informação é, por sua natureza, mental e não uma quantidade material.
8. Nenhuma informação pode existir sem uma vontade
A Bíblia há muito tempo deixou claro que a criação dos grupos originais dos seres vivos plenamente operacionais, programados para transmitir suas informações para seus descendentes, foi o ato deliberado da mente e da vontade do Criador, o grande Logos Jesus Cristo.
Já mostramos que a vida é esmagadoramente carregada de informação; deve ficar claro que uma aplicação rigorosa da ciência da informação é devastador para a filosofia materialista sob o disfarce de evolução, e apoia firmemente a criação de Gênesis. ²
¹ This paper has presented only a qualitative survey of the higher levels of information. A quantitative survey is among the many tasks still to be performed.
² This paper has been adapted from a paper entitled ‘Information: the third fundamental quantity’ that was published in the November/December 1989 issue of Siemens Review (Vol. 56, No. 6).
O Dr.Werner Gitt obteve seu diploma em engenharia pela Universidade Técnica de Hanover, na Alemanha. Depois de receber seu Ph.D. ele foi nomeado chefe do Departamento de Tecnologia da Informação do Instituto Federal Alemão de Física e Tecnologia (Physikalisch-Technische Bundesanstalt [PTB], em Braunschweig). Sete anos depois, foi promovido a Diretor e Professor PTB.1 Suas preocupações de pesquisa envolveram ciência da informação, matemática e tecnologia de controle de sistemas. Seus muitos resultados de pesquisas originais foram publicados em revistas científicas ou têm sido objeto de trabalhos apresentados em conferências científicas e em universidades na Alemanha e ao redor do mundo.
Três pré-requisitos devem ser cumpridos para que o Ministerium Alemão conceda o título de 'Diretor e Professor 'em um instituto de pesquisa alemão, por recomendação do Praesidium. O interessado deve ser:
1. Um cientista. Ou seja, é mais definitivamente um título acadêmico.
2. Aquele que publicou um número significativo de trabalhos de pesquisa originais na literatura técnica.
3. Deve dirigir um departamento em sua área de especialização, em que vários cientistas que trabalham são empregados.
Um método de venda em que o cliente é atraído pelo anúncio de um produto de baixo preço, mas, em seguida, é incentivado a comprar um mais caro.
1. Evolução?
SIM e NÃO
Observamos variação, mutação e seleção natural nos seres vivos.
Os evolucionistas chamam isso de 'evolução', e é por isso que eles afirmam que a evolução é verdadeira.
Nós vemos como o ambiente afeta a sobrevivência destes animais diferentes. Nós até vemos novas espécies que surgem como resultado desses processos.
Estes fenômenos são observados e documentados cientificamente.
Criacionistas concordam com todas estas observações.
De fato, estes tipos de mudanças ocorrem muito rapidamente. Especiação pode ocorrer dentro de algumas gerações.¹ Mas, cães permanecem cães, sapos permanecem sapos, e cavalos permanecem cavalos.
Nós não vemos peixes se transformando em sapos, ou lagartos em pássaros.
O que vemos é consistente com o relato bíblico de uma criação recente. Deus criou diferentes tipos de animais no princípio. Esses tipos diferentes foram capazes de se adaptar a diferentes ambientes.
Criacionistas preferem não chamar esta variação dentro de uma espécie 'evolução' (nem mesmo de 'micro-evolução'²). Chamamos essas mudanças 'adaptação'.
Realmente não importa qual a palavra que você usa, mas é importante saber o que você está falando.
Criacionistas reservam a palavra evolução palavra para algo completamente diferente do que vemos aqui.
2. Evolução?
NÃO
Temos ouvido falar da ideia de que os animais unicelulares alteradas por mutação e seleção natural para répteis, aves, mamíferos e pessoas, ao longo de milhões de anos.
Isto é o que criacionistas chamam de evolução e distinguem de adaptação. Evolucionistas chamam isso de evolução também, a mesma palavra que eles usam para adaptação. É por isso que há tanta confusão sobre esta questão.
Evolucionistas usam a mesma palavra para duas coisas completamente diferentes (chamado equívoco), e então você realmente não sabe sobre o que eles estão falando.
Se pequenas mutações aleatórias estão para produzir nova informação genética para estas mudanças surpreendentes em animais, então milhões de tais erros genéticos seriam necessários ao longo de milhões de gerações.³ É por isso que evolucionistas precisam de bilhões de anos para a ideia de ser plausível.
No entanto, nunca foram observadas mudanças desse tipo.
Variação e seleção natural não produzem nova informação genética; só reordenam ou removem a informação existente.
Mutações não geram nova informação genética; elas destroem algumas das informações existentes.
Além disso, os fósseis não são consistentes com a ideia de evolução; as inumeráveis formas de transição esperadas estão faltando.
Este conceito de moléculas-a-homem da evolução é apenas uma filosofia hipotética sem apoio científico observacional. Este conceito de evolução é usado para justificar a asserção de que o mundo vivo pode ser explicado sem Deus.
É contrário aos ensinamentos do relato bíblico.
Parece científico, mas, como vimos, não é.
É um pouco de um truque jogado utilizando linguagem descuidada. Evolucionistas usam adaptação, a qual é observada, para apoiar a evolução, a qual é um processo totalmente diferente. É um exemplo de 'isca e troca'.
Eles se safam porque as pessoas não percebem que eles estão usando a mesma palavra para significar duas coisas completamente diferentes.
Fique Atento
Da próxima vez que alguém disser que a evolução é um fato científico observado certifique-se de levá-los a definir claramente o que eles estão falando.
Eles quase certamente estão se referindo a adaptação, mas querem que você acredite que eles provaram evolução.
Não se deixe enganar. Linguagem desleixada leva ao pensar desleixado.
Você não iria querer tomar a decisão errada sobre a confiabilidade da Bíblia, de onde você veio e por que você está aqui por causa de ter caído no truque 'isca e troca'.
O termo "micro-evolução' é enganoso porque as mudanças são na direção errada
O tamanho da mudança não é o problema, uma vez que a mudança está indo na direção errada; see Wieland, C., The evolution train’s a comin’, Creation24(2):16–19, 2002.
Será que novas funções surgem por duplicação de genes?
Por Yingguang Liu e Dan Moran
Publicado em 17 de março de 2008 | Atualizado em 3 de abril de 2008
Quão plausível é a afirmação dos evolucionistas de que a duplicação de genes fornece a matéria-prima para a evolução?
A evolução requer que uma forma de vida simples se transforme em organismos cada vez mais complexos. Como a base da complexidade biológica é a complexidade genética, alguns biólogos propõem que os genomas complexos dos organismos modernos surgiram de um ou poucos genes em um ancestral comum por meio de duplicação, com subsequente neofuncionalização por mutação e seleção natural. Aqui, examinamos os mecanismos conhecidos de duplicação gênica à luz da complexidade genômica e dos eventos pós-duplicação, e argumentamos que: (1) as duplicações gênicas são aberrações dos processos de divisão celular e têm maior probabilidade de causar malformações ou doenças do que vantagens seletivas; (2) os genes duplicados geralmente são silenciados e sujeitos a mutações degenerativas; (3) a regulação de supostos agrupamentos e famílias de genes duplicados é irremediavelmente complexa e exige o desenvolvimento simultâneo de múltiplos genes totalmente funcionais e redes de comutação, contrariando o gradualismo darwiniano.
Figura 1. Crossing-over igual (a) e desigual (b) . As cores preta e branca representam cromossomos homólogos. Apenas uma cromátide irmã de cada cromossomo é mostrada. Após o crossing-over desigual, um cromossomo ganha uma repetição extra de genes ABC enquanto o outro cromossomo perde DNA e se torna mais curto.
'A seleção natural apenas modificou, enquanto a redundância criou.' 1
'Pode-se dizer que todos os novos genes surgiram de cópias redundantes de genes preexistentes.' 2
Independentemente de como o primeiro gene surgiu, os livros didáticos ensinam que a duplicação gênica é a principal força motriz da evolução. 3,4 De fato , as duplicações gênicas adicionam material extra ao genoma, por exemplo, por meio de aberrações na divisão dos cromossomos durante a mitose ou meiose, ou por replicação errônea do DNA. Os evolucionistas argumentam que, com mutações subsequentes e seleção natural, uma ou todas as cópias de um gene duplicado acabam codificando novas proteínas (um processo chamado de 'neofuncionalização'). Ao longo de milhões de anos, acredita-se que genomas pequenos e simples evoluíram para genomas grandes e complexos, dando origem à multiplicidade de formas de vida, tanto vivas quanto extintas.
Uma evidência frequentemente citada para a duplicação de genes provém de análises de sequências gênicas. Comparações de sequências revelaram que alguns genes em organismos modernos são mais semelhantes entre si do que a outros genes, sendo assim classificados em famílias. Famílias de genes são especialmente abundantes em genomas grandes. Acredita-se que os membros de uma família dentro de um genoma, os parálogos, sejam produtos de duplicações gênicas que ocorreram no passado. Além disso, domínios funcionais de muitas proteínas codificadas por genes aparentemente não relacionados também apresentam similaridades estruturais e funcionais. Tudo isso é usado como evidência de que os milhares de genes descobertos até agora (e aqueles que ainda serão descobertos) evoluíram a partir de alguns poucos — talvez um — gene(s) ancestral(is) .⁵
Neste artigo, examinamos os principais mecanismos propostos para a duplicação de genes e avaliamos sua provável contribuição para a história da vida à luz de evidências recentes sobre eventos pós-duplicação e mecanismos de regulação gênica.
Mecanismos de duplicação gênica
Poliploidia
Poliploidia refere-se ao aumento do número de conjuntos de cromossomos por célula. Normalmente, a maioria das células eucarióticas são diploides (com dois conjuntos de cromossomos, 2n, um proveniente do progenitor masculino e outro do progenitor feminino), enquanto as células sexuais são haploides (com um conjunto de cromossomos, 1n). Uma célula com 3n ou mais é poliploide. A poliploidia pode surgir naturalmente quando uma célula não consegue se dividir após a replicação do DNA. Se a célula com genoma duplicado estiver envolvida na geração de células sexuais (meiose), organismos poliploides podem ser produzidos posteriormente após a fertilização. Alternativamente, a poliploidia pode ser induzida artificialmente pelo tratamento de células com substâncias químicas como a colchicina.
Como todos os genes são duplicados simultaneamente em uma célula poliploide, as relações estequiométricas entre os produtos genéticos são preservadas. Por essa razão, a poliploidia é a mutação de duplicação menos prejudicial e, portanto, a que melhor sobrevive.<sup> 6 </sup> A poliploidia é observada em samambaias, plantas com flores e alguns animais inferiores. <sup> 7,8 </sup> Geralmente está associada ao hermafroditismo, partenogênese (produção assexuada de filhotes pela mãe) ou espécies sem cromossomos sexuais distintos.<sup> 8</sup> Na maioria dos animais e humanos dióicos (que possuem órgãos reprodutivos masculinos ou femininos), entretanto, os embriões poliploides tipicamente sofrem malformações generalizadas e morrem durante o desenvolvimento.<sup> 8 </sup> Não é apenas a determinação do sexo em si (como proposto por Muller <sup>9</sup> ), mas, mais importante, o delicado equilíbrio entre genes homólogos que é interrompido em indivíduos poliploides de animais superiores. Por exemplo, a impressão parental (diferenças na expressão de genes maternos e paternos) por metilação do DNA pode ser interrompida quando a célula tenta silenciar cromossomos extras por meio de metilação extensiva (veja abaixo em 'Após a duplicação').
A autopoliploidia (todos os conjuntos de cromossomos são da mesma espécie) pode resultar em variação útil de características quantitativas, como biomassa, tamanho dos órgãos, época de floração, tolerância à seca, etc. Mas, crucialmente, os organismos poliploides possuem um mecanismo intrínseco para manter a estabilidade genética silenciando cópias extras de genes (inibindo sua expressão).¹⁰ O silenciamento de homeólogos (genes duplicados pela poliploidia) não é aleatório, é geneticamente programado e específico de cada órgão. É um fenômeno universal observado tanto em plantas quanto em animais.⁷ , ¹¹ O silenciamento de alelos inferiores pode ser responsável pelos fenótipos vantajosos de algumas espécies poliploides. Alternativamente, alelos superiores podem assumir a dominância mesmo que os inferiores sejam expressos simultaneamente. Em outras palavras, não há novos produtos genéticos, mas sim genes antigos com níveis de expressão alterados sob o controle de programas preexistentes.
Figura 2. (a) Agrupamentos de genes de globina de Xenopus . 50,51 Cinza: girino; Escuro: adulto.
(b) Agrupamentos de genes de globina humana. 53 Cinza claro: embrionário; Cinza escuro: fetal; Escuro: fetal/adulto (α) ou apenas adulto (δ e β); Branco: pseudogenes. Sequências espaçadoras intergênicas foram omitidas.
A alopoliploidia resulta quando os conjuntos de cromossomos são derivados de duas ou mais espécies distintas, embora relacionadas. Ao contrário de híbridos alodiploides, como a mula, os organismos alopoliploides podem ser férteis e dar origem a novas espécies. No entanto, as espécies híbridas exibem apenas uma nova combinação de características parentais preexistentes, codificadas por genes preexistentes. Por exemplo, algumas variedades de Triticale , alopoliploides sintéticos de trigo e centeio, combinam o alto rendimento do trigo com a adaptabilidade do centeio. Outra espécie híbrida artificial entre a festuca alta ( Festuca arundinacea ) e o azevém italiano baixo ( Lolium multiflorum ) apresenta características quantitativas (como altura) intermediárias entre as espécies parentais.<sup> 12 </sup> A histórica <i>Raphanobrassica</i> , híbrida entre repolho e rabanete, possui raízes de repolho e folhas semelhantes às do rabanete.
Em alopoliploides, podem ocorrer interações entre genes de diferentes progenitores.<sup> 13</sup> Acredita-se que interações desarmoniosas entre genes homeólogos sejam a razão para a maioria dos casos de esterilidade híbrida em animais alodiploides.<sup> 14</sup> Em plantas, genomas neoalopoliploides são frequentemente instáveis, exibindo 'esterilidade, letalidade e instabilidade fenotípica'.<sup> 15</sup>
Trissomia
Em contraste com a poliploidia, células aneuploides (com número de cromossomos que não é múltiplo do haploide) com um cromossomo extra (trissomia) apresentam um genoma gravemente desequilibrado. Consequentemente, o organismo manifestará fenótipos defeituosos. A aneuploidia resulta da falha na segregação de um par de cromossomos homólogos durante a meiose I ou da falha na segregação de cromátides irmãs durante a meiose II (não disjunção meiótica). Quando uma célula sexual com um cromossomo extra se une a uma célula sexual haploide normal, o zigoto será trissômico para esse cromossomo específico. Muito conhecimento sobre trissomia foi acumulado clinicamente em humanos. As trissomias autossômicas têm efeitos mais dramáticos do que as trissomias dos cromossomos sexuais. Da conhecida síndrome de Down (trissomia do cromossomo 21) às menos comuns síndrome de Edwards (trissomia do cromossomo 18) e síndrome de Patau (trissomia do cromossomo 13), as trissomias autossômicas sempre comprometem o desenvolvimento do sistema nervoso central e manifestam retardo mental em nascidos vivos. Defeitos de desenvolvimento em outros órgãos também são comuns. Trissomias envolvendo outros autossomos são raras e são observadas apenas em abortos espontâneos e fertilizações in vitro . 16
Mulheres com triplo-X (cariótipo XXX) apresentam apenas sintomas leves (altura elevada e irregularidades menstruais). Enquanto homens com síndrome de Klinefelter (cariótipo XXY) apresentam sintomas que variam de infertilidade a deformações estruturais graves, homens XYY são geralmente normais, exceto pela altura elevada e acne.<sup> 17</sup> A razão pela qual as trissomias dos cromossomos sexuais apresentam sintomas menos graves do que as trissomias autossômicas pode estar relacionada ao fato de o cromossomo X possuir um mecanismo intrínseco de inativação bem estabelecido para silenciar um homólogo na mulher normal; enquanto o cromossomo Y é pequeno e possui poucos genes.
Cruzamento desigual
A recombinação genética (crossing-over) refere-se à troca de fragmentos entre cromossomos homólogos durante os estágios iniciais da meiose. Normalmente, a troca é igual, pois os genes se alinham com base na homologia de sequência (sinapse). No entanto, devido às numerosas repetições de sequência nos cromossomos eucarióticos, o alinhamento pode ser impreciso, causando deleção em um cromossomo e duplicação no outro (Figura 1). Acredita-se que esse mecanismo seja a principal causa de deleções de genes de pigmentos vermelhos ou verdes no cromossomo X, resultando em daltonismo, e de deleções de genes da globina, causando várias formas de talassemia.<sup> 18,19 </sup> Duplicações repetidas têm sido associadas ao câncer. <sup> 20 </sup> A duplicação de um grande segmento do cromossomo 15 em seres humanos pode causar retardo mental e outros sintomas, enquanto duplicações menores são assintomáticas ou causam distúrbios menores, como ataques de pânico. Presumivelmente, pequenas duplicações segmentares são gerenciadas com sucesso pelos programas de silenciamento da célula. No entanto, duplicações segmentares dentro de sequências codificadoras de proteínas podem interromper a estrutura do gene, causando mutações de deslocamento de fase.<sup> 21</sup>
Figura 3. Os genes virais são expressos sequencialmente em uma hierarquia altamente regulada. Cada conjunto de genes virais codifica fatores de transcrição que ativam o próximo conjunto de genes interagindo com suas respectivas sequências promotoras/intensificadoras.
A recombinação desigual pode ter sido o principal mecanismo na alteração do número de genes em agrupamentos repetitivos. Agrupamentos de genes, como os genes do pigmento verde humano e os genes da cadeia pesada da imunoglobulina humana, que variam em número dentro da população, certamente manifestam duplicações recentes.<sup> 22,23 </sup> Agrupamentos de genes idênticos de rRNA e histonas também variam em número dentro da espécie, presumivelmente por meio de recombinação desigual.<sup> 24–28</sup> Recentemente, descobriu-se que polimorfismos de número de cópias desse tipo são mais abundantes do que se imaginava anteriormente. <sup> 29,30 </sup>
No entanto, é improvável que os agrupamentos de genes tenham se originado por meio de recombinação desigual, porque: (1) a recombinação desigual depende de agrupamentos preexistentes. Embora possa alterar o número de repetições dentro dos agrupamentos, a recombinação desigual não é a causa fundamental de sua existência; (2) a multiplicidade de genes idênticos nos agrupamentos é frequentemente necessária para o funcionamento adequado da célula. Por exemplo, para atender à necessidade da célula de produzir um grande número de ribossomos em um curto período, todas as células contêm múltiplas cópias de genes de rRNA em arranjos em tandem. No grande oócito (óvulo) dos anfíbios, os genes de rRNA precisam ser amplificados em aproximadamente 2000 vezes, resultando em cerca de um milhão de cópias por célula, para manter o número de ribossomos em cerca de 10¹² . Da mesma forma, múltiplos genes de histonas são necessários para que a célula sintetize histonas rapidamente durante a fase S do ciclo celular. Mas a diversificação e a neofuncionalização dessas cópias idênticas são, na verdade, impedidas, e não promovidas, por mecanismos ainda desconhecidos. 32
Transposição
Os transposons são elementos genéticos móveis que podem mudar de posição dentro do genoma (processo conhecido como transposição). Enquanto algumas transposições ocorrem por um mecanismo de "recortar e colar", outras ocorrem por um mecanismo de "copiar e colar", resultando em duplicações. Ao contrário do crossing-over desigual, que produz conjuntos de genes em tandem, as transposições causam duplicações dispersas aleatoriamente por todo o genoma. Transposons que se duplicam por meio de um intermediário de RNA, conhecidos como retrotransposons, são abundantes em células eucarióticas.
Apesar da abundância de transposons e retrotransposons em genomas complexos (por exemplo, 45% do genoma humano), sua função permanece obscura. Tradicionalmente, eles têm sido considerados como "DNA egoísta", pois a inserção aleatória de transposons interrompe outros genes, causando mutações deletérias. Um exemplo clássico é o retrotransposon da Drosophila , o elemento P, que induz quebras cromossômicas e causa esterilidade.<sup> 33</sup> Consequentemente, parece ser benéfico para o organismo que os eventos de transposição sejam suprimidos. De fato, a transposição é rara na célula humana. (Portanto, a grande maioria dos elementos transponíveis humanos deve estar presente no genoma desde tempos antigos.) No entanto, em camundongos, Drosophila (mosca-da-fruta) e Arabidopsis (planta), a transposição ainda é responsável por muitas mutações.<sup> 34</sup>
Recentemente, Peaston e colaboradores descobriram que os retrotransposons são transcritos ativamente em oócitos e embriões iniciais de camundongos, fornecendo promotores alternativos e primeiros éxons para um subconjunto de genes hospedeiros.<sup> 35</sup> Este estudo sugere que os transposons funcionam como elementos reguladores durante o desenvolvimento inicial. Desse ponto de vista, a mutação induzida por transposição pode ser um efeito colateral, em vez da função pretendida, desses elementos genéticos repetitivos.
Após duplicação
Figura 4. O principal gene de expressão imediata ( mIE ) do citomegalovírus humano é regulado por uma rede de fatores virais e celulares. IE1 e IE2 são produtos do gene por meio de splicing alternativo. IE1 atua como um sinal de feedback positivo para acelerar a transcrição inicial, enquanto IE2 fornece um mecanismo de feedback negativo ao se ligar a um sinal de cis-repressão (crs) posteriormente na infecção. As proteínas virais pp71 e ppUL35 interagem entre si. pp71 também se liga a uma proteína da célula hospedeira, hDaxx. IE1, IE2, o enhancer, pp71 e ppUL35 são todos essenciais para a replicação viral eficaz.
Para que a evolução pudesse aproveitar as duplicações de genes para produzir genomas complexos, propôs-se inicialmente que uma ou mais cópias do gene duplicado adquiririam mutações vantajosas (neofuncionalização). 5, 36 , 37 Acreditava-se que esse era o único mecanismo para gerar novos genes a partir de genes existentes. 38 No entanto, os biólogos estão cada vez mais convencidos, teórica e empiricamente, de que a maioria das cópias de genes duplicados sofre mutações degenerativas, em vez de construtivas, resultando em não funcionalização.
Como mencionado anteriormente, o primeiro evento que ocorre com um gene duplicado é o silenciamento. O mecanismo de silenciamento mais estudado é a metilação de bases de citosina em ilhas CG ao redor dos promotores. <sup>39 </sup> Posteriormente, as citosinas metiladas tendem a ser desaminadas espontaneamente e substituídas por bases de timina. <sup>39,40 </sup> Esse fenômeno é conhecido como depleção de CG. Genes duplicados são especialmente propensos à depleção de CG.<sup> 39–41</sup> Sem restrição seletiva, duplicatas silenciadas também podem sofrer outras mutações. De fato, 'mudanças genômicas extensas' podem ser detectadas em poucas gerações após a poliploidia sintética.<sup> 42</sup> Usando mutações silenciosas (mutações que não afetam as estruturas das proteínas traduzidas) para refletir o tempo, Lynch e Conery calcularam que os genes duplicados são perdidos exponencialmente com o tempo e se tornam 'não funcionalizados quando os sítios silenciosos divergem em apenas alguns por cento'.<sup> 6 </sup>
Por outro lado, as mutações em membros funcionais de uma família de genes são limitadas pela seleção purificadora. Em genes paralogos que os evolucionistas acreditam terem sido criados por antigos eventos de duplicação, 'apenas cerca de 5% das mutações que alteram aminoácidos conseguem atingir a fixação'.⁶ Há um relatório recente que indica que as taxas de mutação em membros de uma família de genes são, na verdade, menores do que em genes únicos (genes sem paralogos) .⁴³ Em contraste, as diferenças nas sequências de aminoácidos entre genes paralogos modernos são geralmente grandes, por exemplo, 58% entre as globinas α e β humanas, 28% entre as globinas β e γ humanas e 75% entre a globina β humana e a mioglobina.
Diante desse dilema, alguns evolucionistas teorizaram que as mutações que levam à neofuncionalização devem ter ocorrido em um breve período de tempo imediatamente após a duplicação (apesar de as mutações frequentes observadas em duplicatas recentes serem, em sua maioria, degenerativas).<sup> 43</sup> Percebendo a impossibilidade da neofuncionalização, Lynch e Conery argumentaram que a duplicação gênica contribui passivamente para a geração de biodiversidade apenas por meio da construção de barreiras reprodutivas, à medida que as duplicatas são silenciadas estocasticamente.<sup> 6</sup> Em outras palavras, a duplicação gênica não produz novos genes porque o silenciamento e a subsequente degradação dos genes duplicados não podem fornecer novas informações.
Entretanto, vários outros modelos foram propostos em relação ao destino dos genes duplicados. Uma teoria afirma que tanto as cópias do gene original quanto as duplicadas perdem apenas parte de sua função por meio de mutações degenerativas (subfuncionalização). Se cada cópia do gene retém uma fração diferente de sua função original, as duplicatas podem se complementar e funcionar juntas como um único gene. Se os elementos regulatórios dos genes duplicados se subfuncionalizam (enquanto as regiões codificadoras de proteínas são de alguma forma poupadas da degeneração), eles podem ser expressos em diferentes estágios/tecidos. Essa teoria é conhecida como modelo de duplicação-degeneração-complementação (DDC).<sup> 44–46</sup> O modelo DDC pode permitir a preservação parcial dos genes duplicados, mas não explica a evolução de novos genes ou novos elementos regulatórios (muito menos os mecanismos complexos de regulação tecido/órgão-específica. Veja abaixo em 'Regulação Gênica').
Figura 5. Rede de coagulação inicial proposta (a) e rede de coagulação intermediária proposta após duplicação do gene (b) . 75 Setas em linha: ativação; setas em bloco: conversão.
Recentemente, outro modelo, denominado complementação epigenética (CE), foi proposto por Rodin e colaboradores. <sup>47,48 </sup> A teoria afirma que, se um gene for copiado para uma posição diferente dentro do genoma, ele poderá ser colocado sob o controle de um ambiente regulatório diferente e, portanto, expresso em um tecido ou estágio de vida diferente. Os mecanismos de silenciamento epigenético (como a metilação da citosina) funcionam de tal forma que uma cópia é silenciada sempre que a outra cópia é expressa. De acordo com esse modelo, não há necessidade de mutação para alterar os elementos regulatórios das cópias para que a complementação ocorra.
O modelo EC não explica a existência de famílias de genes agrupadas com funções divergentes para cada membro. Por exemplo, os genes da globina α e β ligados em Xenopus laevis são expressos em diferentes estágios de vida (girino e adulto) (figura 2).<sup> 49–51</sup> Mas sua regulação temporal é difícil de explicar com diferentes ambientes epigenéticos, uma vez que os genes adultos estão intercalados entre os genes de girino. Em vez disso, pode ser melhor explicada por diferenças em suas sequências regulatórias que respondem a fatores de transcrição específicos de cada estágio. <sup> 52,53 </sup> Da mesma forma, membros da família de genes da globina α humana agrupada são expressos em dois estágios (embrionário e adulto) e a família de genes da globina β agrupada é expressa em três estágios (embrionário, fetal e adulto) (figura 2). Novamente, a regulação temporal (especialmente o silenciamento) é realizada geneticamente, e não epigeneticamente, por meio de elementos regulatórios distintos associados aos genes. 54–56 Além disso, não há alteração na regulação dos genes da globina após a suposta separação dos genes α e β em cromossomos diferentes em mamíferos e aves. Tanto o gene ζ da família α quanto o gene ε da família β são expressos durante o estágio embrionário no desenvolvimento humano, para formar o tetrâmero ζ₂ε₂ , mesmo estando em cromossomos diferentes; enquanto os genes α e β são expressos simultaneamente em adultos.
Assim como o modelo DDC, o modelo EC ainda depende de mutação e seleção natural para a neofuncionalização.
Complexidade do genoma
Se a teoria da evolução por duplicação de genes estiver correta, o conteúdo de DNA e o número de genes deveriam aumentar proporcionalmente à complexidade do organismo. No entanto, isso não ocorre (Tabela 1). Por exemplo, a alga unicelular Euglena possui um genoma maior do que alguns animais vertebrados, como o peixe-zebra e a galinha. Anfíbios podem ter genomas maiores do que algumas aves e mamíferos. A planta Zea mays (milho) possui mais DNA genômico do que a espécie humana. Esse fenômeno, conhecido como paradoxo do valor C, demonstra que a quantidade de DNA genômico certamente não é um bom indicador de complexidade biológica.
Tabela 1. Características genômicas de espécies selecionadas. 57–59
A Tabela 1 também mostra que o número de genes em um genoma não aumenta proporcionalmente à quantidade de DNA genômico. De modo geral, genomas maiores têm menos genes. Os genomas procarióticos são muito mais compactos do que os eucarióticos; por exemplo, 89% do genoma de Haemophilus consiste em genes codificadores de proteínas, em comparação com 1–1,5% no genoma humano. Consequentemente, o número de genes é um indicador ainda pior da complexidade do genoma do que o conteúdo de DNA haploide. Por exemplo, os seres humanos, com 10¹⁴ células , têm um número total de genes comparável ao de Caenorhabditis elegans , que possui apenas 959 células somáticas. Da mesma forma, Drosophila , com suas 50.000 células, tem apenas o dobro de genes da levedura unicelular de padeiro.
Em outras palavras, organismos mais simples já possuem conteúdo de DNA e número de genes comparáveis aos de espécies mais complexas. Duplicação (e mutação) de genes adicionais não os ajudará a ascender na árvore da vida de Darwin.
Regulação gênica
É claro que não é apenas o número de células, mas também os tipos de células em um organismo que indicam complexidade. No nível genético, a diferenciação em vários tipos de células é resultado da regulação espacial e temporal dos genes. Portanto, os genes dos fatores de transcrição, que atuam como interruptores moleculares no genoma, têm grande influência na complexidade genética. Os genes procarióticos são geralmente regulados em grupo (policistrônicos, ou seja, vários genes são controlados por um fator de transcrição), enquanto os genes eucarióticos são regulados individualmente (monocistrônicos).
Szathmary e colaboradores propuseram uma fórmula matemática para calcular a complexidade do genoma em termos das interações entre genes (geralmente através de seus produtos proteicos codificados, incluindo fatores de transcrição). 60 Ele tomou emprestado um parâmetro, conectividade (C), da ecologia, que usa o termo para descrever interações tróficas em teias alimentares:
C = 2 L/[N(N-1)]
L refere-se ao número de interações entre genes (originalmente significava 'ligações tróficas' em ecologia), enquanto N refere-se ao número de genes em um genoma (originalmente o número de espécies em um ecossistema). C é igual ao número de interações reais dentre todas as interações possíveis.
O aspecto mais importante da interação genética que determina o valor de C na equação de Szathmary é o número de níveis que constituem uma hierarquia de regulação . Em ecossistemas, adicionar níveis tróficos gera mais conectividade do que aumentar o número de espécies. Assim como uma cadeia alimentar, uma via de regulação gênica pode ter múltiplos níveis de interação, nos quais fatores de transcrição a montante regulam fatores de transcrição a jusante.
O conceito de complexidade irredutível 61 aplica-se aos sistemas de regulação gênica. Um sistema irredutivelmente complexo é aquele em que todas as partes essenciais devem estar presentes simultaneamente e, portanto, não poderiam ter sido construídas lentamente ao longo de milhões de anos, de forma darwiniana e gradual. Para que uma unidade de regulação gênica funcione, muitos elementos genéticos, incluindo elementos trans-regulatórios que codificam os fatores de transcrição, elementos cis-regulatórios que respondem aos fatores de transcrição e os genes estruturais, precisam estar presentes simultaneamente. Embora existam exemplos de sobreposições funcionais entre vias, geralmente são necessários múltiplos elementos únicos para cada via. A eliminação de qualquer um desses elementos frequentemente resulta em disfunção, podendo até mesmo levar à morte.
No caso mais simples, muitos vírus possuem três conjuntos de genes regulados em cascata (figura 3). Os genes imediatos-precoces (α) possuem elementos promotores (sítios de ligação para a RNA polimerase ou alguns fatores de transcrição) semelhantes aos da célula hospedeira e são transcritos por uma RNA polimerase da célula hospedeira. Os produtos dos genes imediatos-precoces são, em sua maioria, fatores de transcrição que interagem com os elementos regulatórios cis (promotor/potenciador) dos genes precoces (β). Os produtos dos genes precoces, por sua vez, ativam os genes tardios (γ), interagindo com seus elementos cis. Os genes precoces também codificam enzimas para replicar o DNA viral, de modo que os genes tardios são multiplicados antes de sua expressão, permitindo o rápido acúmulo de produtos de genes tardios no final da infecção. Esse cenário permite que o vírus direcione os recursos da célula hospedeira para a produção de novos vírus de forma eficaz.
Um exemplo específico de rede regulatória é o principal gene de expressão imediata (mIE) do citomegalovírus humano (CMV), que codifica dois produtos principais, IE1 e IE2, por meio de splicing alternativo (Figura 4). As duas proteínas atuam sinergicamente para ativar os genes β. Adjacente ao gene, encontra-se uma sequência cis-regulatória de 1,1 kb denominada promotor-potenciador de expressão imediata principal (MIEP), que contém sítios de ligação concentrados para múltiplos fatores de transcrição celulares. Um dos produtos do gene mIE, IE1, funciona como um transativador autorregulatório que recruta uma proteína celular, NF-κB, a qual se liga ao potenciador e ativa a transcrição. O produto IE2 do gene, por outro lado, reprime o gene ligando-se a uma sequência cis-repressora (crs, ver Figura 4) .⁶² O vírus também transporta diversas outras proteínas virais para a célula hospedeira para a transcrição eficaz do mIE. Entre elas estão ppUL35 e pp71, que interagem entre si na célula infectada. 63 , 64 Enquanto isso, pp71 interage com uma proteína celular, hDaxx, que é necessária para a transcrição de mIE. 65
Como o genoma viral é relativamente pequeno e fácil de manipular, o HCMV fornece um bom modelo para estudar os efeitos da deleção de um gene do genoma. A deleção das sequências que codificam IE2, ou a porção proximal do intensificador, do genoma do HCMV inativa completamente o vírus. <sup> 66,67 </sup> A deleção de qualquer um dos genes que codificam IE1, pp71 ou ppUL35 torna o vírus incapaz de replicação in vitro com baixa multiplicidade de infecção (MOI), o que se assemelha à infecção humana natural. <sup> 68–70 </sup> Todos esses fatores regulatórios precisam estar presentes e funcionais simultaneamente para que o HCMV sobreviva (se não puder se replicar, ele se extingue).
Os genomas virais são muito mais simples em termos de complexidade de sua regulação do que os de procariontes e eucariontes, logo, seus sistemas regulatórios também são irredutivelmente complexos. Para que a evolução ocorra por meio de duplicação gênica, tanto o gene quanto seus elementos cis-regulatórios precisam ser duplicados simultaneamente. Além disso, como os membros de uma mesma família gênica frequentemente apresentam padrões de expressão distintos, tanto o gene quanto os elementos cis-regulatórios precisam sofrer mutações conjuntas para conferir uma vantagem seletiva ao organismo. Por exemplo, as globinas ζ e ε precisam adquirir maior afinidade pelo oxigênio do que as globinas α e β para que o tetrâmero de hemoglobina embrionária ζ₂ε₂ extraia oxigênio dos tetrâmeros maternos α₂β₂ . Enquanto isso , os elementos regulatórios das globinas embrionárias e adultas precisam desenvolver afinidade de ligação aos fatores de transcrição expressos durante seus respectivos estágios de desenvolvimento. Mais importante ainda, um mecanismo delicado de troca de globina, conhecido por envolver inúmeros fatores trans-regulatórios e múltiplos níveis de regulação, precisa ser desenvolvido. No caso da troca de globina β-like humana, que é a mais bem compreendida, alguns desses fatores são universais, enquanto outros são específicos da linhagem eritroide. 54–56, 71 A deleção dos elementos regulatórios ou de um membro da família de genes resultará em talassemia.
Outro exemplo de famílias de genes agrupados cuja expressão segue um padrão temporal é a família da cadeia pesada de imunoglobulina produzida pelos linfócitos B. Existem cinco classes e cada uma possui propriedades que não podem ser substituídas por outras. Todos os linfócitos B começam secretando IgM e mudam para IgG, IgE ou IgA em poucos dias por meio de um mecanismo de troca complexo.<sup> 72–74</sup> O aspecto mais importante da troca de classe é o direcionamento das enzimas de recombinação de DNA para locais específicos. A teoria da duplicação gênica exigiria mutações coordenadas nos genes estruturais e nos elementos cis-regulatórios, além de um mecanismo de recombinação único, diferente dos mecanismos conhecidos.
Michael Behe usou os fatores de coagulação sanguínea para ilustrar a complexidade irredutível. 61 Dezenas de proteínas se ativam ou se inibem mutuamente nas vias de coagulação sanguínea e subsequente dissolução do coágulo. A deleção acidental de fatores leva a doenças como a hemofilia. Como muitos fatores compartilham domínios funcionais semelhantes, acredita-se que eles tenham evoluído por meio de antigos eventos de duplicação gênica, incluindo a poliploidia durante a explosão cambriana. 75–77 No entanto, essas duplicações precisam ser seguidas por mutações coordenadas que 'funcionem perfeitamente'. Uma via intermediária funcional proposta para a coagulação sanguínea 75 na figura 5 mostra o quanto de mudança coordenada é necessária.
Conclusão
A maioria das duplicações gênicas são aberrações meióticas ou mitóticas, resultando em malformações ou doenças. As plantas toleram duplicações, especialmente a poliploidia, melhor do que os animais devido às diferenças em seus mecanismos de reprodução. Para manter a estabilidade genômica, todas as células possuem mecanismos intrínsecos para silenciar genes duplicados, após o que estes ficam sujeitos a mutações degenerativas.
Agrupamentos de genes idênticos necessitam de mecanismos complexos para evitar a diversificação e, assim, funcionarem em conjunto. Da mesma forma, famílias de genes cujos membros desempenham funções distintas são mantidas por seleção purificadora. Embora a duplicação possa alterar o número de membros em famílias de genes, ela não constitui sua origem fundamental. Os modelos atuais que explicam a preservação e a neofuncionalização de genes duplicados encontram obstáculos em diversas frentes.
A teoria da evolução por duplicação gênica prevê um aumento proporcional no tamanho do genoma com a complexidade do organismo, mas isso é contradito pelas evidências. Não é o tamanho do genoma, mas sim as sequências regulatórias intergênicas e as hierarquias de regulação gênica que determinam a complexidade. As redes de regulação gênica são irremediavelmente complexas e constituem uma barreira intransponível para a teoria.
Referências
Ohno, S., Evolução por Duplicação de Genes , Spring-Verlag, Berlim, Heidelberg, Nova Iorque, Prefácio, 1970. Voltar ao texto .
Ohno, S., Nascimento de uma enzima única a partir de uma estrutura de leitura alternativa da sequência codificadora preexistente e internamente repetitiva, Proc. Natl. Acad. Sci. EUA 81 (8):2421–2425, 1984. Retornar ao texto .
Hartwell, LH, Hood, L., Goldberg, ML, Reynolds, AE, Silver, LM e Veres, RC, Genética, de Genes a Genomas , McGraw-Hill Companies, Inc., Nova York, pp. 449–452, 2004. Voltar ao texto .
Lewin B., Genes VIII , Pearson Education, Inc., Upper Saddle River, NJ, p. 86, 2004. Voltar ao texto .
Ohno, S., A evolução está condenada a depender de variações do mesmo tema: a única sequência ancestral para genes e espaçadores, Perspect. Biol. Med . 25 (4):559–572, 1982. Voltar ao texto .
Lynch, M. e Conery, JS, O destino evolutivo e as consequências dos genes duplicados, Science 290 (5494):1151–1155, 2000. Voltar ao texto .
Becak, ML e Kobashi, LS, Evolução por poliploidia e regulação gênica, Anura, Genet. Mol. Res. 3 (2):195–212, 2004. Voltar ao texto .
Otto, SP e Whitton, J., Incidência e evolução de poliploidia, Annu. Rev. Genet . 34 :401–437, 2000. Voltar ao texto .
Muller, HJ, Por que a poliploidia é mais rara em animais do que em plantas, Am. Nat. 59 :346–353, 1925. Voltar ao texto .
Adams, KL, Cronn, R., Percifield, R. e Wendel, JF, Genes duplicados por poliploidia mostram contribuições desiguais para o transcriptoma e silenciamento recíproco específico de órgão, Proc. Natl. Acad. Sci. EUA 100 (8):4649–4654, 2003. Voltar ao texto .
Flavell, RB, Inativação da expressão gênica em plantas como consequência da duplicação de sequência específica, Proc. Natl. Acad. Sci. EUA 91 (9):3490–3496, 1994. Retornar ao texto .
Brooker, RJ, Genética, Análise e Princípios , McGraw-Hill Higher Education, Nova York, pp. 218–219, 2005. Voltar ao texto .
Osborn, TC, Pires, JC, Birchler, JA, Auger, DL, Chen, ZJ, Lee, HS, Comai, L., Madlung, A., Doerge, RW, Colot, V. e Martienssen, RA, Compreendendo mecanismos de expressão gênica inovadora em poliploides, Trends Genet . 19 (3):141–147, 2003. Voltar ao texto .
Stebbins, GL e Orr-Weaver, TL, Poliploidia, em: AccessScience McGraw-Hill, <www.accessscience.com>, última modificação: 10 de abril de 2000. Voltar ao texto .
Madlung, A., Tyagi, AP, Watson, B., Jiang, H., Kagochi, T., Doerge, RW, Martienssen, R. e Comai, L., Alterações genômicas em poliploides sintéticos de Arabidopsis, Plant J. 41 (2):221–230, 2005. Voltar ao texto .
Lewis R., Genética Humana, Conceitos e Aplicações , McGraw-Hill Companies Inc., Nova Iorque, pp. 246–249, 2003. Voltar ao texto .
Lucito, R., Healy, J., Alexander, J., Reiner, A., Esposito, D., Chi, M., Rodgers, L., Brady, A., Sebat, J., Trope, J., West, JA, Rostan, S., Nguyen, KC, Powers, S., Ye, KQ, Olshen, A., Venkatraman, E., Norton, L. e Wigler, M., Análise representacional de microarranjos de oligonucleotídeos: um método de alta resolução para detectar variação do número de cópias do genoma, Genome Res. 13 (10):2291–2305, 2003. Voltar ao texto .
O'Dushlaine, CT, Edwards, RJ, Park, SD e Shields, DC, Variação do número de cópias de repetições em tandem em regiões codificadoras de proteínas de genes humanos, Genome Biol. 6 (8):R69, 2005. Voltar ao texto .
Nathans, J., Thomas, D. e Hogness, DS, Genética molecular da visão de cores humana: os genes que codificam os pigmentos azul, verde e vermelho, Science 232 (4747):193–202, 1986. Voltar ao texto .
Rabbani, H., Pan, Q., Kondo, N., Smith, CI e Hammarstrom, L., Duplicações e deleções do locus IGHC humano: implicações evolutivas, Imunogenética 45 (2):136–141, 1996. Voltar ao texto .
Zhang, QF, Saghai Maroof, MA e Allard, RW, Efeitos na adaptação de variações no número de cópias de DNA ribossômico em populações de cevada selvagem ( Hordeum vulgare ssp. spontaneum ), Proc. Natl. Acad. Sci.USA 87 (22):8741–8745, 1990. Voltar ao texto .
Bentley, RW e Leigh JA, Determinação do número de cópias do gene do RNA ribossômico 16S em Streptococcus uberis, S. agalactiae, S. dysgalactiae e S. parauberis , FEMS Immunol. Med. Microbiol . 12 (1):1–7, 1995. Voltar ao texto .
Su, MH e Delany, ME, Número de cópias do gene do RNA ribossômico e polimorfismos de tamanho nucleolar dentro e entre linhagens de frango selecionadas para crescimento aprimorado, Poult. Sci. 77 (12):1748–1754, 1998. Voltar ao texto .
Michel, AH, Kornmann, B., Dubrana, K. e Shore, D., A variação espontânea do número de cópias do rDNA modula os níveis de Sir2 e o silenciamento epigenético de genes. Genes. Dev. 19 (10):1199–1210, 2005. Voltar ao texto .
Thomas, MC, Olivares, M., Escalante, M., Maranon, C. e Montilla, M., Plasticidade dos genes da histona H2A em uma cepa brasileira e seis cepas colombianas de Trypanosoma cruzi , Acta. Trop. 75 (2):203–210, 2000. Voltar ao texto .
Sebat, J., Lakshmi, B., Troge, J., Alexander, J., Young, J., Lundin, P., Maner, S., Massa, H., Walker, M., Chi, M., Navin, N., Lucito, R., Healy, J., Hicks, J., Ye, K., Reiner, A., Gilliam, TC, Trask, B., Patterson, N., Zetterberg, A. e Wigler, M., Polimorfismo de número de cópias em larga escala no genoma humano, Science 305 (5683):525–528, 2004. Voltar ao texto .
Sharp, AJ, Locke, DP, McGrath, SD, Cheng, Z., Bailey, JA, Vallente, RU, Pertz, LM, Clark, RA, Schwartz, S., Segraves, R., Oseroff, VV, Albertson, DG, Pinkel, D. e Eichler, EE, Duplicações segmentares e variação do número de cópias no genoma humano, Am. J. Hum. Genet. 77 (1):78–88, 2005. Voltar ao texto .
Cooper, GM e Hausman, RE, A célula, uma abordagem molecular , ASM Press, Washington, DC, pp. 339–341, 2004. Voltar ao texto .
Lund, G., Lauria, M., Guldberg, P. e Zaina, S., Supressão CG dependente de duplicação dos genes de proteína de armazenamento de sementes de milho, Genetics 165 (2):835–848, 2003. Voltar ao texto .
Rodin, SN e Parkhomchuk, DV, Assimetria GC associada à posição de duplicatas de genes, J. Mol. Evol. 59 (3):372–384, 2004. Voltar ao texto .
Song, K., Lu, P., Tang, K. e Osborn, TC, Mudança genômica rápida em poliploides sintéticos de Brassica e suas implicações para a evolução poliplóide, Proc. Natl. Acad. Sci. EUA 92 (17):7719–7723, 1995. Voltar ao texto .
Jordan, IK, Wolf, YI e Koonin, EV, Genes duplicados evoluem mais lentamente do que genes únicos, apesar do aumento inicial da taxa, BMC Evol. Biol. 4:22 , 2004. Voltar ao texto .
Force, A., Lynch, M., Pickett, FB, Amores, A., Yan, YL e Postlewait, J., Preservação de genes duplicados por mutações degenerativas complementares, Genetics 151 (4):1531–1645, 1999. Voltar ao texto .
Lynch, M. e Force, A., A probabilidade de preservação de genes duplicados por subfuncionalização, Genetics 154 :459–473, 2000. Voltar ao texto .
Lynch, M., O'Hely, M., Walsh, B. e Force, A., A probabilidade de preservação de um gene duplicado recém-surgido, Genetics 159 :1789–1804, 2001. Voltar ao texto .
Rodin, SN, Parkhomchuk, DV e Riggs, AD, Alterações epigenéticas e reposicionamento determinam o destino evolutivo de genes duplicados, Bioquímica ( Mosc. ) 70 (5):559–567, 2005. Voltar ao texto .
Rodin, SN e Riggs, AD, O silenciamento epigenético pode auxiliar a evolução por duplicação de genes, J. Mol. Evol. 56 (6):718–729, 2003. Voltar ao texto .
Banville, D. e Williams, JG, O padrão de expressão dos genes da alfa-globina do girino de Xenopus laevis e a sequência de aminoácidos dos três principais polipeptídeos da alfa-globina do girino, Nucleic Acids Res. 13 (15):5407–8421, 1985. Voltar ao texto .
Hosbach, HA, Wyler, T. e Weber, R., A família de genes da globina de Xenopus laevis : arranjo cromossômico e estrutura do gene, Cell 32 (1):45–53, 1983. Voltar ao texto .
Patient, RK, Banville, D., Brewer AC, Elkington, JA, Greaves, DR, Lloyd, MM e Williams, JG, A organização dos genes da alfa-globina do girino e do adulto de Xenopus laevis , Nucleic Acids Res. 10 (24):7935–7945, 1982. Voltar ao texto .
Broyles, RH, Ramseyer, LT, Do, TH, McBride, KA e Barker, JC, Troca de hemoglobina em heterocários eritroides de Rana/ Xenopus : fatores que mediam a troca metamórfica de hemoglobina são conservados, Dev. Genet. 15 (4):347–355, 1994. Voltar ao texto .
Sargent, TG, Buller, AM, Teachey, DT, McCanna, KS e Lloyd, JA, O promotor da gama-globina tem um papel importante na inibição competitiva da expressão do gene da beta-globina no desenvolvimento eritroide inicial, DNA Cell Biol. 18 (4):293–303, 1999. Voltar ao texto .
Harju, S., McQueen, KJ e Peterson, KR, Estrutura da cromatina e controle da troca do gene da globina beta-like, Exp. Biol. Med. (Maywood) 227 (9):683–700, 2002. Voltar ao texto .
Ristaldi, MS, Drabek, D., Gribnau, J., Poddie, D., Yannoutsous, N., Cao, A., Grosveld, F. e Imam, AM, O papel da região -50 do gene da gama-globina humana na troca de isotipos, EMBO. J. 20 (18):5242–5249, 2001. Voltar ao texto .
Lynch, M. e Conery, JS, As origens da complexidade do genoma, Science 302 (5649):1401–1404, 2003. Voltar ao texto .
Consórcio internacional de sequenciamento do genoma humano, Finalizando a sequência eucromática do genoma humano, Nature 431 :931–945, 2004. Voltar ao texto .
Szathmary, E., Jordan, F. e Pal, C., Biologia molecular e evolução. Os genes podem explicar a complexidade biológica? Science 292 (5520):1315–1316, 2001. Voltar ao texto .
Behe, MJ, A Caixa Preta de Darwin , The Free Press, Nova Iorque, 1996. Voltar ao texto .
Mocarski, ESJ, Citomegalovírus e sua replicação; em: Field, BN, Knipe, DM, Howley, PM, Chanock, RM, Melnick, JL, Monath, TP, Roizman, B. e Straus, SE (Eds.), Fields Virology , 3ª ed ., Lippincott-Raven Publishers, Filadélfia, PA, pp. 2447–2492, 1996. Voltar ao texto .
Liu, Y. e Biegalke, BJ, O gene UL35 do citomegalovírus humano codifica duas proteínas com funções diferentes, J. Virol. 76: 2460–2468, 2002. Voltar ao texto .
Schierling, K., Stamminger, T., Mertens, T. e Winkler, M., Proteínas do tegumento do citomegalovírus humano ppUL82 (pp71) e ppUL35 interagem e ativam cooperativamente o principal intensificador imediato-precoce, J. Virol. 78: 9512–9523, 2004. Voltar ao texto .
Hoffmann, H., Sindre, H. e Stamminger, T., Interação funcional entre a proteína pp71 do citomegalovírus humano e a proteína Daxx humana que interage com PML, J. Virol. 76 (11):5769–5783, 2002. Voltar ao texto .
Marchini, A., Liu, H. e Zhu, H., Citomegalovírus humano com IE-2 (UL122) deletado não expressa genes líticos precoces, J. Virol. 75 (4):1870–1878, 2001. Voltar ao texto .
Isomura, H., Tsurumi, T. e Stinski, MF, Papel do intensificador proximal do principal promotor imediato-precoce na replicação do citomegalovírus humano, J. Virol. 78 (23):12788–12799, 2004. Voltar ao texto .
Ghazal, P., Visser, AE, Gustems, M., Garcia, R., Borst, EM, Sullivan, K., Messerle, M. e Angulo, A., A eliminação de ie1 atenua significativamente a virulência do citomegalovírus murino, mas não altera a capacidade replicativa em cultura de células, J. Virol. 79 (11):7182–7194, 2005. Voltar ao texto .
Bresnahan, WA e Shenk, TE, A proteína do vírion UL82 ativa a expressão de genes virais precoces imediatos em células infectadas por citomegalovírus humano, Proc. Natl. Acad. Sci. EUA 97: 14506–14511, 2000. Voltar ao texto .
Schierling, K., Buser, C., Mertens, T. e Winkler, M., A proteína do tegumento ppUL35 do citomegalovírus humano é importante para a replicação viral e formação de partículas, J. Virol. 79 (5):3084–3096, 2005. Voltar ao texto .
Zhao, Q., Zhou, WL, Rank, G., Sutton, R., Wang, X., Cumming, H., Cerruti, L., Cunningham, JM e Jane, SM, Repressão da expressão do gene da globina γ humana por uma isoforma curta da proteína NF-E4 está associada à perda de NF-E2 e ao recrutamento da RNA polimerase II ao promotor, Blood , 1 de novembro de 2005; [Publicação eletrônica antes da impressão]. Voltar ao texto .
Okazaki, IM, Kinoshita, K., Muramatsu, M., Yoshikawa, K. e Honjo, T., A enzima AID induz recombinação de troca de classe em fibroblastos, Nature 416 (6878):340–345, 2002. Voltar ao texto .
Luby, TM, Schrader, CE, Stavnezer, J. e Selsing, E., As repetições em tandem da região de troca mu são importantes, mas não necessárias, para a recombinação de troca de classe de anticorpos, J. Exp. Med. 193 (2):159–168, 2001. Voltar ao texto .
Mills, FC, Harindranath, N., Mitchell, M. e Max, EE, Complexos intensificadores localizados a jusante de ambos os genes da imunoglobulina C alfa humana, J. Exp. Med. 186 (6):845–858, 1997. Voltar ao texto .
Davidson, CJ, Tuddenham, EG e McVey, JH, 450 milhões de anos de hemostasia, J. Thromb. Haemost. 1 (7):1487–1494, 2003. Voltar ao texto .
Jiang Y. e Doolittle, RF, A evolução da coagulação sanguínea em vertebrados vista a partir de uma comparação dos genomas do baiacu e da ascídia, Proc. Natl. Acad. Sci. EUA 100 (13):7527–7532, 2003. Voltar ao texto .
Naruse, K., Tanaka, M., Mita, K., Shima, A., Postlethwait, J. e Mitani, H., Um mapa genético do medaka: o rastro de protocromossomos vertebrados ancestrais revelado pelo mapeamento genético comparativo, GenomeRes. 14 (5):820–828, 2004. Voltar ao texto .
Evolução das proteínas anticongelantes: transformando chaves inglesas em martelos
Por Shaun Doyle
Publicado em 20 de agosto de 2012 | Atualizado em 5 de outubro de 2012
Há evidências de mutações e seleção natural que levaram à evolução de micróbios para o homem?
Os evolucionistas frequentemente afirmam que a duplicação de genes fornece a matéria-prima para produzir novas funções por meio de mutações subsequentes e seleção natural. No entanto, encontrar duplicações de genes que tenham produzido novas funções não tem sido fácil. A maioria das duplicações de genes estudadas foram silenciadas e submetidas a mutações deletérias, tornando-as inúteis.<sup> 1 </sup> Contudo, uma classe de proteínas chamadas proteínas anticongelantes (AFPs) parece ter contrariado essa tendência. As AFPs são encontradas em uma ampla variedade de organismos: peixes, insetos, plantas e micróbios. Elas também apresentam tantas formas diferentes quanto o número de organismos que as possuem, e acredita-se que muitas tenham evoluído por meio de eventos de duplicação de genes. Essas proteínas se ligam à superfície dos cristais de gelo e impedem que as moléculas de água se liguem a eles, evitando seu crescimento. Isso permite que os organismos sobrevivam em temperaturas abaixo de zero sem congelar.
Contudo, postular que a duplicação de genes e a subsequente mutação podem resultar em novas proteínas funcionais não é suficiente. Para construir um argumento plausível para o neodarwinismo, é necessário identificar a origem do novo gene e descrever as principais mutações que de fato levam à mudança. Pesquisadores recentemente propuseram um cenário evolutivo detalhado para a evolução de uma proteína anticongelante a partir de um evento de duplicação gênica em uma espécie de peixe-anguila antártico (peixe com nadadeiras raiadas), Lycodichthys dearborni.² Então , essas proteínas anticongelantes representam um mecanismo neodarwinista que produz uma nova proteína? E, se representarem, o que isso indica sobre a plausibilidade do neodarwinismo como base mecanicista para a evolução de micróbios ao homem?
A fronteira da evolução do peixe-anguila
Lycodichthys dearborni é uma das várias espécies de peixe-anguila antártico da família Zoarcidae. É encontrado no Estreito de McMurdo, ao sul do Mar de Ross, na costa da Antártida. Os zoarcídeos são uma das duas únicas famílias de peixes que possuem uma classe específica de proteínas antifúngicas (AFPs), o tipo III. A origem das AFPs do tipo III tem sido particularmente difícil de rastrear para os evolucionistas .
Figura 1. Evolução molecular da AFPIII a partir da SAS-B . Uma duplicata filha da SAS-B (SAS-B ' ) sofreu deleção do domínio N-terminal (sétimo códon de E1 a E5) e neofuncionalização, transformando-se em AFPIII . As regiões na SAS-B ' correspondentes às regiões no gene de dois éxons da AFPIII são indicadas em cinza escuro para os dois genes, com as identidades de sequência de nucleotídeos fornecidas. A sequência precursora do peptídeo sinal (PS) parcialmente não codificadora de proteína na SAS-B ' , que foi modificada para se tornar uma sequência codificadora para o peptídeo sinal da AFPIII, é mostrada na parte inferior. A LdSAS-A não apresenta homologia na sequência flanqueadora 5 ' (barra cinza) com a LdSAS-B e a AFPIII ; portanto, não é a progenitora evolutiva da AFPIII . (De Deng et al ., ref. 2, p. 21595.)
Os pesquisadores propuseram que o modelo evolutivo "Escape from Adaptive Conflict" (EAC) se encaixa na evolução da proteína anticongelante (AFP) em * L. dearborni* . O EAC afirma que o conflito entre uma função antiga e uma nova função emergente dentro de um único gene poderia preservar uma duplicação gênica, o que permitiria que cada duplicata otimizasse livremente uma das funções. Eles propuseram que um gene de proteína anticongelante do tipo III evoluiu a partir de uma cópia duplicada do gene da sialato sintase ( SAS ), chamada LdSAS-B (Ld significa * Lycodichthys dearborni*) . Eles postulam que, em uma das duplicatas, o domínio N-terminal da SAS foi deletado e substituído por um novo peptídeo sinal (Figura 1). Isso removeu o conflito entre as funções da SAS e de ligação ao gelo na duplicata e permitiu a rápida otimização do domínio C-terminal restante para se tornar uma AFP secretada.
Parece haver uma mutação aleatória que permitiu à cópia de LdSAS-B traduzir uma proteína que acabou sendo uma AFP eficaz: uma deleção de 4,4 kb que codifica o domínio N-terminal de SAS, do códon 7 de E1 (éxon 1) até o final de E5 (éxon 5). 4,5 Isso resultou em duas transformações fortuitas que fizeram com que o suposto gene SAS se tornasse um gene de AFP : removeu qualquer função SAS e permitiu uma mudança na fase de leitura, que alterou o peptídeo sinal, possibilitando a secreção da nova proteína.
Sugiro que a grande mutação por deleção na suposta cópia de LdSAS-B produziu tanto o aumento da capacidade de ligação ao gelo quanto permitiu que a suposta AFP fosse secretada para fora da célula. A deleção foi tão grande que tornou o gene copiado irreconhecível para a maquinaria de tradução como um gene SAS . Também destruiu a integridade do primeiro éxon, o que expôs a codificação de um peptídeo sinal que direciona a proteína para secreção, anteriormente latente na região 5' flanqueadora de LdSAS-B .
Figura 2. Estrutura de uma AFP tipo III madura de Lycodichthys dearborni. A. Os peptídeos da estrutura primária em negrito são considerados responsáveis pela formação da superfície plana de ligação ao gelo típica das AFPs tipo III (de Deng et al. , ref. 2, informações suplementares, Figura S6; e Banco de Dados de Proteínas www.rcsb.org/pdb, entrada 1UCS.pdb). B. Estrutura terciária, posicionada para mostrar a superfície de ligação ao gelo, com os peptídeos com função ativa de ligação ao gelo destacados em preto (do Banco de Dados de Proteínas www.rcsb.org/pdb, entrada 1UCS.pdb, exibido no Protein Workshop).
Conforme constatado por Cheng et al.:
“Descobrimos uma sequência codificadora de um peptídeo sinal precursor, localizada adequadamente no LdSAS-B existente , começando 54 nt a montante do sítio de início da tradução até os seis primeiros códons do E1 do LdSAS-B (Fig. 2 e Fig. S2B). Uma deleção intragênica do sétimo códon do E1 até o E5 do LdSAS-B e a ligação do novo E1, do antigo I5 [íntron 5] e do E6 completariam a formação do gene AFPIII nascente de dois éxons , que codifica a proteína anticongelante secretora.” 6
Portanto, essa codificação latente foi erroneamente reconhecida pela maquinaria de tradução como o primeiro éxon (que havia sido truncado na extremidade 3' devido à mutação de deleção) em vez de como parte da região flanqueadora 5', e tornou-se o peptídeo sinal necessário para sinalizar a AFP (codificada em grande parte no segundo éxon da AFPIII ).
A forte pressão seletiva nas águas antárticas tornaria as duplicações em tandem do gene AFPIII uma resposta provável às condições, a fim de aumentar a quantidade de AFP produzida, e eliminaria qualquer peixe-anguila que não possuísse o gene. Portanto, em resumo, a resposta é sim , mutação aleatória e seleção natural são mecanismos prováveis para a produção dessa AFP e de muitas outras.
Do neodarwinismo à evolução
No entanto, a história não termina aí. A questão fundamental permanece: será este um exemplo de evidência neodarwinista para a evolução de moléculas ao homem? Não há dúvida de que se trata de uma proteína nova e funcional; muitos leitores podem estar convencidos de que ela responde à exigência dos criacionistas por evidências da evolução naturalista. Mas não é tão simples: para ser considerada uma possível evidência da evolução de moléculas ao homem, a descoberta de novas proteínas precisa apresentar pelo menos quatro características:
Eles precisam ser formados por um mecanismo naturalista plausível .
Eles precisam ser complexos ,
Eles precisam ser especificados , e
Eles precisam ser integrados funcionalmente aos processos bioquímicos do organismo.
De modo geral, os AFPs (fenótipos de adaptação anormal) atendem ao critério 1: há fortes indícios de que muitos, senão a maioria, são formados por meio de mutação aleatória e seleção natural. Além disso, esse cenário naturalístico específico para o AFP da enguia-da-antártica é plausível. Pode-se questionar se mecanismos projetados para variação tiveram algum papel, especialmente considerando o grande número de repetições em tandem e o retrotransposon ligado à extremidade 5' do agrupamento de genes. A origem dessa adaptabilidade projetada é difícil de explicar para a evolução, mas, no mínimo, é especulativa para esse cenário específico.
Nem todas as AFPs atendem ao segundo critério: muitas são muito simples, porém muito ordenadas. 7 A AFP do peixe-anguila antártico tem apenas 65 peptídeos, mas não está organizada em uma sequência repetitiva. 8Além disso, muitas frases curtas que contêm muita informação têm menos de 65 caracteres. Considere como o texto grego original de João 1:1 teria sido escrito:
Essa frase tem apenas 52 caracteres (51 se o subscrito iota for omitido), e há muito mais repetição de caracteres nela do que no AFP. A complexidade, portanto, não é apenas uma medida do comprimento da sequência, mas também, em grande parte, da ausência de repetição na sequência. Assim, embora curta, ela possui complexidade suficiente para satisfazer o critério 2.
O terceiro critério, especificidade, é onde as AFPs em geral encontram grandes problemas. Como mencionado anteriormente, as AFPs são notórias por terem tantas formas quanto as criaturas que as possuem. Considere um martelo e uma chave inglesa. Cada um é projetado para uma função diferente: um martelo não pode fazer tudo o que uma chave inglesa faz, mas muitas coisas podem ser usadas para fazer o trabalho de um martelo quando um martelo não está disponível, incluindo uma chave inglesa. No entanto, todos sabem que uma chave inglesa não foi projetada para ser um martelo e, se você tentar usá-la como martelo com muita frequência, ela pode deixar de funcionar como chave inglesa.
A proteína SAS é como uma chave inglesa, e as AFPs são como martelos. Tudo o que as AFPs precisam fazer é se ligar ao gelo, e para isso elas basicamente precisam apenas de uma extremidade hidrofóbica e uma hidrofílica — ou seja, elas precisam ser anfipáticas. A extremidade hidrofílica se liga aos cristais de gelo, enquanto a extremidade hidrofóbica repele as moléculas de água, impedindo que elas se liguem ao gelo. Essa situação é encontrada em muitas proteínas com estruturas completamente diferentes devido aos 20 aminoácidos universais que compõem as proteínas, metade dos quais são hidrofílicos e metade são hidrofóbicos.⁹ Ser uma AFP é uma função muito inespecífica que muitas proteínas diferentes poderiam desempenhar.
As AFPs também não satisfazem o quarto critério: integração funcional nos processos bioquímicos da célula. Não se sabe que elas interajam em qualquer outro processo celular além da secreção celular e da ligação a cristais de gelo. 10 'Proteínas' como as AFPs efetivamente diminuem a eficiência de outras funções na célula, sobrecarregando-a com detritos degenerados. 11 Em circunstâncias normais, qualquer mutação que permita a tradução de DNA degenerado ou DNA não codificante simplesmente 'atrapalhará o funcionamento' da célula e 'desviará' a maquinaria de transcrição e tradução de outras tarefas, retardando os processos celulares. 12 Mas, novamente, combinações fortuitas que já estavam latentes no gene LdSAS-B significavam que a tradução desse detrito específico era benéfica para a sobrevivência em um ambiente particular .
Este exemplo pode causar algum entusiasmo entre os evolucionistas, mas não contradiz o que podemos esperar dentro de um cenário bíblico. Está longe de demonstrar que a mutação e a seleção natural são necessárias e suficientes para explicar a história da vida. Os evolucionistas não conseguiram compreender o ônus da prova que têm de sustentar suas teorias simplistas sobre como estruturas biológicas com alto conteúdo de informação poderiam se formar naturalmente. Os AFPs em geral, e este exemplo em particular, falham como evidência para a evolução de moléculas ao homem.
Conclusão
As proteínas anticongelantes (AFPs) são comprovadamente proteínas simplistas em sua função, mais semelhantes a detritos benéficos do que a uma nova proteína complexa e específica. Criar uma proteína anticongelante de forma natural é qualitativamente diferente de criar, por exemplo, a cascata de coagulação sanguínea, programas de diferenciação celular, a via fotossintética ou um flagelo bacteriano. A diferença reside entre função incidental (e acidental) e estrutura biológica essencial.
Deng, C., Cheng, C.-HC, Yea, H., Heb, X. e Chen, L., Evolução de uma proteína anticongelante por neofuncionalização sob escape de conflito adaptativo, PNAS 107 (50):21593–21598, 14 de dezembro de 2010. Voltar ao texto .
Cheng, C.-HC, Evitar o congelamento em peixes polares; em: Gerday, C. (ed.), Enciclopédia de Sistemas de Suporte à Vida (EOLSS)—Tema 6.73 Extremófilos , Desenvolvido sob os auspícios da UNESCO, Eolss Publishers, Reino Unido, 2003; www.eolss.net. Voltar ao texto .
Uma segunda mutação também pode ter sido necessária para obter uma AFP funcional. Veja Deng et al. , ref. 2, informações complementares, p. 1; Figura S1. Uma deleção de 6 nt perto do final de uma AFPIII inicial pode ter, de alguma forma, permitido que uma duplicação previamente silenciada fosse traduzida novamente, tornando-se uma AFP funcional. Essa deleção pode ter sido necessária porque o pseudogene 5' ψAFPIII possui uma sequência de 6 nt em seu E2 que está presente no E6 de LdSAS-B , mas não está presente no E2 de nenhum gene codificador de AFPIII . Isso sugere que ψAFPIII é ancestral à AFPIII . No entanto, perto do final da sequência codificadora de proteína do E2 parece um local estranho para uma mutação que permite que uma sequência seja traduzida novamente. Além disso, o precursor ψAFPIII era funcional e pode simplesmente ter se pseudogeneizado após a criação de uma repetição em tandem, e a repetição (um gene AFPIII inicial ) sofreu a deleção de 6 nucleotídeos que criou uma AFP melhor do que o precursor ψAFPIII . A própria repetição foi então repetida em tandem. Voltar ao texto .
Deng et al. , ref. 2, informações complementares, p. 1; Figura S2. Voltar ao texto .
Os defensores da hipótese da duplicação gênica na evolução argumentam que uma mutação pode causar a duplicação de um gene, permitindo que uma cópia do gene sofra mutação e evolua para desempenhar uma nova função, enquanto a outra cópia continua a desempenhar a função original. A duplicação gênica é hoje amplamente considerada pelos darwinistas como a principal fonte de todos os novos genes. Uma revisão das evidências mostra que existem inúmeros problemas e contradições nessa teoria, e as evidências empíricas indicam que a duplicação gênica tem um papel na variação dentro das espécies, mas não na evolução. Os darwinistas, portanto, não têm mais nada em que se basear além de depender fortemente de extrapolações a partir de similaridades genéticas — um argumento circular fundamentado na premissa da evolução, e mais um exemplo de narrativa evolucionista.
Foto por Jenny Erickson
Os efeitos adversos da duplicação gênica, como a síndrome de Down, são bem conhecidos. Embora a metodologia esteja disponível, ainda não foram documentadas evidências de genes funcionalmente úteis resultantes da duplicação.
Um dos maiores mistérios da biologia é como um organismo tão simples quanto uma bactéria unicelular pôde dar origem a algo tão complexo quanto um ser humano.<sup> 1</sup> Como a vida evoluiu de alguns poucos genes primordiais para as dezenas de milhares de genes em organismos superiores ainda é uma questão central no darwinismo. A principal hipótese atual é que isso ocorreu por meio da duplicação gênica.<sup> 2–6 </sup> Shanks concluiu que "a duplicação é a maneira pela qual os organismos adquirem novos genes. Eles não aparecem por mágica; aparecem como resultado da duplicação."<sup> 7</sup> Ernst Mayr, um dos darwinistas mais respeitados do século XX , concorda, dizendo:
'Um novo gene desse tipo é chamado de gene paralogo . Inicialmente, ele terá a mesma função que seu gene irmão. No entanto, ele geralmente evoluirá por meio de mutações próprias e, com o tempo, poderá adquirir funções diferentes das de seu gene irmão. O gene original, porém, também evoluirá, e esses descendentes diretos do gene original são chamados de genes ortólogos .' 8
Ohno vai além, concluindo que "a duplicação de genes é o único meio pelo qual um novo gene pode surgir" (ênfase minha), uma visão que Li considera "em grande parte válida". 9 Além disso, Ohno argumenta que não apenas genes, mas genomas inteiros foram duplicados no passado, causando "grandes saltos na evolução — como a transição de invertebrados para vertebrados — [que] só poderiam ocorrer se genomas inteiros fossem duplicados". Kellis et al . concordam que "a duplicação de genomas inteiros seguida por perda maciça de genes e especialização tem sido postulada há muito tempo como um poderoso mecanismo de inovação evolutiva". 10,11
A evolução por duplicação de genes é uma forma de exaptação. 12-14 A exaptação é o suposto processo evolutivo pelo qual uma estrutura que evoluiu para algum outro propósito é reatribuída à sua função atual.
Evidências de duplicação gênica
A duplicação de genes ocorre, sim. Por exemplo, a recombinação cromossômica pode resultar na perda de um gene em um cromossomo e no ganho de uma cópia extra no cromossomo irmão. A duplicação de genes pode envolver não apenas genes inteiros, mas também partes de genes, vários genes, partes de um cromossomo ou até mesmo cromossomos inteiros.
Todas essas condições são bem conhecidas porque são causas importantes de doenças (incluindo câncer) e podem até levar à morte. Eakin e Behringer concluem:
'A duplicação espontânea do genoma dos mamíferos ocorre em aproximadamente 1% das fertilizações. Embora se acredite que uma ou mais duplicações de genoma completo tenham influenciado a evolução dos vertebrados, a poliploidia dos mamíferos contemporâneos é geralmente incompatível com o desenvolvimento e a função normais de quase todos os tecidos. Na maioria das vezes, a divergência da ploidia em relação à norma diploide (2n) resulta em um estado patológico.' 15
Li observou que a poliploidia (ter mais cromossomos do que o número diploide usual) "provavelmente causa um desequilíbrio grave no produto gênico, e sua chance de ser incorporada à população é pequena".¹⁶ Ele conclui que, tanto para vertebrados quanto para invertebrados, somente quando genes individuais, ou poucos genes, são duplicados é que existe a possibilidade de evolução de novos genes.
A ideia de duplicação gênica vem sendo pesquisada há mais de 30 anos. Embora tenha sido discutida pela primeira vez por Haldane em 1932 e Miller em 1935, ela só foi abordada em detalhes em 1970, no livro de Susumu Ohno, * Evolution by Gene Duplication* (Evolução por Duplicação Gênica ) .¹⁷ Quando Ohno propôs a ideia, muitos de seus colegas a consideraram "absurda".¹⁰ No entanto , a duplicação gênica só pôde ser avaliada experimentalmente com o desenvolvimento das técnicas de biologia molecular. Mesmo hoje, a principal evidência do papel da duplicação gênica na evolução deve ser inferida a partir da similaridade entre genes (ou seja, um argumento baseado na homologia). Nas palavras de Hurles:
'A principal evidência de que a duplicação desempenhou um papel vital na evolução de novas funções gênicas é a existência generalizada de famílias de genes. Os membros de uma família de genes que compartilham um ancestral comum como resultado de um evento de duplicação são denominados parálogos, distinguindo-os dos genes ortólogos em genomas diferentes, que compartilham um ancestral comum como resultado de um evento de especiação. Os genes parálogos podem ser frequentemente encontrados agrupados dentro de um genoma, embora parálogos dispersos, muitas vezes com funções mais diversas, também sejam comuns.' 18
O fato de dois genes serem semelhantes não prova que um deles tenha sido produzido como resultado de duplicação.
O método ideal para comprovar a origem de genes funcionalmente úteis como resultado da duplicação gênica seria utilizar as mesmas técnicas empregadas para comprovar os efeitos adversos da duplicação gênica. Uma criança com uma anomalia como a síndrome de Down (trissomia do cromossomo 21) é estudada para identificar diferenças genéticas em comparação com a população em geral e, principalmente, com seus pais. Se nenhum dos pais apresenta trissomia do cromossomo 21 e a causa, um cromossomo 21 extra, for determinada como resultado de não disjunção, pode-se concluir que a duplicação gênica causou a anomalia. No caso oposto, se uma criança com habilidades excepcionais apresenta um gene não encontrado em seus pais e estudos genéticos do histórico familiar evidenciam duplicação gênica e mutações na herança genética da criança, isso constitui uma forte evidência de que a duplicação gênica produziu a característica vantajosa. Esse método pode ser utilizado para rastrear o processo por várias gerações, de modo a identificar casos que envolvam mais de uma mutação. Até o momento, porém, ninguém parece ter realizado essa pesquisa, ou, se o fizeram, os resultados não corroboraram a teoria da duplicação gênica e não foram publicados.
Duplicação cromossômica em plantas
Anomalias cromossômicas, como a triploidia, geralmente são prejudiciais na maioria dos animais, especialmente nos animais superiores. Por outro lado, a poliploidia em plantas é muito comum e pode, em muitas circunstâncias, beneficiar a planta, embora poucos pesquisadores argumentem que ela desempenha um papel significativo na evolução em larga escala. <sup>19</sup> Há algumas evidências de que a poliploidia é um mecanismo que produz variedade dentro de tipos criados, semelhante aos efeitos do crossing-over que ocorre durante a meiose. Os efeitos específicos da poliploidia dependem do ambiente e da planta. A poliploidia aumenta o tamanho da célula, causando uma redução na relação superfície/volume que pode diminuir a taxa de algumas funções celulares, incluindo o metabolismo e o crescimento. Por outro lado, alguns poliploides são mais tolerantes à seca e a solos deficientes em nutrientes. Além disso, alguns poliploides apresentam maior resistência a pragas e patógenos.<sup> 20 </sup> No entanto, em todos esses casos, existe um custo adaptativo, o que significa que, em muitos ambientes, a poliploidia é uma desvantagem.
É necessário muito mais pesquisa para uma compreensão adequada da poliploidia vegetal, a fim de determinar em que condições específicas ela é prejudicial e, inversamente, em que condições específicas ela é benéfica. Como sua função biológica parece ser principalmente a de produzir variedade, ela normalmente não é letal (ou mesmo regularmente letal), como ocorre na maioria dos casos de poliploidia animal.
Alguns invertebrados toleram a poliploidia. As abelhas machos, por exemplo, possuem um número haploide de cromossomos, enquanto as fêmeas possuem um número diploide. Isso não faz com que as fêmeas evoluam mais rapidamente, como a teoria da duplicação gênica poderia prever. Nos raros casos de poliploidia em vertebrados, a maioria dos exemplos envolve espécies incomuns que "demonstram um modo de reprodução partenogenética, não possuem cromossomos sexuais heteromórficos ou têm um sistema de determinação sexual induzido pelo ambiente". 21
A duplicação artificial de genes para fins experimentais foi desenvolvida em ratos, mas não forneceu nenhuma evidência de evolução porque é letal:
'A produção de embriões tetraploides (4n) tornou-se uma manipulação experimental comum em camundongos. Embora o desenvolvimento de camundongos tetraploides geralmente não seja observado além da metade da gestação [ou seja, é fatal], quimeras tetraploides:diploides (4n:2n) são amplamente utilizadas como um método para resgatar defeitos extraembrionários [ou seja, um defeito genético que normalmente é fatal pode ser artificialmente adaptado para sobreviver na quimera].' 22
Problemas com a teoria da duplicação genética
O desafio estatístico
A avaliação estatística das previsões da teoria da duplicação gênica não parece ser favorável a ela. Por exemplo, a teoria prevê uma correlação positiva entre a complexidade do organismo e o número de genes, o tamanho do genoma e/ou o número de cromossomos. Todas essas previsões são contraditas pelas evidências.
Em relação ao número de genes, os humanos possuem cerca de 25.000 genes, enquanto o arroz possui 50.000. Em termos de tamanho do genoma, o maior genoma conhecido não ocorre no ser humano, mas sim em uma bactéria! A Epulopiscium fishelsoni carrega 25 vezes mais DNA que uma célula humana, e um de seus genes foi duplicado 85.000 vezes, e ainda assim é considerada uma bactéria .
Em termos de número de cromossomos, a ordem decrescente de números diploides para uma seleção de animais é a seguinte: Cambarus clarkii (um lagostim) 200, cachorro 78, galinha 78, humano 46, Xenopus laevis (rã-de-unhas-africana) 36, Drosophila melanogaster (mosca-da-fruta) 8, Myrmecia pilosula (uma formiga) 2. Esses resultados não se encaixam nas previsões da teoria da duplicação gênica — talvez eles impliquem que voar com as próprias asas ou em aviões (mosca-da-fruta e humano, respectivamente) requer menos aporte cromossômico do que ficar deitado em pântanos (rã e lagostim, respectivamente).
Outro desafio estatístico foi observado pelo professor de genética evolucionista Steve Jones, que concluiu que existe uma relação inversa entre a quantidade de DNA, por um lado, e, por outro, tanto o estilo de vida letárgico quanto a velocidade com que os organismos podem evoluir: quanto mais DNA, mais lenta a evolução. Duplicar o DNA exige muita energia e recursos, e quanto menos DNA um organismo possui, mais rápido ele pode se reproduzir (e mais eficiente ele é). Jones observa que "todas as ervas daninhas têm genomas pequenos, enquanto plantas mais estabelecidas são repletas de DNA e podem levar um mês para produzir um único óvulo". Outro exemplo citado por Jones é o do peixe-pulmonado, que "está repleto de DNA (a maior parte sem função aparente) e sua evolução estagnou completamente... as bactérias são rápidas e não têm excesso de material genético, enquanto as salamandras, por mais lentas que sejam, estão cheias de DNA". Em sua visão, a seleção natural seleciona contra a duplicação de genes.
O desafio evo-devo
Foto de Robert Engelhardt, Wikipedia.org
As abelhas machos possuem um número haploide de cromossomos, enquanto as abelhas fêmeas são diploides. Isso, no entanto, não faz com que as fêmeas evoluam mais rapidamente, como previsto pela teoria da duplicação gênica.
Uma importante alternativa ao foco exclusivo dos darwinistas nos genes está emergindo na 'evo-devo' (teoria evolutiva do desenvolvimento). Eles afirmam (com grande respaldo em evidências experimentais) que o conteúdo do genoma não é o principal determinante da identidade; é o sistema de controle epigenético que decide como os genes são usados. 'Um número surpreendentemente pequeno de genes — “genes de ferramentas” — são os componentes primários para a construção de todos os animais, e esses genes surgiram antes... da explosão cambriana [ênfase adicionada].' 27 Isso significa que os genes essenciais não mudaram significativamente ao longo do tempo, contradizendo a principal alegação do neodarwinismo. A função desses genes pode ser comparada às teclas de um teclado de piano. O tipo de música que é tocada (isto é, se um embrião se transforma em um homem ou em um rato) é determinado, não tanto pelas teclas em si, mas pelo músico que as toca e pela partitura que ele segue. Se isso for verdade, então os argumentos sobre duplicação de genes são irrelevantes porque a 'evolução' ocorre em outro lugar (isto é, na 'execução' e na 'partitura musical').
O desafio funcional
Como a duplicação de todo o genoma em animais geralmente é letal, Ohno concluiu inicialmente que apenas duas duplicações de genoma completo haviam ocorrido ao longo da história; posteriormente, argumentou que um total de três haviam ocorrido. 28
Mas os darwinistas admitiram que mesmo o processo de duplicação de um único gene é pouco compreendido. Lynch e Conery observam que, embora "a duplicação de genes tenha sido geralmente vista como uma fonte necessária de material para a origem de novidades evolutivas, as taxas de origem, perda e preservação de genes duplicados não são bem compreendidas". 29
Behe e Snoke apontaram que os evolucionistas devem assumir que múltiplos eventos de mutação são necessários para produzir um novo gene funcional, e cada uma das mutações não deve ser eliminada até que o gene tenha evoluído a ponto de ocorrer seleção positiva. 30 Enquanto isso, um gene duplicado pode produzir proteínas defeituosas que podem ser tóxicas ou fatais, ou, no mínimo, sobrecarregar os recursos da célula e desperdiçar aminoácidos e energia. Por causa disso, a seleção natural atua sobre
'Duplicações de genes, geralmente por meio da exclusão desses genes do conjunto gênico ou pela sua degradação em pseudogenes não funcionais. Isso ocorre porque genes duplicados totalmente funcionais, em combinação com o gene parental correspondente, produzem quantidades anormalmente abundantes de transcritos. Essa superexpressão frequentemente altera o frágil equilíbrio molecular dos produtos gênicos em nível celular, resultando, em última análise, em consequências fenotípicas deletérias.' 31
Zhang, em um estudo sobre duplicação gênica, concluiu que muitos genes duplicados se tornam pseudogenes degenerados e não funcionais e, apenas em 'casos raros', uma 'nova função pode evoluir', como se acredita ter ocorrido no macaco langur-de-douc. 32 Esses langures possuem duas cópias de um gene de enzima degradadora de RNA, enquanto outros macacos possuem apenas uma cópia. A cópia extra auxilia o langur na digestão de sua dieta especializada de folhas. Os pseudogenes são considerados por alguns como genes danificados e por outros como uma fonte de novos genes, 33 e trabalhos recentes sugerem que eles podem ser funcionais. 10
Outro problema funcional, observado pelo geneticista Manfred Schartl, é que
'Seria muito difícil para os primeiros peixes tetraploides — aqueles com quatro cópias de cada cromossomo em vez das duas usuais — se reproduzirem sexuadamente.' 28
Wikipedia.org
Embora a família de genes da globina seja o exemplo mais comumente citado de "evolução por duplicação gênica", não há evidências que a sustentem. Além disso, sabe-se que as diversas variantes da hemoglobina são projetadas para atender às diferentes demandas do metabolismo de oxigênio durante os vários estágios do desenvolvimento embrionário, fetal e neonatal (e posterior).
Outro mecanismo hipotético é a duplicação parcial, que resulta em um mosaico genético. Essa condição, chamada de gene em mosaico, geralmente consiste em várias regiões diferentes que são semelhantes a outros genes. Da mesma forma, devido a essa semelhança, presume-se que os segmentos genéticos se combinaram aleatoriamente até que uma combinação rara e benéfica ocorresse, de modo que esse gene fosse selecionado. O exemplo hipotético mais comum é o receptor de LDL (lipoproteína de baixa densidade). Essa relação é hipotetizada porque parte do receptor de LDL é semelhante ao hormônio do fator de crescimento epidérmico.
Alguns teorizam que essa parte do gene evoluiu a partir de uma duplicação parcial do gene do fator de crescimento epidérmico. Mas como a função do receptor de LDL foi mantida até que esse gene evoluísse? Sem receptores de LDL funcionais, uma célula não consegue absorver lipídios de forma eficaz, causando não apenas uma deficiência no suprimento celular, mas também excesso de LDL no sangue, resultando em problemas vasculares que vão desde AVC e embolias até doenças cardíacas. Um exemplo é a hipercolesterolemia, uma doença causada por receptores de lipídios defeituosos. As vítimas frequentemente sofrem AVCs e ataques cardíacos antes da adolescência, mesmo seguindo uma dieta com baixo teor de gordura.
Famílias de genes?
Um grupo de genes intimamente relacionados e que, teoricamente, evoluíram por duplicação sucessiva é chamado de família gênica, e um grupo ainda maior de genes com similaridades estruturais é denominado superfamília gênica . Não existem evidências de genes ancestrais que documentem empiricamente a evolução teorizada de qualquer família ou superfamília gênica. Em vez disso, uma "família" gênica é determinada simplesmente por meio de comparações entre genes existentes, observando aqueles que são semelhantes.
Mas qualquer conjunto arbitrário de itens — palavras, ideias ou objetos físicos — pode ser agrupado para formar 'famílias' e 'superfamílias', e não há exceção para os genes. Um automóvel e um cortador de grama, por exemplo, pertencem à 'família das máquinas de quatro rodas', mas isso não implica necessariamente uma ancestralidade comum. Portanto, não somos obrigados a acreditar que, pelo fato de alguns genes terem componentes semelhantes, eles evoluíram de um ancestral comum.
Os primeiros genes que se especulou terem evoluído como resultado da duplicação gênica foram, portanto, as cadeias alfa e beta da hemoglobina, utilizadas para transportar oxigênio nos eritrócitos.<sup> 9 </sup> A família de genes da globina é atualmente o exemplo mais citado de evolução por duplicação gênica. A mioglobina, uma proteína monomérica encontrada principalmente no tecido muscular, onde serve como um local de armazenamento intracelular de oxigênio, é hipotetizada como tendo evoluído para a hemoglobina tetramérica. A hemoglobina consiste em dois dímeros, cada um contendo uma globina alfa e uma globina não-alfa. A globina não-alfa ancestral, chamada globina beta, supostamente deu origem aos genes modernos das globinas gama, delta e épsilon, e a duplicação da globina alfa produziu os genes das globinas épsilon e zeta. Todas essas variantes de globina são utilizadas durante diferentes estágios do desenvolvimento embrionário, fetal e neonatal (e posterior). As cadeias de globina alfa, zeta e épsilon são produzidas no embrião inicial e, por volta do terceiro mês, as últimas são substituídas pela cadeia gama e, posteriormente, pelas cadeias beta ou delta adultas no nascimento.
Mas toda essa suposta evolução se baseia em nada mais do que especulação. Na vida real, os múltiplos usos das moléculas de globina no metabolismo do oxigênio não são um indicador de replicação cega, assim como o uso múltiplo de engrenagens em um mecanismo de relógio não o é. Da mesma forma que cada engrenagem é especificamente estruturada e localizada para realizar uma função particular, é funcionalmente integrada às suas companheiras para executar essa função de forma otimizada e é precisamente regulada para fazê-lo no momento certo, as moléculas de globina também são projetadas para atender às diferentes demandas do metabolismo do oxigênio durante o desenvolvimento do organismo. O local de síntese da hemoglobina também muda do saco vitelino para o fígado e para a medula óssea durante o desenvolvimento, portanto, diferentes ambientes e sistemas de transporte também estão envolvidos. A interrupção da síntese de hemoglobina leva a uma ampla gama de doenças, e os neodarwinistas não conseguiram explicar como o desenvolvimento poderia ter ocorrido com sucesso antes que todo esse sistema complexo estivesse em funcionamento.
Outro exemplo de duplicação é considerado a evolução do Complexo Principal de Histocompatibilidade (MHC) humano. No entanto, estudos posteriores também contestaram algumas dessas afirmações:
'Regiões paralólogas ao MHC nos cromossomos 1, 9 e 19 foram propostas como resultado de duplicações cromossômicas antigas, embora isso tenha sido contestado com base em análises filogenéticas.' 34
O problema da taxa de duplicação de genes
A duplicação de genes é comum o suficiente para fornecer uma fonte adequada para a evolução? A taxa pode chegar a 17% em algumas bactérias e a 65% na planta Arabidopsis , mas esses são exemplos extremos. <sup>32</sup> Um estudo empírico de Lynch e Conery utilizou técnicas demográficas de estado estacionário para determinar com precisão o número de genes duplicados. Este estudo avaliou sete genomas completamente sequenciados. A partir de sua pesquisa, eles estimaram que "a taxa média de duplicação de um gene eucariótico é da ordem de 0,01/gene/milhão de anos, que é da mesma ordem de grandeza que a taxa de mutação por sítio nucleotídico". Os pesquisadores concluíram, a partir de seu estudo, que " a origem de uma nova função parece ser um destino muito raro para um gene duplicado " (ênfase minha). <sup>35</sup>
Outro estudo de Behe e Snoke<sup> 30</sup> avaliou a duplicação gênica usando modelagem matemática e dados publicados sobre duplicação gênica. Seu modelo assume a rota mais simples para produzir uma nova função gênica: um gene duplicado livre de seleção purificadora e sujeito a mutações pontuais, e o número mínimo de modificações biologicamente relevantes necessárias para criar uma nova função. Como o número mínimo de alterações necessárias para a maioria das novas funções gênicas é maior que um aminoácido alterado, e o número de alterações necessárias no DNA para cada aminoácido alterado varia entre um e três, estimativas definitivas são difíceis de obter. No entanto, uma estimativa razoável pode ser obtida ao tentar avaliar a validade do modelo de duplicação-mutação. Behe e Snoke concluíram que, mesmo com estimativas generosas , a fixação de características que requerem alterações em múltiplos resíduos exige tamanhos populacionais e números de gerações tão grandes que "parecem proibitivos". Eles concluíram que a duplicação gênica, juntamente com mutações pontuais, não parece ser um mecanismo promissor para produzir novas proteínas que requerem mais de uma única mutação pontual.
Standish conclui que o artigo de Behe-Snoke não exclui a possibilidade de que
'Mecanismos mais complexos envolvendo mutações maiores e/ou seleção de estados intermediários atuando sobre genes duplicados podem servir como motores de produção de novos genes. O problema é que esses outros mecanismos parecem ser ainda mais complexos e, portanto, menos prováveis do que o modelo conceitualmente simples de duplicação-mutação pontual examinado por Behe e Snoke. Embora o artigo deles sugira que outros mecanismos potenciais devam ser rigorosamente examinados antes de descartar a duplicação e modificação de genes como um mecanismo potencial de evolução, ele demonstra claramente que mesmo os mecanismos darwinianos que parecem mais razoáveis superficialmente devem ser cuidadosamente avaliados antes de serem aceitos como verdadeiramente razoáveis ' [ênfases adicionadas]. 36
Este estudo (e outros) indica que a duplicação gênica não parece fornecer aos darwinistas uma fonte significativa de novos genes. Embora se assuma que muitos, senão a maioria, dos genes tenham surgido por duplicação gênica, há uma clara falta de evidências que sustentem a duplicação gênica como fonte de genes específicos. Outro problema importante é "distinguir adaptações de exaptações". Em outras palavras, como sabemos que um gene resultou de duplicação e não de algum outro meio, como a evolução independente?
O problema da regressão indefinida
A duplicação de genes é um suposto método de exaptação — a apropriação de uma função existente para servir a outro propósito. Gould acreditava que a exaptação era tão importante que "a noção definidora de mudança funcional peculiar [isto é, exaptação] poderia quase ser equiparada à própria mudança evolutiva... em linguagem de livro didático, 'a origem das novidades evolutivas'". 38 Mas esse tipo de argumento é fundamentalmente falho. Se todas as novidades evolutivas surgem de algo que, por sua vez, foi exaptado de algo mais, então resulta uma regressão indefinida. O problema com uma regressão indefinida é que a explicação 'A' depende de uma explicação anterior 'B' que você não forneceu, e a explicação 'B' por sua vez depende de uma explicação anterior 'C' que você também não forneceu. Embora você possa parecer estar explicando algo, não há conteúdo explicativo real — não é explicação alguma.
O problema da conservação
Múltiplos mecanismos de conservação de informação atuam em todos os organismos vivos, desde a seleção natural que elimina os menos aptos, passando por diversos controles reprodutivos e cromossômicos, até rotinas de correção de erros e mecanismos de reparo do DNA, incluindo (aparentemente) a restauração a partir de fontes não-DNA. Como resultado, muitos, senão a maioria, dos genes são "evolutivamente conservados", o que significa que são muito semelhantes em muitos organismos não relacionados, tanto "simples" quanto complexos, modernos e antigos. Muitos genes nas supostas formas de vida mais primitivas são muito semelhantes aos das formas mais avançadas. Esses fatos argumentam fortemente contra a duplicação gênica como mecanismo de evolução, pois indicam que a maioria dos genes era funcionalmente otimizada desde o início.
Conclusões
A proposição de que a evolução em larga escala ocorreu por meio da duplicação de genes é contradita por inúmeras evidências. Atualmente, existem poucas evidências que sustentem a crença de que a duplicação de genes seja uma fonte significativa de novos genes, corroborando a conclusão de um evolucionista molecular da Universidade da Carolina do Sul de que os cientistas não podem "provar que [a duplicação do genoma] não aconteceu, mas [se aconteceu], não teve um grande impacto... Para mim, é um assunto encerrado" .¹⁰
Também é evidente que as evidências atuais para a duplicação gênica são totalmente inferenciais, e não empíricas ou experimentais. A duplicação cromossômica pode produzir variedade útil — mas apenas dentro daquilo que provavelmente são tipos criados — em plantas e invertebrados, e a duplicação de um único gene parece fazer o mesmo em casos raros em vertebrados, mas, de resto, a duplicação gênica geralmente causa doenças e deformidades. As evidências experimentais existentes não apoiam a duplicação gênica como fonte de novos genes para populações de pelo menos menos de um bilhão de indivíduos.<sup> 30</sup> Segundo Hughes, "Tudo o que analisamos [não] apoia a hipótese".<sup> 39</sup> Os darwinistas promovem a duplicação gênica como um meio importante de evolução, não por causa das evidências, mas porque não veem outro mecanismo viável para produzir o grande número necessário de novos genes funcionais para transformar um micróbio em um microbiologista. Em outras palavras, a evolução por duplicação gênica é mais um exemplo de narrativa conveniente.
Agradecimentos
Cliff Lillo, Wayne Frair e Bert Thompson.
Referências
Pennisi, E., Duplicações genômicas : a essência da evolução? Science 294 :2458–2460, 2001. Voltar ao texto .
Gallardo, MH, Kausel, G., Jimenez, A., Bacquet, C., Gonzalez, C., Figueroa, J., Kohler, N. e Ojeda, R., Duplicações do genoma completo em roedores do deserto da América do Sul (Octodontidae), Biological J. Linnean Society 82 :443–451, 2004. Voltar ao texto .
Ohta, T., Evolução por duplicação de genes revisitada: diferenciação de elementos regulatórios versus proteínas, Genetica 118 :209–216, 2003. Voltar ao texto .
Patthy, L., Montagem molecular de genes e a evolução de novas funções, Genetica 118 :217–231, 2003. Voltar ao texto .
Fortna, A., Young, K., MacLaren, E., Marshall, K., Hahn, G., Meltesen, Brenton, M., Hink, R., Burgers, S., Hernandez–Boussard, T., Karimpour–Fard, A., Glueck, D., McGavran, L., Berry, R., Pollack, J. e Sikela, JM, Duplicação e perda de genes específicos de linhagem na evolução humana e dos grandes símios, PloS Biology 2 (7):937–954, 2004. Voltar ao texto .
Hurles, M., Duplicação de genes: o comércio genômico de peças sobressalentes, PloS Biology 2 (7):900–904, 2004. Voltar ao texto .
Shanks, N., Deus, o Diabo e Darwin , Oxford University Press, NY, p. 74, 2004. Voltar ao texto .
Mayr, E., O que é a evolução , Basic Books, NY, pp. 108–109, 2001. Voltar ao texto .
Li, W.-H., Evolução Molecular , Sinauer Associates, Sunderland, MA, p. 269, 1997. Voltar ao texto .
Kellis, M., Birren, BW e Lander, ES, Prova e análise evolutiva da duplicação do genoma ancestral na levedura Saccharomyces Cerevisiae , Nature 428 :617–624, 2004. Voltar ao texto .
Lecharny, A., Boudet, N., Gy, I., Aubourg, S. e Kreis, M., Introns in, introns out em famílias de genes de plantas: uma abordagem genômica para a dinâmica da estrutura gênica, J. Structural and Functional Genomics 3 (1–4):111–116, 2003. Voltar ao texto .
Shi, P., Zhang J., Yang, H. e Zhang Y.-P., Diversificação adaptativa de genes receptores de sabor amargo na evolução de mamíferos, Biologia Molecular e Evolução 20 (5):805–814, 2003. Voltar ao texto .
Goffeau, A., Genômica evolutiva: vendo em dobro, Nature 430 :25, 2004. Voltar ao texto .
Eakin, GS e Behringer, RR, Desenvolvimento tetraploide no rato, Developmental Dynamics 228 :751–766, 2003. Voltar ao texto .
Consórcio Internacional de Sequenciamento do Genoma Humano, Finalizando a sequência eucromática do genoma humano, Nature 431: 931–945, 2004. Voltar ao texto .
Yu J. e outros 97, Uma sequência preliminar do genoma do arroz ( Oryza sativa L. ssp. indica ), Science 296 (5565):79–92, 2002. Voltar ao texto .
Lynch, M. e Conery, JS, A demografia evolutiva de genes duplicados, J. Structural and Functional Genomics 3 :35–44, 2003. Voltar ao texto .
Behe, MJ e Snoke, DW, Simulação da evolução por duplicação de genes de características proteicas que requerem múltiplos resíduos de aminoácidos, Protein Science 13 :2651–2664, 2004; p. 2652. Voltar ao texto .
Boletim do Laboratório Cold Spring Harbor , Cold Spring Harbor Press, Nova York, 15 de fevereiro de 2005, p. 1. Voltar ao texto .
Zhang, J., Evolução por duplicação de genes: uma atualização, Tendências em Ecologia e Evolução 18 :292–298, 2003; p. 292. Voltar ao texto .
Trabesinger–Ruef, N., Jermann, T., Zankel, T., Durrant, B., Frank, G. e Benner, SA, Pseudogenes na evolução da ribonuclease: uma fonte de nova função biomacromolecular? Federation of European Biochemical Societies Letters 382 :319–322, 1996. Voltar ao texto .
Beck, S. e Trowsdale, J., O complexo principal de histocompatibilidade humano: lições da sequência de DNA, Annual Review of Genomics Human Genetics 1 :117–137, 2000. Voltar ao texto .
Publicado em 28 de outubro de 2011 | Atualizado em 21 de fevereiro de 2025
Depende do que você quer dizer com 'novo' e 'informação'...
Assim como as espécies não são estáticas, os genomas também não o são. Eles mudam ao longo do tempo; às vezes aleatoriamente, às vezes em trajetórias pré-planejadas e às vezes de acordo com instruções de algoritmos preexistentes. Independentemente da origem, tendemos a chamar essas mudanças de "mutações". Muitos evolucionistas usam a existência de mutações como evidência da evolução a longo prazo, mas os exemplos que citam estão muito aquém dos requisitos de sua teoria. Muitos criacionistas afirmam que as mutações não são capazes de produzir novas informações. Há muita confusão sobre as definições, incluindo discussões sobre o que constitui uma mutação e a definição de "informação biológica". A evolução requer a existência de um processo para a invenção de novas informações do zero. No entanto, em um genoma que opera em pelo menos quatro dimensões e está repleto de metainformação, as mudanças potenciais são fortemente proibidas. As mutações podem produzir novas informações? Sim, dependendo do que se entende por "novas" e "informações". Elas podem explicar a evolução de toda a vida na Terra? Não!
A frase “Mutações não podem criar novas informações” é quase um mantra entre alguns criacionistas, mas eu discordo. Os evolucionistas têm várias respostas para essa ideia, embora a maioria delas demonstre raciocínio falho. A maioria das respostas evolucionistas revela uma falta de compreensão da complexidade do genoma. Explicarei a seguir por que acredito que o genoma foi projetado para operar em pelo menos quatro dimensões e por que isso dificulta a crença evolucionista na origem de novas informações.
Outra questão, especialmente evidente entre os evolucionistas (mas os criacionistas, incluindo eu mesmo, não estão imunes), é a falta de compreensão da localização da informação biológica. A maioria das pessoas tende a pensar que o DNA (o 'genoma') é o local de armazenamento da informação. Embora seja certamente o local de armazenamento de uma quantidade enorme de informação, essa visão centrada nos genes ignora a informação originalmente inserida nos primeiros organismos criados. A arquitetura da célula, incluindo a parede celular, o núcleo, os compartimentos subcelulares e uma miríade de máquinas moleculares, não se originou do DNA, mas foi criada separadamente e em conjunto com o DNA. Nenhum dos dois pode existir sem o outro. Assim, uma grande, porém imensurável, parte da informação biológica reside nos organismos vivos fora do DNA. Adotar uma perspectiva centrada no organismo muda drasticamente o debate.<sup> 1 </sup> No entanto, como a perspectiva centrada no organismo envolve, em última análise, o gênio criativo de Deus, que não podemos sequer começar a compreender, deparamo-nos imediatamente com um 'muro da incalculabilidade'. Por essa razão, focarei em um subconjunto da informação biológica, a informação genética, no restante deste artigo.
Uma terceira questão envolve o fato de Darwin ter escrito sobre duas ideias diferentes, o que eu gosto de chamar de suas teorias especial e geral da evolução (descritas abaixo). As reações criacionistas contra a evolução em geral levaram a alguns mal-entendidos sobre a quantidade de mudanças que podemos esperar nos organismos vivos ao longo do tempo. Há três ideias básicas que gostaria de apresentar nesta discussão: 1) Da mesma forma que Deus não estava limitado a criar espécies estáticas, Deus não estava limitado a criar genomas estáticos; 2) Deus pode ter inserido algoritmos genéticos inteligentemente projetados nos genomas de suas criações, que causam mudanças na informação genética ou até mesmo criam informação de novo ; e 3) Deus poderia ter inserido informação de forma compactada no genoma, que seria posteriormente descompactada e vista como informação "nova".
Uma 'mutação' é uma alteração na sequência do DNA. As mutações podem ser prejudiciais ou (teoricamente) benéficas, mas todas envolvem alguma alteração na sequência de letras (pares de bases) no genoma. Uma única mutação pode ser tão simples quanto a troca de uma única letra (por exemplo, C substituído por T) ou a inserção ou deleção de algumas letras. Essas mutações simples são a maioria. As mutações também podem ser complexas, como a deleção ou duplicação de um gene inteiro, ou mesmo uma inversão massiva de uma seção de milhões de pares de bases de um braço cromossômico.
Não acredito que todas as diferenças genéticas humanas atuais sejam devidas a mutações. Precisamos distinguir entre mutação e "variação genética planejada". Há um número enorme de diferenças de uma única letra entre as pessoas, e estas são, em sua maioria, compartilhadas entre todos os grupos humanos.² Isso indica que grande parte da diversidade encontrada entre os humanos foi planejada: Adão e Eva carregavam uma quantidade significativa de diversidade genética; essa diversidade estava bem representada na Arca e na população de Babel imediatamente após o Dilúvio, e os grupos humanos pós-Babel eram grandes o suficiente para disseminar a maior parte da variação genética presente em Babel. A maioria das deleções (~90%), no entanto, não é compartilhada entre as várias subpopulações humanas.³ Isso indica que um número significativo de deleções ocorreu no genoma humano, mas após Babel. As deleções aparentemente não são variações genéticas planejadas e são um exemplo de rápida degradação genômica. O mesmo pode ser dito das inserções de DNA, mas elas são cerca de 1/3 tão comuns quanto deleções do mesmo tamanho. A presença ubíqua de grandes deleções únicas nas diversas subpopulações humanas em todo o mundo é uma evidência de rápida erosão ou corrupção da informação genética por meio de mutações.
O que é um gene?
Tecnicamente, um 'gene' é um fragmento de DNA que codifica uma proteína, mas a genética moderna revelou que diferentes partes de diferentes genes são usadas em diferentes combinações para produzir proteínas, <sup> 4,5 </sup> então a definição ainda é um pouco imprecisa.<sup> 6 </sup> A maioria das pessoas, incluindo cientistas, usa 'gene' para se referir a duas coisas diferentes: 1) um fragmento de DNA que codifica uma proteína ou 2) uma característica. Essa é uma distinção importante a ser considerada.
O que é informação?
A questão central da discussão é "O que é informação?", mas o termo "informação" é difícil de definir. Ao abordar esse tema, os evolucionistas geralmente utilizam uma medida estatística chamada Informação de Shannon. Esse conceito foi criado pelo brilhante engenheiro eletrônico C.E. Shannon em meados do século XX , quando buscava responder a perguntas sobre a quantidade de dados que se podia transmitir por uma onda de rádio ou por um fio. Apesar do uso comum, as ideias de Shannon sobre informação têm pouca relação com a informação biológica.
Para ilustrar: um belo vaso de cristal lapidado pode ser descrito com bastante facilidade. Basta descrever o material e a localização de cada aresta e/ou vértice no espaço tridimensional. No entanto, um vaso que vale milhões de dólares pode ser reduzido a um monte de areia sem valor com a mesma facilidade. Se alguém quisesse recriar esse monte de areia exatamente, seria necessária uma enorme quantidade de informações de Shannon para descrever a forma de cada grão, bem como a orientação e o posicionamento dos grãos dentro do monte. O que contém mais "informação", o monte de areia ou o vaso original, no qual foi aplicada uma enorme quantidade de design intencional? Depende da definição de informação que se utiliza!
Figura 1. Um sistema biológico é definido como contendo informação quando todos os cinco níveis hierárquicos de informação a seguir são observados: estatística (aqui omitida por simplicidade), sintaxe, semântica, pragmática e apobética (de Gitt, ref. 9).
Em outras definições de 'informação', a pilha de areia poderia ser descrita com bastante facilidade com apenas algumas medidas estatísticas (por exemplo, tamanho médio do grão, massa de areia, ângulo de repouso). Nesse sentido, qualquer número de pilhas de areia independentes pode ser, para todos os efeitos práticos, idêntico. Essa é a essência do uso de informação por Zemansky , ⁷ mas isso também tem pouco a ver com informação biológica, pois a biologia não é fácil de resumir, e quaisquer tentativas nesse sentido produziriam resultados sem sentido (por exemplo, uma medida estatística da taxa média de uma reação química mediada por uma determinada enzima nada diz sobre a origem da informação necessária para produzir essa enzima).
Uma definição de "informação biológica" não é fácil de encontrar, e isso complica a discussão sobre o poder da mutação em gerar informação. No entanto, pioneiros nessa área, incluindo Gitt<sup> 8 </sup> e outros, já discutiram esse assunto extensivamente, portanto não é necessário reproduzir todos os argumentos aqui. Seguirei Gitt e definirei informação como "... uma mensagem codificada e representada simbolicamente que transmite a ação esperada e o propósito pretendido", e afirmarei que "a informação está sempre presente quando todos os cinco níveis hierárquicos a seguir são observados em um sistema: estatística, sintaxe, semântica, pragmática e apobética" (Figura 1).<sup> 9</sup> Embora talvez não seja apropriada para todos os tipos de informação biológica, acredito que a definição de Gitt possa ser usada em uma discussão sobre o foco principal deste artigo: as mudanças potenciais na informação genética .
As mutações podem criar informação?
Agora podemos abordar a questão principal: "As mutações podem criar novas informações genéticas?"
Figura 2. Visão esquemática do papel central que os VIGEs 'inteligentemente projetados' podem desempenhar na geração de variação, adaptações e eventos de especiação nos genomas dos seres vivos para induzir mudanças no DNA. Parte inferior: os VIGEs podem modular diretamente a saída de algoritmos (morfo)genéticos devido a efeitos de posição. Parte superior: VIGEs localizados em cromossomos diferentes podem ser o resultado de eventos de especiação, pois suas sequências homólogas facilitam translocações cromossômicas e outros rearranjos importantes do cariótipo. (De Terborg, ref. 22.)
1) Deus não estava limitado a criar genomas estáticos, da mesma forma que não estava limitado a criar espécies fixas. 10 No século XIX, Darwin contestou a ideia popular de que Deus criou todas as espécies em sua forma atual. A Bíblia não ensina a "fixidez das espécies", é claro; essa ideia veio dos ensinamentos de cientistas e filósofos mais antigos, principalmente enraizados nos escritos de Aristóteles. 11 Hoje, a maioria dos criacionistas não tem problemas com a não fixidez das espécies. Os evolucionistas constantemente tentam usar o argumento falacioso de que acreditamos na estase das espécies, chegando a nos comparar com pessoas que acreditavam em uma Terra plana, mas ambos são mitos históricos. 12 A maioria das pessoas ao longo da história acreditava que a Terra era redonda, e houve criacionistas, como Linnaeus 13 e Blyth, 14 antes de Darwin, que acreditavam que as espécies poderiam mudar (embora não além de um certo limite). O CMI, em particular, publicou artigos e um DVD¹⁵ sobre como as espécies mudam ao longo do tempo e tem uma seção inteira sobre o assunto em nossa página de perguntas e respostas.¹⁶ Aqui está uma pergunta importante: se as espécies podem mudar, o que dizer de seus genomas?
Não apenas as espécies não são fixas, como diversos artigos foram publicados somente nesta revista sobre o tema de genomas não estáticos, incluindo artigos recentes de Alex Williams, 17 Per Terborg, 18 Jean Lightner, 19 Evan Loo Shan, 20 e outros. Parece que Deus projetou na vida a capacidade de alterar o DNA. Isso ocorre por meio de recombinação homóloga, genes saltadores (retrotransposons, 21 ALUs, etc.) e outros meios (incluindo os erros aleatórios de ortografia do DNA geralmente chamados de 'mutações'). Terborg cunhou a expressão 'elementos genéticos indutores de variação' (VIGEs) 22 para descrever os módulos genéticos inteligentemente projetados que Deus pode ter inserido nos genomas dos seres vivos para induzir alterações na sequência do DNA (figura 2).
2) Os criacionistas argumentam fortemente que os genomas não são estáticos e que a sequência de DNA pode mudar ao longo do tempo, mas também afirmam que algumas dessas mudanças são controladas por algoritmos genéticos incorporados aos próprios genomas. Em outras palavras, nem todas as mudanças são acidentais e uma grande proporção da "informação" genética é algorítmica. Se uma mudança ocorre no DNA por meio de um algoritmo inteligentemente projetado, mesmo um algoritmo projetado para fazer mudanças aleatórias, mas limitadas, como a chamamos? Mutação originalmente significava simplesmente "mudança", mas hoje carrega muita carga semântica adicional. Podemos dizer que um mecanismo projetado por Deus para criar diversidade ao longo do tempo dentro de uma espécie pode ser uma causa de "mutação", com sua conotação de aleatoriedade irrefletida? De fato, há evidências consideráveis de que algumas mutações são repetíveis 23 , 24 (ou seja, não são totalmente aleatórias). Isso sugere a presença de algum fator genômico projetado para controlar a localização da mutação em pelo menos alguns casos. Se algo provoca uma alteração intencional no DNA, chamamos isso de "mutação" ou de "alteração inteligentemente projetada na sequência de DNA"? É claro que mutações aleatórias ainda ocorrem, e estas são em grande parte devidas à taxa de erro dos mecanismos de replicação e reparo do DNA.
3) Pode haver uma quantidade considerável de informações armazenadas no genoma de forma comprimida e oculta. Quando essas informações são descomprimidas, decifradas, reveladas ou desembaralhadas (chame-as como quiser), isso não pode ser usado como evidência da evolução, uma vez que as informações já estavam armazenadas no genoma.
Considere a informação que Deus colocou em Adão e Eva. Um evolucionista analisa qualquer diferença no DNA como resultado de mutação, mas Deus poderia ter inserido uma quantidade significativa de variação genética planejada diretamente em Adão e Eva. Existem milhões de locais no genoma humano que variam de pessoa para pessoa; a maior parte dessa variação é compartilhada entre todas as populações,<sup> 25</sup> e a maioria dessas posições variáveis possui duas versões comuns (A ou G, T ou C, etc.). <sup>26</sup> A maior parte desses locais deve ser onde Deus usou sequências alternativas perfeitamente aceitáveis durante a criação do homem. Essas não são mutações!
As alternativas inatas que Deus colocou em Adão e Eva são embaralhadas ao longo do tempo, e novas características (inclusive muitas boas, que não existiam anteriormente) podem surgir durante esse processo. Como? Uma das maneiras é através de um processo chamado "recombinação homóloga". As pessoas têm dois conjuntos de cromossomos. Digamos que uma certa porção de um dos cromossomos nº 1 de Adão seja lida como "GGGGGGGGGG" e codifique para uma cor verde. A outra cópia do cromossomo 1 seja lida como "AAAAAAAAAA" e codifica para uma cor azul, mas o azul é recessivo. Alguém com uma ou duas cópias do cromossomo com todos os cromossomos G terá uma cor verde. Alguém com duas cópias do cromossomo com todos os cromossomos B terá uma cor azul. Na população primitiva, cerca de três quartos das pessoas terão a versão verde e cerca de um quarto terá a versão azul.
Como, então, esse processo produz novas características? Cromossomos homólogos são recombinados de uma geração para a seguinte por meio de um processo chamado "crossing-over". Se um evento de crossing-over ocorrer no meio dessa sequência, podemos obter uma sequência como "GGGGGAAAAA", que resulta na produção de uma cor roxa. Isso é algo totalmente novo, uma característica nunca vista antes. É o resultado de uma mudança na sequência de DNA e não seremos capazes de diferenciar esse evento de crossing-over de uma "mutação" até que possamos sequenciar o fragmento de DNA em questão. Assim, novas características (às vezes incorretamente ou coloquialmente chamadas de "genes") podem surgir por meio da recombinação homóloga.<sup> 27</sup> Mas isso não é mutação. A recombinação faz parte do genoma inteligentemente projetado e geralmente revela apenas informações que foram previamente inseridas no genoma pelo Criador (também pode revelar novas combinações de mutações e diversidade projetada). Além disso, a recombinação não é aleatória, 28 , 29 portanto, há um limite para a quantidade de novas características que podem surgir dessa forma.
Exemplos ruins usados por evolucionistas
Imunidade adaptativa
Tenho dificuldade em chamar de "mutação" algo como a imunidade adaptativa, que envolve alterações na ordem de um determinado conjunto de genes para criar novos anticorpos. A imunidade adaptativa é frequentemente citada pelos evolucionistas como um exemplo de genes (características) "novos" sendo produzidos por mutação. Aqui temos um exemplo de um mecanismo que pega módulos de DNA e os embaralha de maneiras complexas para gerar anticorpos para antígenos aos quais o organismo nunca foi exposto. Este é um exemplo quintessencial de design inteligente. As alterações no DNA na imunidade adaptativa ocorrem apenas de forma controlada, em um número limitado de genes e em um subconjunto limitado de células que fazem parte do sistema imunológico, e essas alterações não são hereditárias. Assim, o argumento da evolução cai por terra .
Duplicação de genes
A duplicação de genes é frequentemente citada como um mecanismo para o progresso evolutivo e como um meio de gerar informações "novas". Nesse processo, um gene é duplicado (por diversos meios possíveis), desativado por mutação, sofre mutações ao longo do tempo, é reativado por uma mutação diferente e, voilà!, surge uma nova função.
Invariavelmente, as pessoas que usam isso como argumento nunca nos dizem a taxa de duplicação necessária, nem quantos genes duplicados, mas silenciados, esperaríamos encontrar em um determinado genoma, nem a taxa necessária de ativação e desativação, nem a probabilidade de uma nova função surgir no gene silenciado, nem como essa nova função será integrada ao genoma já complexo do organismo, nem a taxa na qual o DNA "lixo" silenciado seria perdido aleatoriamente (deriva genética) ou por seleção natural. Esses números não são favoráveis à teoria da evolução, e os estudos matemáticos que tentaram analisar a questão esbarraram em um muro de improbabilidade, mesmo ao tentar modelar mudanças simples.Isso é semelhante às dificuldades matemáticas que Michael Behe discute em seu livro, The Edge of Evolution . 34 De fato, deleções de genes 35 e mutações de perda de função para genes úteis são surpreendentemente comuns. 36 Por que alguém esperaria que um gene desativado permanecesse por um milhão de anos ou mais enquanto uma nova função improvável se desenvolve?
Mas a situação com a duplicação de genes é ainda mais complexa. O efeito de um gene muitas vezes depende do número de cópias do gene. Se um organismo surge com cópias extras de um determinado gene, ele pode não ser capaz de controlar a expressão desse gene e ocorrerá um desequilíbrio em sua fisiologia, diminuindo sua aptidão (por exemplo, a trissomia causa anomalias como a síndrome de Down devido a esses efeitos da dosagem gênica). Como o número de cópias é um tipo de informação, e como se sabe que ocorrem variações no número de cópias (mesmo entre pessoas <sup>37</sup> ), este é um exemplo de mutação que altera a informação. Observe que eu não disse "adiciona" informação, mas "altera". A duplicação de palavras geralmente é malvista por ser considerada desnecessária (pergunte a qualquer professor de inglês). Da mesma forma, a duplicação de genes geralmente, embora nem sempre, é prejudicial. Nos casos em que ela pode ocorrer sem prejudicar o organismo, é preciso questionar se isso realmente representa uma adição de informação. Melhor ainda, será que esse é o tipo de adição exigido pela evolução? Não, não é.
Diversos criacionistas escreveram sobre este assunto, incluindo Lightner, 38 Liu e Moran. 39 Mesmo que se descubra um exemplo de uma nova função surgindo por duplicação gênica, a nova função deve necessariamente estar relacionada à função da antiga, como um novo, porém similar, produto final da catálise de uma enzima. Não há razão para esperar o contrário. Novas funções surgindo por duplicação não são impossíveis , mas são extremamente improváveis, e tornam-se ainda mais improváveis a cada grau de mudança necessário para o desenvolvimento de cada nova função.
Informações degradadas
Na literatura evolutiva, existem inúmeros exemplos em que a degradação genética foi usada na tentativa de demonstrar um aumento de informação ao longo do tempo. Exemplos incluem a anemia falciforme (que confere resistência ao parasita da malária pela produção de moléculas de hemoglobina deformadas), <sup>40 </sup> a digestão aeróbica do citrato por bactérias (que envolve a perda do controle da digestão anaeróbica normal do citrato)<sup> 41</sup> e a digestão do náilon por bactérias (que envolve a perda da especificidade do substrato em uma enzima contida em um plasmídeo extracromossômico).<sup> 42</sup> Como todos esses exemplos envolvem a deterioração da informação prévia, nenhum deles constitui evidência satisfatória de um aumento na complexidade biológica ao longo do tempo.
Resistência bacteriana aos antibióticos
Este assunto já foi abordado tantas vezes que hesito até em mencioná-lo. No entanto, por algum motivo, os evolucionistas continuam a trazê-lo à tona, quase à exaustão . O leitor interessado pode facilmente encontrar muitos artigos sobre o tema, com refutações criacionistas detalhadas. 43
Mutações gerais de ganho de função
A evolução requer mutações de ganho de função (GOF), mas os evolucionistas têm tido dificuldade em encontrar bons exemplos. 44 A imunidade adaptativa, a recombinação homóloga, a resistência a antibióticos em bactérias e a anemia falciforme em humanos foram usadas como exemplos, mas, como detalhado acima, cada um desses exemplos não atende aos requisitos de uma verdadeira GOF. A falta geral de exemplos, mesmo teóricos, de algo absolutamente necessário para a evolução é um forte indício contra a validade da teoria evolutiva.
O verdadeiro problema
O desenvolvimento de novas funções é o único fator importante para a evolução. Não estamos falando de pequenas mudanças funcionais, mas sim de mudanças radicais. Alguns organismos tiveram que aprender a converter açúcares em energia. Outros tiveram que aprender a captar a luz solar e transformá-la em açúcares. Outros ainda tiveram que aprender a transformar a luz em uma imagem interpretável no cérebro. Essas não são coisas simples, mas processos incríveis que envolvem múltiplas etapas, e funções que envolvem vias metabólicas circulares e/ou ultracomplexas serão eliminadas antes mesmo de terem a chance de se desenvolver em um sistema funcional. Por exemplo, o DNA sem função está pronto para ser deletado, e produzir proteínas/enzimas que não têm utilidade até que uma via metabólica completa ou uma nanomáquina esteja disponível é um desperdício de preciosos recursos celulares. Problemas do tipo "ovo e galinha" são abundantes. O que veio primeiro, a máquina molecular chamada ATP sintase ou as máquinas de produção de proteínas e RNA que dependem de ATP para produzir a máquina ATP sintase? Os processos mais básicos dos quais toda a vida depende não podem ser cooptados de sistemas preexistentes. Para que a evolução funcione, elas precisam surgir do zero, precisam ser cuidadosamente equilibradas e reguladas em relação a outros processos, e precisam funcionar antes de serem mantidas.
Dizer que um gene pode ser copiado e usado para prototipar uma nova função não é o que a evolução exige, pois isso não explica funcionalidades radicalmente novas. Portanto, a duplicação de genes não pode responder às questões mais fundamentais sobre a história evolutiva. Da mesma forma, nenhum dos modos comuns de mutação (alterações aleatórias de letras, inversões, deleções, etc.) tem a capacidade de fazer o que a evolução exige. Darwin usou uma estratégia enganosa em sua obra " A Origem das Espécies" . Ele, na verdade, apresentou duas teorias separadas: o que eu chamo de suas teorias especial e geral da evolução, seguindo Kerkut 45. Darwin se estendeu bastante para mostrar como as espécies mudam. Essa foi a Teoria Especial da Evolução, e ele foi precedido por inúmeros outros, incluindo vários criacionistas, com a mesma ideia.
Ele demorou bastante para chegar ao ponto, mas finalmente disse:
“...Não vejo limite para a quantidade de mudanças... que podem ser efetuadas ao longo do tempo pelo poder de seleção da natureza.” 46
Essa era a sua Teoria Geral da Evolução, e foi aí que ele falhou, pois não apresentou nenhum mecanismo real para as mudanças e desconhecia os mecanismos subjacentes que seriam revelados posteriormente. Usando uma analogia moderna, isso seria semelhante a dizer que pequenas mudanças aleatórias em um programa de computador complexo podem criar módulos de software radicalmente novos, sem causar a falha do sistema.<sup> 47</sup> Assim, o argumento "as mutações podem criar novas informações?" diz respeito, na verdade, à ponte entre os modos especial e geral da evolução. Sim, mutações podem ocorrer dentro de espécies vivas (tipos), mas não, essas mutações não podem ser usadas para explicar como essas espécies (tipos) surgiram em primeiro lugar. Estamos falando de dois processos completamente distintos.
O desafio da metainformação
Precisamos superar a ideia ingênua de que entendemos o genoma porque conhecemos a sequência de uma cadeia linear de DNA. Na verdade, tudo o que sabemos é a primeira dimensão, dentre pelo menos quatro, em que o genoma opera (1: a cadeia linear unidimensional de letras; 2: as interações bidimensionais de uma parte da cadeia com outra, diretamente ou por meio de RNA e proteínas; 3: a estrutura espacial tridimensional do DNA dentro do núcleo; e 4: as mudanças na 1ª , 2ª e 3ª dimensões ao longo do tempo). Veja meu artigo " O genoma humano quadridimensional desafia explicações naturalistas". Há uma quantidade enorme de informações contidas nesse genoma que ainda não deciframos, incluindo múltiplos códigos sobrepostos simultaneamente.<sup> 48</sup> Ao discutir se as mutações podem ou não criar novas informações, os evolucionistas rotineiramente apresentam uma visão excessivamente simplista da mutação e, em seguida, afirmam ter resolvido o problema, enquanto ignoram a verdadeira questão: o antagonismo entre a ultracomplexidade e a mutação aleatória.
Se um genoma quadridimensional já é difícil de compreender, imagine a enorme quantidade de "metainformação" presente nele. Trata-se de informação sobre a informação! É a informação que diz à célula como manter a informação, como repará-la se estiver danificada, como copiá-la, como interpretá-la, como usá-la, quando usá-la e como transmiti-la para a próxima geração. Tudo isso está codificado nessa sequência linear de letras, e a vida não poderia existir sem ela. Na verdade, a vida foi projetada de uma perspectiva de cima para baixo, aparentemente com a metainformação vindo em primeiro lugar. De acordo com um artigo brilhante de Alex Williams, para a vida existir, os organismos requerem uma hierarquia de
Bioquímica perfeitamente pura e específica para cada molécula.
moléculas com estrutura especial,
máquinas moleculares funcionalmente integradas,
funções metabólicas abrangentemente reguladas e orientadas por informações, e
Metainformação de causalidade inversa.
Nenhum desses níveis pode ser obtido por meio de processos naturais, nenhum pode ser previsto a partir do nível inferior, e cada um depende do nível superior. A metainformação é o nível mais alto de complexidade biológica e não pode ser explicada por mecanismos naturalistas, contudo, a vida não pode existir sem ela. 50 Deixando de lado todos os outros argumentos a favor e contra o surgimento da informação biológica, de onde veio a metainformação, da qual toda a vida depende?
Conclusões
A mutação pode criar novas informações? Sim, dependendo do que você entende por "informação". Além disso, "novo" não implica necessariamente "melhor" ou mesmo "bom". Quando os evolucionistas citam exemplos de informações "novas", eles quase invariavelmente estão citando evidências de novas características , mas essas características são causadas pela corrupção de informações existentes . Mutações podem criar novas variedades de genes antigos, como pode ser visto em camundongos de laboratório de pelagem branca, gatos sem cauda e pessoas de olhos azuis. Mas mutações prejudiciais não podem ser usadas para justificar a evolução de moléculas para pessoas. Quebrar algo não leva a uma função superior (e pressupõe uma função preexistente que pode ser quebrada). Além disso, nem todas as novas características são causadas por mutação! Algumas surgem ao desembaralhar informações preexistentes, algumas ao descompactar informações compactadas, algumas ao ativar e desativar certos genes.
Em todos os exemplos que vi sendo usados para argumentar contra o criacionismo, a evolução não é beneficiada. Não existem exemplos conhecidos dos tipos de mutações que proporcionam ganho de informação necessárias para processos evolutivos em larga escala. Na verdade, parece que todos os exemplos de mutações de ganho de função, à luz das necessidades de longo prazo do progresso evolutivo ascendente, são exceções ao que é necessário, porque todos os exemplos que vi envolvem alguma quebra.
Nós, criacionistas, temos a vantagem aqui. Se lidarmos com isso adequadamente, podemos alcançar uma grande vitória em nossa longa luta pela verdade. O genoma não é o que a evolução esperava. Os exemplos de mutações que temos não são dos tipos necessários para o avanço da evolução. A evolução precisa explicar como o genoma quadridimensional, com múltiplos códigos sobrepostos e repleto de metainformação, surgiu. Uma mutação pode criar novas informações? Talvez, mas apenas no sentido mais limitado. Pode criar o tipo de informação necessária para produzir um genoma? Absolutamente não!
Agradecimentos
Devo agradecer a Don Batten, Jonathan Sarfati e três revisores anônimos pelos comentários críticos sobre este manuscrito. Este foi um trabalho de equipe, pois as ideias foram destiladas ao longo de anos de interação entre meus colegas criacionistas, muitas das quais não tiveram suas contribuições mencionadas por falta de espaço, e não por falta de mérito. Receio não ter feito justiça àqueles que me precederam.
Referências e notas
Sou grato a Randy Guliuzza, do Instituto de Pesquisa da Criação, por ter sido o primeiro a me encorajar a mudar de uma perspectiva centrada no gene para uma perspectiva centrada no organismo.
Gabriel, SB et al. , A estrutura dos blocos de haplótipos no genoma humano, Science 296 :2225–2229, 2002.
Conrad, DF et al ., Um levantamento de alta resolução do polimorfismo de deleção no genoma humano, Nature Genetics 38 (1):75–81, 2003; Veja também os artigos de Hinds et al . e McCarroll et al . nessa mesma edição.
Barash, Y. et al ., Decifrando o código de splicing, Nature 465 :53–59, 2010.
Muitos artigos sobre o tema foram publicados na literatura criacionista, incluindo: Batten, D., Ligers and wholphins? What next? Creation 22 (3):28–33.
Confiar em Aristóteles era um "argumento de autoridade", o que pode ser interpretado como uma falácia lógica clássica. Poderíamos ser tentados a dizer que eles deveriam saber mais, mas a autoridade na Antiguidade era muito importante para a cultura da época, e a ciência atual opera com base em um enorme sistema de confiança em autoridades anteriores, até que se prove o contrário.
A noção de Terra plana foi inventada, aparentemente do nada, por Washington Irving em seu romance sobre Colombo. Veja: Vários autores, Quem inventou uma Terra plana? Creation 16 (2):48–49, 1994 e Faulkner, D., Geocentrismo e criação , Journal of Creation 15 (2):110–121, 2001.
Isso não era verdade em seus primeiros anos, mas na última edição do Systema Naturae , Linnaeus já havia incluído informações sobre mudanças ao longo do tempo.
Lightner, JK, Duplicações de genes e mutações não aleatórias na família Cercopithecidae: evidências de mecanismos projetados que impulsionam mutações genômicas adaptativas, Creation Research Society Quarterly 46 (1): 1–5, 2009.
Gabriel, SB et al. , A estrutura dos blocos de haplótipos no genoma humano, Science 296 :2225–2229, 2002.
Digo isso com base em conhecimento pessoal, após muitas horas de estudo. Os dados do HapMap estão disponíveis online para qualquer pessoa verificar minha afirmação: www.HapMap.org.
Shibata, T. et al ., Recombinação genética homóloga como uma propriedade dinâmica intrínseca de uma estrutura de DNA induzida por proteínas da família RecAyRad51: Uma possível vantagem do DNA sobre o RNA como material genômico, Proceedings of the National Academy of Science (EUA) 98 (15):8425–8432, 2001.
Berg. IL, et al ., A variação de PRDM9 influencia fortemente a atividade do ponto quente de recombinação e a instabilidade meiótica em humanos, Nature Genetics 42 (10):859–864, 2010.
Parvanov, ED, Petkov, PM e Paigen, K., Prdm9 controla a ativação de pontos quentes de recombinação em mamíferos, Science 327 :835, 2010.
Digite 'imunidade adaptativa' na caixa de pesquisa do creation.com e você encontrará diversos artigos relevantes que discutem esse assunto com mais profundidade.
Axe, DD, Os limites da adaptação complexa: uma análise baseada em um modelo simples de populações bacterianas estruturadas, BIO-Complexity 2010 (4):1–10, 2010.
Kerkut, GA, Implicações da Evolução (Pergamon, Oxford, Reino Unido), p. 157, 1960.
Darwin, CR, Sobre a Origem das Espécies por Meio da Seleção Natural, ou a Preservação das Raças Favorecidas na Luta pela Vida , 1ª ed ., John Murray, Londres, p. 109, 1859; darwin-online.org.uk.
Stevens, RW, A evolução pode criar um novo software biológico? Creation Research Society Quarterly 46 (1):17–24, 2010.
Itzkovitz, S., Hodis, E. e Segal, E., Códigos sobrepostos em sequências codificadoras de proteínas, Genome Research 20 :1582–1589, 2010.
Mutações: o motor da evolução torna-se o fim da evolução!
Por Alex Williams
Publicado em 31 de agosto de 2009 | Atualizado em 18 de setembro de 2009
As mutações não fornecem novas informações para projetos orgânicos inovadores, mas sim impulsionam toda a vida na Terra implacavelmente em direção à deterioração do genoma.
Na teoria neodarwinista, as mutações são eventos exclusivamente biológicos que fornecem o motor da variação natural para toda a diversidade da vida. No entanto, descobertas recentes mostram que a mutação é o resultado puramente físico do dano mecânico universal que interfere em toda a maquinaria molecular. Os mecanismos de correção, prevenção e reparo de erros da vida sofrem os mesmos danos e deterioração. A consequência é que toda a vida multicelular na Terra está passando por uma deterioração inexorável do genoma. As taxas de mutação são tão altas que são claramente evidentes durante a vida de um ser humano, e todos os indivíduos sofrem, de modo que a seleção natural é impotente para eliminá-los. Os efeitos são, em sua maioria, tão pequenos que a seleção natural não consegue "enxergá-los", mesmo que pudesse remover seus portadores. Nossas células reprodutivas não são imunes, como se pensava anteriormente, mas são tão suscetíveis a danos quanto as células do nosso corpo. Independentemente de os cálculos serem feitos por criacionistas ou evolucionistas, entre alguns milhares e alguns milhões de mutações são suficientes para levar uma linhagem humana à extinção, e isso provavelmente ocorrerá em uma escala de tempo de apenas dezenas a centenas de milhares de anos. Isso está muito aquém das supostas escalas de tempo evolutivas.
Mutações destroem
Banco de imagens.xchng
Desde que Hugo de Vries descobriu as mutações na década de 1890, elas têm desempenhado um papel central na teoria da evolução. De Vries era tão fascinado por mutações que desenvolveu uma teoria saltacionista antidarwinista da evolução apenas por meio de mutações.<sup> 1 </sup> Mas, à medida que mais se descobriu, constatou-se que mutações de grande efeito eram universalmente letais, de modo que apenas mutações de pequeno efeito podiam ser consideradas relevantes para a evolução, e a teoria saltacionista de de Vries perdeu força. Quando a Síntese Neodarwinista surgiu nas décadas de 1930 e 1940, as mutações passaram a ser consideradas as variações naturais sobre as quais a seleção natural atuava para produzir todas as novas formas de vida.
Contudo, contradizendo diretamente o papel central da mutação na diversidade da vida, temos observado crescentes evidências experimentais de que as mutações destroem a vida . Nos círculos médicos, as mutações são universalmente consideradas deletérias. Elas são uma causa fundamental do envelhecimento, 2,3 do câncer 4,5 e de doenças infecciosas. 6
Mesmo entre os apologistas evolucionistas que buscam exemplos de mutações benéficas, o melhor que conseguem fazer é citar mutações prejudiciais que apresentam efeitos colaterais benéficos (por exemplo, traço falciforme, 7 uma deleção de 32 pares de bases em um cromossomo humano que confere resistência ao HIV em homozigotos e retarda o início da AIDS em heterozigotos, 8mutação CCR5-delta32 , 9 melanismo animal, 10 e supressão da espinha pélvica do peixe-espinho 11 ). Tais resultados não são de todo surpreendentes à luz da descoberta de que o DNA sofre até um milhão de eventos de dano e reparo por célula por dia. 12
Física da mutação
A teoria neodarwinista representa as mutações como eventos exclusivamente biológicos que constituem o "motor" da variação biológica. No entanto, agora que podemos observar a vida funcionando em detalhes moleculares, torna-se óbvio que as mutações não são eventos exclusivamente biológicos — são eventos puramente físicos.
A vida funciona através do movimento constante (frequentemente extremamente rápido) da maquinaria molecular nas células. As células são totalmente preenchidas com sólidos e líquidos — não há espaços livres. As máquinas moleculares, a arquitetura celular e as estruturas internas são compostas por polímeros orgânicos de cadeia longa (como proteínas, DNA, RNA, carboidratos e lipídios), enquanto o líquido é principalmente água. Todas as formas de movimento estão sujeitas às leis do movimento, mas as consequências desse simples fato físico têm sido quase universalmente ignoradas na biologia.
A primeira lei do movimento de Newton afirma que um corpo físico permanecerá em repouso, ou continuará a se mover a uma velocidade constante, a menos que uma força externa atue sobre ele. Imagine uma molécula mensageira sendo enviada de uma parte da célula para outra. Como a célula está repleta de outras moléculas, sem espaços vazios, a molécula mensageira logo colidirá com outras moléculas e diminuirá sua velocidade ou parará completamente. Esse é o problema universal conhecido como atrito .
Os eventos de fricção podem resultar de muitas causas, mas podem ser divididos, de forma geral, em dois tipos: um é denominado aragem e o outro é cisalhamento . A aragem envolve o deslocamento físico de materiais para facilitar o movimento de um objeto, enquanto o cisalhamento surge da ruptura das interações adesivas entre superfícies adjacentes. 13
Figura 1. Uma embalagem transparente de iogurte de frutas ilustra como o atrito no fluido viscoso interrompeu o movimento iniciado pela mistura da fruta (cor escura) com o iogurte (cor branca).
As máquinas moleculares nas células devem grande parte de sua estrutura às ligações de hidrogênio, mas estas são relativamente fracas e se rompem com facilidade. Por exemplo, a maioria das proteínas são longas cadeias de aminoácidos fortemente ligadas, mas essas longas cadeias são enroladas em componentes tridimensionais, e as estruturas tridimensionais são mantidas unidas por ligações de hidrogênio.<sup> 14</sup> Quando tais estruturas sofrem impactos mecânicos, a transferência de momento pode distorcer ou romper as ligações de hidrogênio e prejudicar criticamente a função da molécula.
O interior de uma célula tem densidade e viscosidade semelhantes às do iogurte (figura 1). A fruta cozida (de cor escura) adicionada ao iogurte durante a fabricação pode ser vista se misturando ao iogurte branco. A fruta não continuou a se dispersar por todo o iogurte. Seu movimento foi completamente interrompido pelo atrito inicial. Isso é semelhante ao que acontece em uma célula: qualquer movimento é rapidamente amortecido por forças de atrito de todos os tipos, vindas de todas as direções.
Como as células lidam com esse atrito? De pelo menos cinco maneiras diferentes. Primeiro, existem proteínas motoras disponíveis por toda a célula que se ligam a moléculas móveis e as transportam ao longo dos filamentos e túbulos que compõem o citoesqueleto celular. Segundo, essas proteínas motoras são continuamente reenergizadas após colisões por atrito, por meio de energia armazenada na forma de moléculas de ATP. Terceiro, existem "etiquetas de endereço" ligadas às moléculas móveis para garantir que sejam entregues ao destino correto (os efeitos do atrito desviam continuamente as moléculas móveis de sua rota). Quarto, finas películas de água cobrem todos os componentes moleculares das células e fornecem tanto uma camada protetora quanto um lubrificante que reduz a frequência e a intensidade das colisões por atrito. Quinto, existe uma ampla gama de mecanismos de manutenção e reparo disponíveis para reparar os danos causados pelo atrito.
O problema do atrito — e os danos que dele resultam — é ordens de magnitude maior nas células do que em sistemas mecânicos maiores. As biomoléculas são objetos muito pontiagudos, com superfícies extremamente ásperas e altamente adesivas. Elas não podem ser fabricadas e polidas até atingirem a suavidade que conseguimos em componentes de motores de veículos, como pistões e pivôs de volante, nem é possível inserir rolamentos de esferas para reduzir a área de contato da superfície, como fazemos em eixos de rodas. Como exemplo biológico, considere o motor rotativo que aciona o flagelo bacteriano. As principais superfícies de desgaste estão no rotor (fixado ao flagelo) e no estator (a carcaça do rotor, fixada à parede celular). O estator consiste em 22 moléculas, dispostas em 11 pares. A taxa de desgaste é tão grande que o tempo médio de permanência de uma molécula do estator no estator é de apenas cerca de 30 segundos.<sup> 15</sup> O sistema de manutenção da célula mantém uma reserva de cerca de 200 moléculas do estator para lidar com essa enorme taxa de renovação.
Encontrar lubrificantes adequados para superar o atrito é um foco importante na indústria da nanotecnologia. Uma técnica especial chamada 'microscopia de força de atrito' foi desenvolvida para avaliar quantitativamente lubrificantes potenciais. 16
Isso demonstra que as leis da física, atuando entre os componentes viscosos da célula, preveem e explicam a alta taxa de danos moleculares que observamos no DNA. Entre 50% e 80% do DNA em uma célula é continuamente consultado para obter as informações necessárias para o metabolismo diário. Essa consulta requer inúmeras etapas, cada uma envolvendo deformação física do DNA — movimentação dentro do núcleo, enrolamento e desenrolamento das estruturas de cromatina, abertura da dupla hélice, ligação e desligamento da maquinaria de transcrição, fechamento da dupla hélice, reenrolamento das estruturas de cromatina e rearranjo dentro do núcleo. Cada etapa do movimento é impulsionada por descargas de ATP e inevitavelmente causa danos mecânicos entre os componentes. Embora a maior parte desses danos seja reparada, os mecanismos de reparo não são 100% perfeitos, pois eles próprios sofrem danos mecânicos.<sup> 17</sup>
Mutações destroem rapidamente
Dentro da teoria neodarwinista, a seleção natural deveria ser a guardiã de nossos genomas, pois eliminaria mutações deletérias indesejadas e favoreceria as benéficas. Não é bem assim, de acordo com o especialista em genética, Professor John Sanford.<sup> 18</sup> A seleção natural só consegue eliminar mutações que tenham um efeito negativo significativo sobre a aptidão (número de descendentes produzidos). Mas essa "aptidão" é afetada por uma enorme variedade de fatores, e a grande maioria das mutações tem um efeito muito pequeno para que a seleção natural consiga detectá-las e removê-las.
Além disso, se a taxa média de mutação por pessoa por geração for em torno de 1 ou mais, então todos são mutantes e nenhuma quantidade de seleção pode impedir a degeneração de toda a população. 19 Acontece que a taxa de mutação na população humana é muito maior que 1. Sanford estima pelo menos 100, provavelmente cerca de 300 e possivelmente mais.
Toda a vida multicelular sofre.
Duas revisões recentes da literatura sobre mutações não apenas confirmam as afirmações de Sanford, mas as estendem a toda a vida multicelular .
Em uma revisão da distribuição dos efeitos de aptidão (DEA) das mutações, <sup>20</sup> os autores não conseguem fornecer nenhum exemplo de mutações benéficas para humanos. Em seus cálculos referentes à taxa de mutações deletérias ( MD ) e mutações neutras ( MN ), eles utilizam as igualdades MD = 1 – MN e MN = 1 – MD , que implicam que a taxa de mutações benéficas é zero. Eles apresentam alguns valores diferentes de zero para taxas de mutação benéficas em alguns organismos experimentais, mas qualificam esses resultados observando a interferência de outras variáveis.
Em uma revisão das variações nas taxas de mutação em eucariotos, <sup>21</sup> os autores admitem que todos os organismos multicelulares estão sofrendo um declínio genômico inexorável devido a mutações, porque a seleção natural não consegue remover o dano.<sup> 22 </sup> O Quadro 2 e a Tabela 1 listam as taxas de mutação deletérias para uma ampla gama de organismos multicelulares, observando que todas são subestimativas , com a possível exceção daquelas para a mosca-da-fruta <i>Drosophila melanogaster</i>, com um valor de 1,2. O valor fornecido para humanos é de aproximadamente 3.
Assim, toda a vida multicelular na Terra está sofrendo uma deterioração genômica inexorável porque as taxas de mutação deletérias são muito altas, os efeitos da maioria das mutações individuais são muito pequenos, não há mutações benéficas compensatórias e a seleção natural é ineficaz para remover os danos.
O ímpeto do movimento neodarwinista desmoronou!
Quanto tempo levará até a extinção?
Por quanto tempo a vida multicelular poderia sobreviver diante da degradação genética universal? Esta é uma questão muito importante, e tentarei respondê-la utilizando diversas linhas de evidência.
Envelhecimento humano e câncer
Descobrimos recentemente que existe uma biologia comum no câncer e no envelhecimento: ambos resultam do acúmulo de danos moleculares nas células. <sup>23 </sup> Isso confirma os argumentos apresentados anteriormente, de que, por razões puramente físicas, a maquinaria molecular sofre taxas de danos extremamente altas, claramente evidentes durante a vida de um único ser humano. Cada célula possui um relógio biológico interno para limitar esses danos e minimizar a chance de se tornar cancerosa. A cada divisão celular, cada telômero (as extremidades dos cromossomos que impedem o desenrolamento da dupla hélice) é encurtado ligeiramente, até atingir o Limite de Hayflick — descoberto em 1965 como sendo um pouco mais de 50 divisões celulares. As células então param de se dividir, são desmanteladas e suas partes são recicladas.
Ao adicionar a enzima telomerase , o problema do encurtamento dos telômeros pode ser contornado, mas isso expõe a célula a um risco maior de se tornar cancerosa devido ao acúmulo de danos em outras partes da célula. O equilíbrio geral entre a proteção contra danos e a necessidade de longevidade determina a aptidão (sucesso reprodutivo) e a expectativa de vida. <sup>24</sup> A reação normal do corpo ao aumento dos danos ao genoma é eliminar as células danificadas por meio da senescência programada (da qual o relógio dos telômeros, com seu limite de Hayflick, é apenas uma parte). Mas as células se tornam malignas (cancerosas) quando a mutação desativa o próprio mecanismo de senescência, o que permite que as células danificadas se proliferem sem limite. <sup>22</sup> O limite de Hayflick, em torno de 50 divisões celulares para humanos, parece fornecer o equilíbrio ideal.
Cinquenta gerações humanas de 20 anos cada nos dão apenas 1.000 anos como escala de tempo para que uma linhagem humana comece a apresentar uma carga significativa de mutações em seu genoma. Isso é alarmantemente rápido em comparação com a suposta escala de tempo evolutiva de milhões e bilhões de anos.
Células reprodutivas
Figura 2. Representação esquemática da expectativa de vida humana (—), fertilidade masculina (…) e risco de anomalia fetal em função da idade materna (---). Apesar do limite protetor de Hayflick para divisões celulares e expectativa de vida, danos moleculares muito significativos se acumulam em humanos mesmo durante os anos mais produtivos da vida. As mutações causam ainda mais danos do que o limite de Hayflick e as taxas de câncer associadas sugerem.
Desde que August Weismann publicou "O Plasma Germinativo: Uma Teoria da Hereditariedade" em 1893 , demonstrou-se a existência de uma separação distinta entre as células somáticas (o soma ) e as células germinativas ( o plasma germinativo ). Acreditava-se que as células germinativas eram mais protegidas contra mutações do que outras células somáticas. No entanto, outra causa recentemente descoberta do envelhecimento é o fato de nossas células-tronco envelhecerem como resultado de danos hereditários ao DNA e da degeneração de seus nichos de suporte (as áreas especiais presentes na maioria dos órgãos e tecidos do corpo onde as células-tronco crescem, são nutridas e protegidas). O mecanismo de encurtamento dos telômeros — destinado a reduzir a incidência de câncer — parece também induzir o efeito colateral indesejado de uma diminuição na capacidade replicativa de certos tipos de células-tronco com o avançar da idade. Essa diminuição da capacidade regenerativa levou à formulação de uma "hipótese das células-tronco" para as doenças degenerativas associadas ao envelhecimento humano .
Os problemas de fertilidade humana sugerem que o declínio na proteção do nicho das células-tronco também se aplica aos nossos gametas (óvulos e espermatozoides). Nos homens, a fertilidade — medida pela contagem de espermatozoides, vigor espermático e probabilidade de concepção — começa a declinar significativamente por volta dos 40 anos, e a taxa de certos defeitos congênitos associados à herança paterna aumenta rapidamente durante a década dos 30 (figura 2).<sup> 27</sup> Nas mulheres, a probabilidade de defeitos congênitos aumenta rapidamente a partir de meados dos 30 anos, particularmente devido a anormalidades cromossômicas (figura 2). No auge da fase mais produtiva de nossas vidas, nossos corpos apresentam, portanto, evidências claras de declínio por meio do acúmulo de danos moleculares em nossos genomas.
As células germinativas realmente sofrem menos danos?
Quando se descobriu que o DNA era o portador da hereditariedade, a teoria do plasma germinativo de Weissman deu origem à "hipótese da fita imortal". Acreditava-se que, quando o DNA de uma célula-tronco embrionária se replicava, a fita "antiga" permaneceria com a célula-tronco "mãe" autorrenovável, enquanto a fita "filha" recém-construída seguiria o caminho da diferenciação em uma célula somática. Dessa forma, a fita "antiga" permaneceria livre de erros — porque não teria sofrido erros de cópia — e, assim, se tornaria efetivamente imortal.
No entanto, uma equipe de pesquisa do Instituto Memorial Howard Hughes testou recentemente essa teoria usando as células-tronco que produzem sangue e descobriu que elas segregam seus cromossomos aleatoriamente.<sup> 28 </sup> Ou seja, a "hipótese da cadeia imortal" está errada. Se as células-tronco não recebem esse tipo de tratamento preferencial, é razoável concluir que as células germinativas também estão sujeitas aos mesmos danos moleculares que as células somáticas. Isso é confirmado pela observação de que a fertilidade humana apresenta danos muito antes que as doenças relacionadas à idade se manifestem.
Uma única vida humana é suficiente para demonstrar danos mutacionais muito significativos, mesmo em nossas células reprodutivas.
O dilema de Haldane
As graves contradições que essas descobertas representam para a teoria neodarwinista corroboram o que ficou conhecido como o dilema de Haldane . J.B.S. Haldane foi um dos arquitetos do neodarwinismo, pioneiro em sua aplicação à biologia populacional. Ele percebeu que levaria muito tempo para a seleção natural fixar uma mutação vantajosa em uma população — a fixação ocorre quando cada membro possui duas cópias de um alelo, herdadas tanto da mãe quanto do pai. Ele estimou que, para os vertebrados, seriam necessárias cerca de 300 gerações, em média, para que a vantagem seletiva fosse de 10%. Em humanos, com um tempo de geração de 20 anos e cerca de 6 milhões de anos desde nosso último ancestral comum com o chimpanzé, apenas cerca de 1.000 mutações vantajosas desse tipo poderiam ter sido fixadas. Haldane acreditava que a substituição de cerca de 1.000 alelos seria suficiente para criar uma nova espécie, mas está longe de ser suficiente para explicar as diferenças observadas entre nós e nossos supostos parentes mais próximos.
A diferença mensurada entre os genomas humano e do chimpanzé equivale a cerca de 125 milhões de nucleotídeos, que se acredita terem surgido de aproximadamente 40 milhões de eventos de mutação.<sup> 29</sup> Se apenas 1.000 dessas mutações pudessem ter sido selecionadas naturalmente para produzir a nova espécie (humana), isso significaria que as outras 39.999.000 mutações seriam deletérias, o que é totalmente consistente com as revisões que mostram que a vasta maioria das mutações são deletérias. Consequentemente, teríamos degenerado dos macacos, o que é uma conclusão absurda.
De acordo com a teoria da variação facilitada de Kirschner e Gerhart, a vida consiste em dois componentes principais: processos centrais conservados (a estrutura e a maquinaria das células) e processos regulatórios modulares (os circuitos de sinalização e interruptores que operam a maquinaria e fornecem uma fonte intrínseca de variação natural). As 40 milhões de diferenças de "mutação" entre humanos e chimpanzés são, portanto, explicadas de forma muito mais razoável como 40 milhões de diferenças modulares entre o projeto dos chimpanzés e o projeto dos humanos.
Estimativas quantitativas do tempo até a extinção
Existem diversas maneiras de estimar o tempo necessário para que o acúmulo implacável de mutações levasse nossa espécie à extinção.
Estimativas binomiais
Algumas estimativas aproximadas podem ser derivadas da distribuição binomial, que pode prever a probabilidade de acúmulo de múltiplas mutações em um módulo funcional genético essencial. Um modelo binomial de um genoma mutante poderia consistir no DNA da célula sendo dividido em N módulos funcionais, dos quais N<sub> e</sub> são essenciais; ou seja, a linhagem não consegue se reproduzir se algum dos módulos essenciais for desativado. Para qualquer evento mutacional dado, p = 1/ N é a probabilidade de a mutação ocorrer, q é a probabilidade de não ocorrer e pq = 1.
Qual é o valor provável de N ? Podemos derivar duas estimativas a partir do conhecimento de que existem cerca de 25.000 genes, além da descoberta, a partir do relatório do estudo piloto do projeto ENCODE, de que praticamente todo o genoma humano é funcional. 31
Para a primeira estimativa, a proteína média contém algumas centenas de aminoácidos e cada aminoácido requer três nucleotídeos de código, portanto, o gene médio ocuparia cerca de 1.000 nucleotídeos de espaço exônico (um exon é a parte codificadora de proteínas de um gene). Existem cerca de 3 bilhões de nucleotídeos em todo o genoma humano, então, se assumirmos que a proteína média representa uma unidade funcional média, então N = 3 milhões.
A segunda estimativa vem do relatório ENCODE, que indica que as regiões gênicas produzem, em média, 5 transcrições de RNA por nucleotídeo, e as regiões não traduzidas produzem, em média, 7 transcrições de RNA por nucleotídeo. Há cerca de 33 vezes mais nucleotídeos nas regiões não traduzidas do que nas regiões gênicas. Assumindo que o tamanho da transcrição seja aproximadamente igual em cada região, então existem 25.000 x 5 = 125.000 transcrições gênicas e 25.000 x 33 x 7 = 5.775.000 transcrições não traduzidas, resultando em N = 5.900.000 no total. Nossas duas estimativas de N são, portanto, de 3 a 6 milhões, em números aproximados.
Qual é o valor provável de N<sub> e</sub> ? Experimentos com camundongos indicam que 85% dos genes podem ser inativados um de cada vez sem efeitos letais.<sup> 32</sup> Isso se deve à robustez e à tolerância a falhas por meio de mecanismos de contingência incorporados aos projetos genômicos. Isso significa que qualquer um dos 15% restantes de genes será fatal se desativado. No entanto, ocorrem múltiplas mutações, portanto, o valor provável de N<sub> e</sub> quando exposto a múltiplas mutações será muito maior que 15%. O valor máximo possível é 100%. Em um estudo com 2.823 vias metabólicas humanas, 96% produziram condições patológicas quando interrompidas por mutação,<sup> 33</sup> portanto, se calcularmos a média entre esse valor e o mínimo de 15%, obteremos cerca de 60% das unidades funcionais sendo essenciais.
Quantas mutações aleatórias são necessárias, em média, para desativar um módulo funcional essencial? Em casos raros, uma única mutação é suficiente para incapacitar a capacidade reprodutiva de uma pessoa. Um modelo de dois golpes é comum no câncer. Em um estudo de redes de sinalização celular, esses dois golpes geralmente desativam: (i) o sistema de morte celular programada para lidar com células danificadas (cancerosas) e (ii) os controles normais da proliferação celular — permitindo que as células cancerosas danificadas se proliferem sem limites. A proporção de genes associados ao câncer também aumenta com o número de ligações entre os genes. Quando um gene saudável está ligado a mais de 6 genes mutados, cerca de 80% de todos os genes na rede são cancerosos. Extrapolando a partir disso, descobrimos que, quando um gene normal está ligado a cerca de 10 genes mutados, toda a rede se torna cancerosa.<sup> 34</sup>
Quase 70% dos genes humanos conhecidos podem ser agentes causadores de câncer quando mutados.<sup> 35</sup> Cânceres podem resultar de uma única mutação em uma célula-tronco ou de múltiplas mutações em células somáticas. <sup>36</sup> Sabe-se que o valor mínimo possível de 1 é raro, portanto, a ocorrência mais comum do modelo de 2 eventos o torna uma estimativa mínima razoável. Mas pode ser necessário que 10 módulos recebam dois eventos cada para que toda a rede se torne disfuncional.
O número máximo de mutações necessárias para desativar um único módulo pode ser de 100 ou mais, mas se o módulo funcional médio contém apenas 1.000 nucleotídeos, então esse número, representando 10% do total, parece bastante elevado. Uma média aproximada seria, provavelmente, cerca de 10 mutações aleatórias por módulo funcional.
Para contextualizar essas estimativas, trabalhos recentes mostram que o sistema de reparo de danos do ponto de verificação do ciclo celular é ativado quando 10 a 20 quebras de fita dupla se acumulam em uma célula em divisão.<sup> 37</sup> Ou seja, a vida tolera apenas 10 a 20 quebras de DNA por célula antes de iniciar o reparo, enquanto estamos examinando cenários em que ocorrem milhares e milhões de eventos de dano por célula. Nossos números claramente se situam em uma região onde os mecanismos de reparo da célula estão trabalhando ao máximo.
Qual é, então, a probabilidade de acumular 2 acertos em 10 módulos, ou 10 acertos em um módulo, em qualquer um dos 15% ou 60% dos 3 a 6 milhões de módulos funcionais? A distribuição binomial no Microsoft Excel foi usada para fazer os seguintes cálculos, assumindo-se ainda que a probabilidade de a unidade ser crítica deve exceder 50% para que a extinção seja mais provável do que improvável na próxima geração.
Considerando uma essencialidade de 60%, basta desativar um único módulo funcional para que a probabilidade de seu status essencial exceda 50%. Para o modelo de 2 mutações, são necessárias de 6.000 a 12.000 mutações para desativar dez dos 3 a 6 milhões de módulos funcionais. Para o modelo de 10 mutações, são necessárias de 3 a 6 milhões de mutações para desativar um único módulo funcional.
Considerando uma essencialidade de 15%, quatro módulos precisam ser desativados para que a probabilidade de pelo menos um deles ser essencial ultrapasse 50%. Para o modelo de 2 mutações, são necessárias de 250.000 a 500.000 mutações para desativar dez módulos com quatro mutações cada, dentre os 3 a 6 milhões de módulos funcionais. Para o modelo de 10 mutações, são necessárias de 3,7 a 7,5 milhões de mutações para desativar quatro módulos funcionais.
Se cada indivíduo produzir 100 novas mutações a cada geração (considerando um tempo de geração de 20 anos) e essas mutações estiverem distribuídas entre 3 e 6 milhões de módulos funcionais em todo o genoma, então o tempo médio até a extinção será:
De 1.200 a 2.400 anos para o modelo de 2 acertos em 10 módulos e 60% de essencialidade.
De 50.000 a 100.000 anos para o modelo de 2 acertos em 10 módulos e essencialidade de 15%.
De 600.000 a 1.200.000 anos para o modelo de 10 impactos e 60% de essencialidade.
De 740.000 a 1.500.000 anos para o modelo de 10 impactos e 15% de essencialidade.
Seleção de truncamento
O geneticista evolucionista Dr. James Crow argumentou que os humanos provavelmente são protegidos pela "seleção truncada".<sup> 27 </sup> A truncagem ocorre quando a seleção natural elimina preferencialmente os indivíduos com as maiores cargas mutacionais. O geneticista de plantas John Sanford testou as afirmações de Crow desenvolvendo uma simulação computacional de truncagem. Suas premissas foram: 100 indivíduos na população, 100 mutações por pessoa por geração, 4 descendentes por fêmea, 25% de mortes aleatórias não genéticas por geração e 50% de seleção contra os descendentes mais mutantes por geração. Ele assumiu uma perda média de aptidão por mutação de 1 em 10.000. Sua espécie foi extinta em apenas 300 gerações. Com um tempo de geração de 20 anos, isso corresponde a 6.000 anos.<sup> 38</sup>
As suposições de Sanford são um tanto irrealistas, mas existem outras maneiras de abordar o problema. Mutações são eventos puramente aleatórios que seguem uma distribuição de Poisson, e esta se comporta como a curva normal quando o valor médio esperado é maior que cerca de 30. <sup>39</sup> Em uma distribuição de Poisson, a variância é igual ao valor médio esperado e o desvio padrão é a raiz quadrada da variância. Quando o valor médio esperado é 100, o desvio padrão será 10. A curva normal nos diz o seguinte:
Metade das pessoas sofrerá cerca de 100 mutações ou mais, e a outra metade sofrerá cerca de 100 mutações ou menos.
Aproximadamente 84% das pessoas apresentarão 110 mutações ou menos, e, portanto, os 16% restantes apresentarão 110 ou mais mutações. Alternativamente, cerca de 16% das pessoas apresentarão 90 mutações ou menos.
Aproximadamente 97,7% da população apresentará 120 mutações ou menos, e os 2,3% restantes apresentarão 120 mutações ou mais. Alternativamente, 2,3% apresentarão 80 mutações ou menos.
Aproximadamente 99,9% da população sofrerá 130 mutações ou menos, e os 0,1% restantes sofrerão 130 ou mais mutações. Alternativamente, 0,1% sofrerá 70 ou menos mutações.
Se removermos os indivíduos mais mutantes — aqueles com mais de 130 mutações por pessoa por geração — removeremos apenas 0,1% da população, o que praticamente não fará diferença. Se removermos os 50% mais mutantes da população, isso também não resolverá o problema, por dois motivos. Primeiro, a grande maioria das pessoas restantes ainda sofrerá com entre 70 e 100 mutações por pessoa por geração, muito acima do valor de 1 que garante um declínio inexorável. Segundo, remover metade da população a cada geração a levaria à extinção em algumas dezenas de gerações.
Tabela 1. Número estimado de gerações e anos até a extinção para populações de vários tamanhos, quando a aptidão diminui 1,5% em cada geração.
Epistasia sinérgica e tamanho da população
Nenhum dos modelos acima inclui o efeito da epistasia sinérgica (se um gene sofre mutação, seu impacto é atenuado pela atividade coordenada de outros genes) ou do tamanho da população. Podemos incluir esses fatores utilizando a estimativa de Crow de que a aptidão da raça humana está atualmente degenerando a uma taxa de cerca de 1 a 2% por geração. Se utilizarmos um valor médio de 1,5%, então apenas 98,5% da próxima geração produzirá descendentes reprodutivamente viáveis. A geração seguinte terá apenas 98,5% dos sobreviventes capazes de produzir descendentes reprodutivamente viáveis, e assim por diante.
Para qualquer tamanho de população estável N , o tamanho da próxima geração que pode produzir descendentes reprodutivamente viáveis será 98,5% de N , e para qualquer número de gerações G , o número de sobreviventes capazes de produzir descendentes reprodutivamente viáveis será (98,5% ) G de N.
A Tabela 1 mostra o número aproximado de gerações após as quais a população degenera até a extinção (resta apenas um indivíduo, portanto a reprodução não pode continuar). Nenhuma população consegue sustentar uma perda contínua de viabilidade de 1,5%.
O modelo acima pressupõe que, desde o início, haverá uma perda de 1,5% de aptidão a cada geração. No entanto, as simulações binomiais anteriores mostraram que os indivíduos podem tolerar entre alguns milhares e alguns milhões de mutações antes que o dano interfira criticamente em sua capacidade de reprodução. Isso significa que a epistasia sinérgica é um fenômeno real — a vida é robusta diante do ataque mutacional. Em vez da perda imediata de 1,5% a cada geração, a população em geral permaneceria aparentemente saudável por um período muito mais longo antes que o dano se tornasse aparente.
No entanto, a taxa de acúmulo de mutações permanecerá a mesma, pois a causa continua a mesma: danos mecânicos. Isso significa que a maioria das pessoas parecerá saudável, mas atingirá o limiar da disfunção em um período muito mais curto, causando um colapso populacional em vez de um declínio gradual.
De qualquer forma, porém, os prazos serão aproximadamente os mesmos, porque a taxa de acúmulo de danos permanece aproximadamente a mesma.
Resumo
As mutações não são eventos exclusivamente biológicos que fornecem um motor de variação natural para a seleção natural atuar e produzir toda a variedade da vida. A mutação é o resultado puramente físico do dano mecânico onipresente que acompanha toda a maquinaria molecular. Como consequência, toda a vida multicelular na Terra está sofrendo uma deterioração genômica inexorável porque as taxas de mutação deletérias são muito altas, os efeitos das mutações individuais são muito pequenos, não há mutações benéficas compensatórias e a seleção natural é ineficaz na remoção do dano.
O dano é tão grande que se torna claramente evidente durante uma única vida humana. Nossas células reprodutivas não são imunes, como se pensava anteriormente, mas são tão suscetíveis a danos mecânicos quanto as células do nosso corpo. Algo entre alguns milhares e alguns milhões de mutações são suficientes para levar uma linhagem humana à extinção, e isso provavelmente ocorrerá em uma escala de tempo de apenas dezenas a centenas de milhares de anos. Isso está muito aquém das supostas escalas de tempo evolutivas. Assim como a ferrugem corrói o aço de uma ponte, as mutações estão corroendo nossos genomas e não há nada que possamos fazer para impedi-las.
O motor da evolução, quando compreendido corretamente, torna-se o fim da evolução.
De Vries, H., A Teoria da Mutação , edição alemã 1900–03, edição inglesa 1910–11; De Vries, H., Espécies e Variedades: Sua Origem por Mutação, 1905, <en.wikipedia.org/wiki/Hugo_de_Vries>, 11 de agosto de 2007. Voltar ao texto .
Niedernhofer, LJ et al ., Uma nova síndrome progeroide revela que o estresse genotóxico suprime o eixo somatotrófico, Nature 444: 1038–1043, 2006. Voltar ao texto .
Kudlow, BA, Kennedy, BK e Monnat, RJ Jr, síndromes de progeria de Werner e Hutchinson-Gilford: base mecanística das doenças progeróides humanas, Nature Reviews Molecular Cell Biology 8 :394–404, 2007. Voltar ao texto .
Eccleston, A. e Dhand, R., Sinalização no câncer, Nature 441 (7092):423, 2006. Voltar ao texto .
He, XC et al ., Células-tronco intestinais deficientes em PTEN iniciam a polipose intestinal, Nature Genetics 39 :189–198, 2007. Voltar ao texto .
Casanova, JL. e Abel, L., Genética humana de doenças infecciosas: uma teoria unificada, The EMBO Journal 26 :915–922, 2007. Voltar ao texto .
Carroll, SB, A Criação do Mais Apto: DNA e o registro forense definitivo da evolução , Norton, Nova York, pp. 174–179, 2006. Voltar ao texto .
Guilherme, A. e Pacheco, F., Gene do receptor CCR5 e infecção pelo HIV, <www.cdc.gov/genomics/hugenet/factsheets/FS_CCR5.htm>, 11 de agosto de 2007. Voltar ao texto .
Carroll, SB, Formas Infinitas Mais Belas: A nova ciência da evo devo , Norton, Nova York, Cap. 9, 2005. Voltar ao texto .
Carroll, SB, A Criação do Mais Apto: DNA e o registro forense definitivo da evolução , Norton, Nova York, Cap. 8, 2006. Voltar ao texto .
<en.wikipedia.org/wiki/DNA_repair>, 29 de janeiro de 2008. Voltar ao texto .
Leggett, GJ, Brewer, NJ e Chong, KSL, Microscopia de força de fricção : em direção à análise quantitativa da organização molecular com resolução espacial nanométrica, Phys. Chem. Chem. Phys. 7 :1107–1120, 2005. Voltar ao texto .
A maioria das macromoléculas orgânicas contém numerosos átomos de hidrogênio ligados a átomos de carbono. Como o hidrogênio possui apenas um elétron (negativo) e um próton (positivo), a "nuvem" de trajetórias eletrônicas tende a ser facilmente desviada em direção aos campos eletromagnéticos mais fortes no núcleo da cadeia de carbono, conferindo ao átomo de hidrogênio uma pequena força positiva resultante, que fica então disponível para formar uma "ligação de hidrogênio" com sítios ricos em elétrons (negativos) em outras moléculas próximas ou em dobras adjacentes em sua própria cadeia .
Leake, MC et al ., Estequiometria e renovação em complexos de proteínas de membrana de função única, Nature 443 :355–358, 2006. Voltar ao texto .
Leggett, GJ, Brewer, NJ e Chong, KSL, Microscopia de força de fricção: em direção à análise quantitativa da organização molecular com resolução espacial nanométrica, Phys. Chem. Chem. Phys. 7 :1107–1120, 2005. Voltar ao texto .
A fidelidade da cópia varia de acordo com os diferentes sistemas de cópia de DNA presentes em todas as células eucarióticas, com os diferentes tipos de erros que podem ocorrer e com os diferentes estágios em que os erros podem ocorrer. Alguns erros em dez milhões são bastante típicos, mas células mutantes podem produzir de cem a dez mil vezes esse valor. Por exemplo, Pursell, ZF, Isoz, I., Landström, E-.L., Johansson, E. e Kunkel, TA. Regulação da fidelidade da DNA polimerase da família B por um resíduo conservado do sítio ativo: caracterização dos mutantes M644W, M644L e M644F da DNA polimerase ε de levedura, Nucleic Acids Research 35 (9):3076–3086, 2007. Voltar ao texto .
Sanford, JC, Entropia Genética e o Mistério do Genoma , Elim Publishing, Nova Iorque, 2005. Voltar ao texto .
Os humanos habitam a Terra há cerca de 6.000 anos e aproximadamente 250 gerações. Para uma população de 1 milhão de pessoas, uma taxa média de uma mutação a cada 20 pessoas por geração é suficiente para garantir que todos hoje sejam mutantes. Ou seja, (0,054) 250 x 1 milhão de pessoas < 1. Se considerarmos as supostas 300.000 gerações desde a separação dos macacos, então uma taxa de apenas 1 mutação a cada 21.000 pessoas por geração é suficiente para garantir que todos hoje sejam mutantes. Voltar ao texto .
Eyre.-Walker, A. e Keightley, PD, A distribuição dos efeitos de aptidão de novas mutações, Nature Reviews Genetics 8 :610–618, 2007. Voltar ao texto .
Baer, CF, Miyamoto, MM e Denver, DR, Variação da taxa de mutação em eucariotos multicelulares : causas e consequências, Nature Reviews Genetics 8 :619–631, 2007. Voltar ao texto .
Duas diferenças importantes entre organismos multicelulares e bactérias e vírus a este respeito são: (a) tamanho efetivo da população (trilhões nestes últimos); (b) estes últimos têm maior tolerância a mutações e são capazes de usá-las ativamente em seu próprio benefício quando necessário. Ex.: Wagner, J. e Nohmi, T., Atividade mutadora da DNA polimerase IV de Escherichia coli : requisitos genéticos e especificidade mutacional, Journal of Bacteriology 182 (16): 4587–4595, 2000. Voltar ao texto .
Finkel, T., Serrano, M. e Blasco, MA, A biologia comum do câncer e do envelhecimento, Nature 448 :767–774, 2007. Voltar ao texto .
Serrano, M. e Blasco, MA, Câncer e envelhecimento: mecanismos convergentes e divergentes, Nature Reviews Molecular Cell Biology 8 :715–722, 2007. Voltar ao texto .
Weismann, A., O Germoplasma: Uma Teoria da Hereditariedade , Charles Scribner's Sons, 1893. Versão online: www.esp.org/books/weismann/germ-plasm/facsimile/;. Voltar ao texto .
Sharpless, NE e DePinho, RA, Como as células-tronco envelhecem e por que isso nos faz envelhecer, Nature Reviews Molecular Cell Biology 8 :703–713, 2007. Voltar ao texto .
Crow, JF, A alta taxa de mutação espontânea: é um risco para a saúde? Anais da Academia Nacional de Ciências 94 :8380–8386, 1997. Voltar ao texto .
Kiel, MJ et al. , Células-tronco hematopoiéticas não segregam cromossomos de forma assimétrica nem retêm BrdU, Nature 449 :238–242, 2007. Voltar ao texto .
<en.wikipedia.org/wiki/Knockout_mouse>, 14 de agosto de 2007. Voltar ao texto .
Ma, H., et al. , A reconstrução da rede metabólica humana de Edimburgo e sua análise funcional, Biologia de Sistemas Moleculares 3 , Artigo número 135; publicado online, 2007, <www.molecularsystemsbiology.com>. Voltar ao texto .
Cui, O. et al. , Um mapa da sinalização do câncer humano, Biologia de Sistemas Moleculares 3, Artigo número 152, 2007. Voltar ao texto .
He, XC et al ., Células-tronco intestinais deficientes em PTEN iniciam polipose intestinal, Nature Genetics 39 (2):189–198, 2007. Voltar ao texto .
Löbrich, M. e Jeggo, PA, O impacto de um ponto de verificação G2/M negligente na instabilidade genômica e na indução do câncer, Nature Reviews Cancer 7 :861–869, 2007. Voltar ao texto .
Mutações benéficas que ocorrem aleatoriamente são fundamentais para a evolução darwiniana. Sem elas, não há mecanismo pelo qual uma única célula original possa ter se diversificado na miríade de espécies que vemos hoje na Terra e no registro fóssil. Mas, de acordo com relatórios recentes sobre o genoma humano, as mutações estão sendo classificadas em apenas duas categorias: "deletérias" e "funcionais". Mutações benéficas não estão sendo catalogadas. Esse resultado surpreendente está de acordo com a história do conceito de mutação benéfica. A teoria foi originalmente desenvolvida por R. A. Fisher em seu livro de 1930, " A Teoria Genética da Seleção Natural", numa tentativa de salvar o darwinismo, já que a única evidência que ele tinha era de mutações deletérias. Até recentemente, os teóricos da genética perpetuaram essa prática. As mutações benéficas são simplesmente presumidas como existentes porque a teoria darwiniana exige que elas existam. Os primeiros experimentos para caracterizar as propriedades das mutações benéficas foram publicados em 2011 e o resultado contradisse a teoria de Fisher. Esse resultado é analisado na parte 2 deste artigo.
Como estudante de biologia há mais de 50 anos, nunca tive problemas com o conceito de mutações benéficas. Por isso, fiquei chocado ao descobrir, em relatórios recentes sobre o genoma humano, que nenhuma mutação benéfica foi encontrada. Apenas mutações "deletérias" e "funcionais" foram documentadas. Ao pesquisar sobre as abordagens dos teóricos da genética em relação às mutações benéficas e os dados utilizados, fiquei ainda mais surpreso ao descobrir que eles também não dispunham de dados.
A teoria das mutações benéficas foi originalmente desenvolvida pelo estatístico inglês R.A. Fisher, o pai fundador do neodarwinismo, em seu livro de 1930, A Teoria Genética da Seleção Natural . <sup> 1</sup> Mas ele só tinha mutações deletérias para trabalhar e, portanto, formulou sua teoria das mutações benéficas a partir da crença de que elas deviam existir. Os teóricos da genética têm seguido seu exemplo desde então. O domínio que a evolução neodarwinista exerce hoje sobre a academia e a mídia foi, portanto, construído sobre nada mais do que imaginação e necessidade evolutiva.
A obra A Origem das Espécies, de Darwin , deu início ao processo, mas, embora tenha sido amplamente elogiada, enfrentou forte oposição de cientistas profissionais.² No início do século XX, a descoberta dos genes mendelianos e o fato de que eles podiam sofrer mutações praticamente relegaram as ideias de Darwin a um segundo plano. No final da década de 1920, a ciência da genética e a descoberta de que todas as mutações conhecidas eram deletérias representaram um desafio aparentemente fatal para o darwinismo. Mas, em 1930, uma nova revolução começou. Fisher publicou seu livro e, juntamente com o matemático inglês J.B.S. Haldane e o geneticista americano Sewall Wright, compilou, durante as décadas de 1930 e 1940, um conjunto de conhecimentos matemáticos que ficou conhecido como a "Síntese Moderna" ou teoria neodarwinista.
Esse conjunto de teorias permaneceu em grande parte acadêmico até que uma convergência de três eventos adicionais ocorreu em 1953. Watson e Crick publicaram a estrutura de dupla hélice do DNA, dando à biologia seu primeiro fundamento nas ciências físicas exatas. Bernard Kettlewell, pesquisador da Universidade de Oxford, iniciou experimentos sobre melanismo industrial na mariposa-pimenta. Esses experimentos produziram o primeiro exemplo de seleção natural na natureza³ e o conceito tornou-se ortodoxia nos livros didáticos como "evolução em ação". E o geoquímico americano Clair Patterson anunciou em uma conferência o que se tornaria uma "constante universal" na visão de mundo evolucionista: a "idade" da Terra de 4,55 bilhões de anos.
As mutações tornaram-se sinônimo de alterações de nucleotídeos no DNA. A seleção natural ressurgiu como a heroína invencível, promovendo mutações benéficas e eliminando as deletérias. E a abundância de tempo permitiu que o acaso transformasse magicamente qualquer coisa em qualquer outra coisa. Os ateus instruídos de hoje cresceram acreditando na evolução como um fato, a mídia fez dela uma indústria e (quase) todos acreditaram nela. Mas no Congresso da IUPS em Birmingham, em julho de 2013, o presidente, o professor emérito da Universidade de Oxford, Denis Noble, anunciou que “todas as premissas centrais da Síntese Moderna… foram refutadas” .⁴
Mutações benéficas
Apesar das críticas de Noble (e de outros, como ReMine, 5 Sanford 6 ), o conceito de mutação benéfica permanece central no pensamento evolucionista. A ideia subjacente existe desde a época de Darwin. Na página 63 da última edição de 1876 de A Origem das Espécies , Darwin afirmou o seguinte:
“A seleção natural... implica apenas a preservação das variações que surgem e são benéficas ao ser em suas condições de vida.”
Ninguém poderia contestar isso. Darwin definiu o que entendia por "variação" no capítulo 2 de A Origem das Espécies como aquilo que podia ser observado por meio de um estudo cuidadoso de muitos indivíduos das variedades, espécies e gêneros de interesse. Em outras palavras, a seleção natural atuava sobre as "variações" que já estavam presentes, caso fossem observadas com atenção e sistematicidade suficientes. Mas quando a teoria particulada da hereditariedade de Mendel suplantou a teoria da mistura de Darwin, uma mudança drástica ocorreu no significado da palavra "variação". Descobriu-se que as partículas de Mendel (genes) eram capazes de sofrer mutações — de se transformar espontaneamente em algo que não existia anteriormente. Na nova era da genética, uma "variação" não era mais necessariamente algo que já existia e podia ser observado por um cientista cuidadoso. As mutações forneceram aos evolucionistas a primeira evidência concreta de que algo novo poderia surgir, algo que não existia antes. A definição de "variação" de Darwin não era mais válida!
Quando a genética atingiu a maturidade em 1953 com a dupla hélice do DNA e suas bases intercambiáveis portadoras de informação, outra mudança no significado de "variação" ocorreu. Já se sabia que variações naturais do tipo proposto por Darwin eram produzidas durante a fase de recombinação genética da meiose. Mas quando se descobriu que "erros aleatórios" podiam ocorrer na cópia de nucleotídeos individuais do DNA, estes se tornaram as fábricas de "algo novo que não existia anteriormente". O mantra neodarwinista de "mutações e seleção natural" passou a depender inteiramente de erros aleatórios de cópia para produzir a nova informação necessária para a evolução dos micróbios até a humanidade. A "mutação benéfica" dos primeiros geneticistas havia se transformado em um erro aleatório "benéfico" de cópia do DNA.
Algo em troca de nada — o sonho darwiniano
Na primeira edição de A Origem das Espécies, de Darwin, em 1859 , suas primeiras palavras foram uma citação do Tratado de Bridgewater de William Whewell, de 1833 :
“Mas, no que diz respeito ao mundo material, podemos pelo menos ir até este ponto: podemos perceber que os eventos não são provocados por intervenções isoladas do poder Divino, exercidas em cada caso particular, mas sim pelo estabelecimento de leis gerais.”
Em seu capítulo final, Darwin delineou sua visão da vida em todas as suas “infinitas formas, as mais belas e as mais maravilhosas”, como sendo o resultado dessas 'leis gerais'.
Parece louvavelmente científico, mas lendo nas entrelinhas encontramos um homem que deseja ter os privilégios e prazeres da vida sem ter qualquer dívida especial de honra ou gratidão para com o seu Criador ( Romanos 1:21 ). O Criador é mencionado, mas apenas como uma Causa Primeira remota, aquele que imprimiu leis na matéria e soprou vida "em algumas formas ou em uma só" no princípio. Todas as formas de vida subsequentes surgiram como "descendentes diretos" do(s) originador(es) por meio da evolução. DarwinDarwin queria obter toda a variedade da vida — incluindo o homem — "sem custo algum". Assim como as árvores e flores da paisagem inglesa, ele queria se ver como um produto da lei natural. Ele não queria se ver como uma criação especial à imagem e semelhança de um Criador pessoal ( Gênesis 1:26-28 ) que se tornou Salvador pessoal e que um dia retornaria como Juiz pessoal.
O desejo de Darwin de "obter algo sem custo" está no cerne do conceito de mutação benéfica e também na aceitação mundial da evolução. É biologicamente complexo, então usarei um exemplo mecânico da física para ilustrar o ponto. Na década seguinte a 1859, o físico escocês James Clerk Maxwell propôs um experimento mental para explorar a possibilidade de violar a Segunda Lei da Termodinâmica de Lord Kelvin. Se tal coisa fosse possível, poderíamos construir uma máquina de movimento perpétuo e obter "algo sem custo" na forma de um suprimento infinito de energia! Tais máquinas poderiam abastecer o mundo indefinidamente.
Maxwell imaginou uma caixa retangular dividida em dois compartimentos com uma porta na parede divisória. Um demônio benevolente (que ficou conhecido como o Demônio de Maxwell) guardava um dos lados da porta e, quando uma molécula de gás mais quente que a média se aproximava, ele a deixava passar para o outro lado. Depois de um tempo, um dos lados conteria todas as moléculas mais quentes, violando assim a Segunda Lei da Termodinâmica, que previa que o calor tenderia a se mover de uma região mais quente para uma mais fria, e não o contrário.
Uma máquina que utiliza o princípio do Demônio de Maxwell foi criada para atingir temperaturas tão próximas do zero absoluto que são medidas em milionésimos de grau. Dois feixes de laser substituem o demônio, mas o resultado é o mesmo. 8 No entanto, em vez de violar a Segunda Lei da Termodinâmica e permitir que os físicos obtenham 'algo por nada', a máquina demonstra que é necessário um grande esforço de projeto inteligente, manipulação e dispêndio de energia. E o resultado está completamente de acordo com a Segunda Lei!
Mutações benéficas aleatórias são o equivalente biológico do Demônio de Maxwell. Supostamente, elas permitem que a vida colha uma safra de novas informações biológicas baseadas em DNA, capazes de criar toda a grande variedade da vida sem a necessidade de um Criador. A metáfora de Richard Dawkins sobre escalar o Monte Improvável ilustra habilmente o suposto poder dessas mutações "benéficas" geradas aleatoriamente. O Monte Improvável representa o penhasco íngreme da improbabilidade que adaptações complexas (como olhos, reprodução e fotossíntese) impõem a qualquer teoria naturalista da evolução. Esse mestre da manipulação nos levou para a parte de trás do Monte Improvável, onde (segundo ele) havia uma gradação gradual e fácil de mutações "benéficas" aleatórias. Cada uma poderia ser selecionada individualmente, e a vida neodarwinista poderia conquistar até mesmo os picos mais altos da improbabilidade evolutiva em etapas lentas e fáceis. Quando Dawkins escrevia para "o público em geral" para fins de compreensão científica, as evidências moleculares para testar suas afirmações ainda não estavam disponíveis. Mas a era da genômica agora nos permite examinar tais afirmações e avaliar essa premissa fundamental na teoria evolutiva moderna.
Estudos do genoma humano
Atualmente, estudos do genoma humano estão sendo realizados em todo o mundo, e as principais descobertas podem ser resumidas em poucas palavras: acúmulo de mutações e uma infinidade de associações entre mutações e doenças. O Banco de Dados de Mutações de Genes Humanos¹¹ contém registros de mais de 141.000 mutações. Novas mutações são descobertas a uma taxa de mais de 11.000 por ano. Um resumo de setembro de 2012 relatou que, dessas, cerca de 6.000 constituem polimorfismos "associados a doenças" e "funcionais" (diferentes versões de uma sequência de DNA).¹² Observe que a classificação reconhece apenas duas categorias: as mutações são "associadas a doenças" ou são "funcionais". Não há uma categoria denominada "benéficas".
O banco de dados Online Mendelian Inheritance in Man¹³ cataloga todas as mutações conhecidas que são herdadas de maneira mendeliana simples. Seu subtítulo, "Um Catálogo Online de Genes Humanos e Doenças Genéticas", indica seu amplo escopo. Cerca de 6.000 mutações "associadas a doenças" e "funcionais" são conhecidas por serem herdadas dessa forma. Não há nenhuma menção a mutações "benéficas".
Em uma amostra de 179 genomas do Projeto 1000 Genomas, descobriu-se que a pessoa saudável média apresentava cerca de 400 mutações "associadas a doenças" e duas mutações "causadoras de doenças".¹⁴ Não foram relatadas descobertas paralelas para mutações "benéficas". Nos 1092 genomas relatados em outubro de 2012, foram localizadas 38 milhões de alterações de base única, com cada indivíduo apresentando em média 3,6 milhões, 1,4 milhão de "indels" (onde ocorre uma diferença de 1 a 50 bases no número de inserções e/ou deleções) e 14.000 grandes deleções (>50 bases) .¹⁵ De acordo com o HGMD mencionado anteriormente, as grandes deleções (>20 pares de bases) superam as grandes inserções em uma proporção de 5 para 1. Um estudo de genes humanos que contribuem para a inteligência mostra que eles são particularmente vulneráveis a mutações e que todos nós carregamos pelo menos duas ou mais mutações deletérias para nossas capacidades intelectuais e emocionais.¹⁶
Se estivéssemos realmente evoluindo segundo o modelo neodarwiniano, então, entre essas milhões de mutações, deveríamos estar carregando pelo menos algumas mutações associadas a benefícios. Nenhuma foi encontrada. Seria uma notícia realmente bombástica! Nossos genomas estão acumulando mutações deletérias, não benéficas, e estão perdendo DNA mais rápido do que ganhando. Estamos caminhando para a extinção, como Sanford previu, e não para novos patamares evolutivos!
O que dizem os teóricos?
Os teóricos da evolução usam um conceito chamado "paisagem de aptidão" para imaginar possíveis cenários para a ação da seleção natural. Essa paisagem consiste em picos, vales e planícies. Os organismos podem "derivar" ao longo das planícies em qualquer direção, desde que as mudanças mutacionais não sejam significativas o suficiente para que a seleção atue sobre eles. Eles podem cair nos vales acumulando mutações deletérias, mas só podem subir os picos por meio da seleção positiva de mutações benéficas. No entanto, para chegar a conclusões úteis, os teóricos precisam conhecer a "distribuição de efeitos de aptidão" das mutações que ocorrem. Eles precisam saber com que frequência ocorrem mutações grandes e prejudiciais em comparação com aquelas de efeito pequeno ou nulo, e com que frequência ocorrem mutações benéficas de grande efeito em comparação com mutações benéficas de pequeno efeito. Conhecer essas distribuições permite que eles construam modelos matemáticos e realizem experimentos evolutivos que ajudam a explorar a paisagem de aptidão.
Tabela 1. Dados de Fisher sobre mutações que ele apresentou em sua tabela 1.
Completamente recessivo
Intermediário
Dominante
Total
Autossômico
130
9
0
139
Ligado ao sexo
78
4
0
82
Um estudo que abordou a distribuição dos efeitos de mutações deletérias em genes codificadores de proteínas sobre a aptidão humana não teve dificuldade em reunir dados adequados. Seus dados mostraram que mais de 50% das novas mutações provavelmente têm efeitos "leves" (reduzindo a aptidão entre 0,1 e 10%) e menos de 15% das novas mutações provavelmente têm efeitos fortemente deletérios.<sup> 17 </sup> No entanto, em um estudo sobre a distribuição dos efeitos de mutações benéficas sobre a aptidão, o autor não conseguiu encontrar dados adequados e, portanto, foi forçado a estimar a distribuição usando a "teoria dos valores extremos".<sup> 18</sup> Este é um método estatístico para prever a frequência de eventos extremos, como inundações e terremotos, quando se dispõe apenas de uma quantidade limitada de dados. Pode-se ter dados para 100 anos, mas para construir algo como um reator nuclear, é preciso estimar a probabilidade de um evento que ocorre a cada 1.000 ou 10.000 anos acontecer durante sua vida útil. Os detalhes do método são irrelevantes, pois o autor afirma que existe uma convenção estabelecida na genética de simplesmente assumir o que é necessário! Assim, ele assumiu que um alelo selvagem (uma sequência de DNA não mutada) poderia sofrer mutação para "um pequeno número de estados alternativos benéficos". Nenhum dado foi necessário! Mutações "benéficas" são um componente necessário da teoria neodarwinista, portanto, sua existência é simplesmente assumida .
Figura 1. Distribuição exponencial esperada de Fisher dos benefícios da mutação em comparação com a magnitude da mudança mutacional (após a figura 3 em Fisher 1 ).
Essa convenção foi estabelecida por Fisher em seu livro de 1930. Ele não tinha nenhuma evidência de mutações benéficas, então teve que imaginá-las. Uma vez imaginadas, precisou conceber todos os detalhes de sua natureza e cada modo de ação. Os únicos dados que apresentou estão na tabela 1. Todas essas mutações eram conhecidas por seus efeitos deletérios; a maioria era recessiva e nenhuma era dominante. Apenas mutações dominantes e benéficas são úteis para a evolução, então Fisher teve que elaborar uma estratégia para transformar mutações recessivas deletérias em mutações dominantes benéficas. Sendo indiscutivelmente o maior estatístico de todos os tempos, ele não teve muita dificuldade em trilhar um caminho bastante tortuoso para esse fim, e essa é uma história que merece ser contada. Para este artigo, no entanto, focaremos apenas em alguns dos marcos dessa jornada.
Primeiro, ele assumiu que mutações deletérias e benéficas tinham a mesma probabilidade de ocorrer. Isso é uma negação espantosa da verdade que estava diante dele em sua tabela de dados! Em seguida, ele começou a se referir a mutações deletérias como "menos vantajosas" e a mutações benéficas como "mais vantajosas", respectivamente. Assim, com apenas algumas palavras ambíguas cuidadosamente escolhidas, ele criou um cenário de aptidão benéfica onde antes não havia nenhum! Ele então assumiu que a distribuição dos efeitos de aptidão de todas as mutações em comparação com seu tamanho seguiria uma curva exponencial, reproduzida aqui na figura 1.
Figura 2. Separação de mutações deletérias e benéficas da distribuição combinada original de Fisher na figura 1.
Ele imaginou que pequenas mutações teriam uma chance maior de melhorar a aptidão da espécie do que grandes mutações, então a curva é alta à esquerda e diminui em direção a zero à direita à medida que a magnitude da mudança aumenta. A expectativa de Fisher de uma distribuição exponencial permaneceu válida pelos próximos 80 anos.
Para expor sua falácia, precisamos separar as mutações deletérias das benéficas, que ele agrupou na figura 1. Podemos fazer isso copiando a figura 1, invertendo-a horizontalmente e unindo-a à original, como na figura 2. Este é o modelo de Fisher: tanto as mutações deletérias (à esquerda) quanto as benéficas (à direita) têm, em sua maioria, pouco ou nenhum efeito sobre a aptidão, e mutações de grande efeito são cada vez mais raras. A falácia de seu modelo pode então ser vista na figura 3, onde as mutações benéficas foram removidas porque ele não as tinha!
Toda a base da teoria neodarwinista foi construída sobre a noção imaginativa de Fisher de que pequenas mutações deletérias poderiam transformar qualquer forma de vida em qualquer outra.
Figura 3. Fisher só tinha mutações deletérias para trabalhar. A teoria neodarwinista foi construída inteiramente sobre a noção imaginária de que pequenas mutações deletérias poderiam transformar um micróbio em qualquer outra forma de vida!
Por que um acadêmico de renome mundial como Fisher se rebaixaria a tal ponto de autoengano a ponto de negar a realidade de seus próprios dados? Parte da resposta encontra-se na página 53 de seu livro:
“...a menos que abandonemos completamente a concepção evolucionista da modificação das espécies pela substituição ocasional de um gene pelo gene predecessor do qual ele se originou... [a teoria de Darwin] exige que o novo gene bem-sucedido se torne de alguma forma dominante em relação aos seus concorrentes e, se ocorrerem mutações reversas, também em relação ao seu predecessor [ênfase no original].”
O compromisso de Fisher com a evolução o levou a acreditar que mutações benéficas deviam existir e, como não tinha provas de sua existência, teve que inventá-las! Outra parte da resposta encontra-se nos últimos cinco capítulos de seu livro. Eles foram dedicados à eugenia, um tema ao qual ele era profundamente comprometido. Sua visão de mundo pessoal foi a causa de seu autoengano, e ele enganou o mundo.
Vamos agora dar mais detalhes à figura 3 para ilustrar a verdade que Fisher tanto se esforçou para negar. Um resumo dos estudos sobre o genoma humano médio concorda que mutações benéficas não existem!
Figura 4. Distribuição dos efeitos de aptidão das mutações em estudos do genoma humano. O ser humano saudável médio apresenta cerca de 4 milhões de alterações de nucleotídeo único com efeito desconhecido (barra cinza em zero), cerca de 400 alterações associadas a doenças (barra mais escura em -1) e cerca de 2 alterações causadoras de doenças (barra mais escura em -2). A distribuição exponencial esperada (linha tracejada) se ajusta bem, mas observe a escala logarítmica. Não há mutações benéficas conhecidas (nenhum valor positivo à direita de zero).
Objeção! Objeção!
Neste ponto, os darwinistas farão muito alarde sobre inúmeros experimentos que demonstram, sem sombra de dúvida, que algumas mutações podem levar ao aumento da aptidão, tanto em humanos quanto em populações experimentais. Isso certamente é verdade. Um exemplo recente é a descoberta de que uma única alteração de nucleotídeo em tibetanos étnicos (em comparação com chineses Han) permitiu que eles lidassem com os níveis cronicamente baixos de oxigênio que ocorrem no alto planalto tibetano.<sup> 19</sup> Uma página da Wikipédia que lista outros exemplos pode ser encontrada aqui. <sup>20 </sup>
Por que, então, os teóricos da genética não usam esses dados e esses tipos de experimentos para derivar suas distribuições de efeitos de aptidão para mutações benéficas? A resposta a essa pergunta é muito reveladora: a vida é muito mais do que apenas "mutação e seleção natural"! É uma admissão de que a teoria neodarwinista, na verdade, apenas faz ajustes superficiais na vida, não em seus componentes centrais. Esse assunto será abordado com mais detalhes na parte 2 deste artigo.
Antes de prosseguirmos com esta parte, porém, considere o seguinte exemplo. Um dos maiores estudos que buscou mutações benéficas no genoma humano chegou aos seguintes resultados: 27–29% das mutações que alteram aminoácidos são neutras ou quase neutras, 30–42% são moderadamente deletérias e quase todas as restantes (~36%) são altamente deletérias ou letais. 21 Mesmo assim, eles afirmaram que:
“Nossos resultados são consistentes com a hipótese de que 10 a 20% das diferenças de aminoácidos entre humanos e chimpanzés foram fixadas por seleção positiva [ou seja, foram benéficas], sendo o restante das diferenças neutras ou quase neutras.”
Em outras palavras, eles não conseguiram encontrar mutações benéficas ao analisá-las nos dados, mas se assumissem que humanos e chimpanzés evoluíram de um ancestral comum, então poderiam encontrar as evidências. Portanto, foi apenas a suposição da evolução que produziu qualquer evidência de mutações benéficas, exatamente como descobrimos no trabalho de Fisher.
Conclusões
Existem mutações benéficas reais? Elas não estão sendo catalogadas em estudos sistemáticos de genomas humanos, embora exemplos individuais de benefícios tenham sido documentados. Os catálogos contêm apenas categorias de mutações "deletérias" e "funcionais". A teoria genética das mutações benéficas foi criada por R. A. Fisher em 1930, a partir de nada mais do que mutações deletérias e das exigências da evolução. Sua teoria dominou a biologia por mais de 80 anos e é a principal causa do domínio contemporâneo que a evolução neodarwinista exerce sobre a academia, a mídia e até mesmo a igreja. Experimentos recentes finalmente revelaram as características há muito buscadas das mutações benéficas, mas elas não são em nada do que Fisher esperava. Isso será abordado na parte 2 deste artigo.
Agradecimentos
O Dr. Don Batten contribuiu muito com seus comentários sobre a primeira versão deste artigo.
Fisher, RA, A Teoria Genética da Seleção Natural , Oxford University Press, Londres, 1930. Voltar ao texto
Hull, DL, Darwin e seus críticos: a recepção da teoria da evolução de Darwin pela comunidade científica , University of Chicago Press, 1973. Voltar ao texto
A controvérsia sobre a validade dos experimentos de Kettlewell é abordada no Arquivo Kettlewell da Universidade de Oxford, wolfson.ox.ac.uk, 2 de outubro de 2013. Achei esta nota interessante: “Os dados de pesquisa e as anotações experimentais de Kettlewell não foram encontrados. Se alguém souber do paradeiro desses documentos, por favor, informe o bibliotecário do Wolfson College, Oxford.” Voltar ao texto
Noble, D., A fisiologia está abalando os fundamentos da biologia evolutiva, Exp Physiol. 98 (8):1235–1243, 2013 | doi:10.1113/expphysiol.2012.071134. Voltar ao texto
ReMine, WJ, A Mensagem Biótica: Evolução versus Teoria da Mensagem , St Paul Science, St Paul, MN, 1993. Voltar ao texto
Sanford, JC, Entropia Genética e o Mistério do Genoma , 3ª ed., FMS Publications, Nova Iorque, 2008. Voltar ao texto
Sobre a Origem das Espécies , 1ª ed., pp. 489–491, cap. xiv, conclusão, 1859, darwin-online.org.uk, acessado em 9 de julho de 2013. Voltar ao texto
Castelvecchi, D., Como o demônio de Maxwell resfria um gás a temperaturas de microkelvin [Animação], Scientific American , 7 de fevereiro de 2011, scientificamerican.com, acessado em 8 de julho de 2013. Voltar ao texto
Dawkins, R., Escalando o Monte Improvável , Norton, Nova Iorque, 1996. Voltar ao texto
Dawkins foi professor de Compreensão Pública da Ciência na Universidade de Oxford de 1995 a 2008, en.wikipedia.org. Voltar ao texto
Banco de Dados de Mutações de Genes Humanos do Instituto de Genética Médica em Cardiff, hgmd.cf.ac.uk, acessado em 9 de setembro de 2013. Voltar ao texto.
Stenson, PD et al. , O Banco de Dados de Mutações de Genes Humanos (HGMD) e sua exploração nos campos da genômica personalizada e da evolução molecular, Curr Protoc Bioinformatics 39 :1.13.1–1.13.20, 2012 | doi: 10.1002/0471250953.bi0113s39. Voltar ao texto
Herança Mendeliana Online no Homem, omim.org, acessado em 1 de abril de 2013. Voltar ao texto.
Yali Xue et al. , Prevalência de alelos deletérios e associados a doenças em indivíduos saudáveis, The American J. Human Genetics 91 (6):1022–1032, 2012 | doi: http://dx.doi.org/10.1016/j.ajhg.2012.10.015. Voltar ao texto
Consórcio do Projeto 1000 Genomas, Um mapa integrado da variação genética de 1092 genomas humanos, Nature 491 (7422):56–65, 2012 | doi:10.1038/nature11632. Voltar ao texto
Estudo sugere que os humanos estão perdendo, lenta mas seguramente, suas capacidades intelectuais e emocionais, medicalxpress.com, acessado em 8 de julho de 2013. Voltar ao texto
Eyre-Walker, A. et al. , A distribuição dos efeitos de aptidão de novas mutações deletérias de aminoácidos em humanos, Genetics 173 (2):891–900, 2006. Voltar ao texto
Orr, HA, A distribuição dos efeitos de aptidão entre mutações benéficas, Genetics 163 (4):1519–1526, 2003. Retornar ao texto
Yi, X. et al. , Sequenciamento de 50 exomas humanos revela adaptação à altitude elevada, Science 329 (5987):75–78, 2010 | doi:10.1126/science.1190371. Voltar ao texto
Lista de mutações benéficas em humanos, sciphi.wikkii.com, acessado em 16 de setembro de 2013. Voltar ao texto.
Boyko, AR et al. , Avaliando o impacto evolutivo das mutações de aminoácidos no genoma humano, PLoS Genetics 4 (5):e1000083, 2008 | doi: 10.1371/journal.pgen.1000083. Voltar ao texto
Publicado em 01 de fevereiro de 2016 | Atualizado em 08 de abril de 2016
Mutações benéficas são reais, mas não produzem nada de novo, apenas acionam os modos de variação inatos.
iStockphotomodelo de dna
A Parte 1 abordou o papel de R.A. Fisher na fundação da Teoria Neodarwinista (TND), baseada na ideia de que mutações recessivas deletérias poderiam se tornar dominantes e benéficas. Geneticistas ainda hoje utilizam sua distribuição exponencial dos efeitos na aptidão. Os primeiros dados experimentais a testar rigorosamente a teoria de Fisher foram publicados em 2011 e a contradisseram. Isso contribui para um consenso crescente de que a TND está, e sempre esteve, morta. Uma teoria morta nos enganou e agora domina o mundo! Os novos dados podem ser explicados por desenvolvimentos recentes na biologia de sistemas moleculares: a Teoria da Variação Facilitada de Kirschner e Gerhart, a Teoria das Redes Hierárquicas de Regulação Gênica de Eric Davidson, baseada na lógica booleana, e a Teoria dos Baranomas Frontalmente Carregados de Peer Terborg, que vêm com elementos genéticos indutores de variação embutidos. Todas essas teorias se baseiam — seja explicitamente (Kirschner-Gerhart, Terborg) ou implicitamente (Davidson) — em mecanismos modulares de indução de variação que teriam sido incorporados aos tipos originais de vida. Mutações benéficas são reais, mas não produzem nada de novo, apenas acionam os modos de variação preexistentes. A ideia de que erros aleatórios na cópia do DNA poderiam produzir novidades que a seleção natural poderia então aproveitar para explicar toda a vida na Terra é apenas um sonho darwiniano. A realidade está se parecendo cada vez mais com Gênesis 1–11!
A Parte 1 deste artigo abordou parte da história do conceito de "mutação benéfica", incluindo sua ausência em estudos recentes de genoma humano em larga escala. Sem mutações benéficas dominantes para produzir novidades, a teoria neodarwinista (TND) está morta. Mutações benéficas recessivas não são suficientes. J.B.S. Haldane calculou, em 1927, que se uma mutação benéfica recessiva surgisse, ela teria que aparecer repetidamente cerca de 500 vezes antes de se disseminar o suficiente para se fixar em uma população por seleção natural. Somente mutações benéficas dominantes poderiam superar esse problema de seleção.
Mutações em regiões codificadoras de proteínas devem produzir apenas uma diminuição gradual da aptidão à medida que a carga mutacional aumenta.
Em 1930, os melhores dados disponíveis sobre mutações consistiam em uma lista de 500 mutações registradas na mosca-da-fruta Drosophila . Todas eram recessivas e deletérias, e as "novidades" frequentemente monstruosas. Para salvar o darwinismo do esquecimento, o estatístico inglês (e fervoroso eugenista) R.A. Fisher optou por formular uma série de hipóteses segundo as quais mutações recessivas deletérias poderiam "tornar-se" benéficas e dominantes.<sup> 3</sup> Sua distribuição exponencial resultante dos efeitos na aptidão continuou a ser utilizada por geneticistas ao longo do século XX . Uma revisão de 2010 lamentou que "ainda carecemos de dados suficientes para tirar conclusões seguras sobre a distribuição dos efeitos ou a dominância de mutações benéficas". Um ano depois, contudo, o primeiro conjunto de dados adequado finalmente surgiu. Mas contradizia Fisher e confundia seus autores.<sup> 4</sup>
Agora podemos ver que a Teoria do Neodarwinismo (TND) é, e sempre foi, uma teoria morta, pois seu fundamento na genética nunca existiu. Esta não é uma conclusão isolada. Os criacionistas ReMine, 5 Sanford 6 e Williams 7 documentaram inúmeras outras falhas fatais na teoria. Em julho de 2013, o professor emérito de fisiologia de Oxford, Denis Noble, anunciou que “todas as premissas centrais da Síntese Moderna (frequentemente também chamada de Neodarwinismo) foram refutadas”. 8
O que são 'mutações benéficas'?
A natureza das mutações e sua contribuição para a história da vida foram amplamente discutidas na literatura criacionista. 5 , 9 , 10 , 11 , 12 A conclusão geral é exemplificada por esta citação do geneticista de plantas John Sanford:
“ Tudo sobre a verdadeira distribuição das mutações argumenta contra seu possível papel na evolução direta [ênfase no original]” (p. 25). 6
Em contradição com a Teoria da Demência Nuclear (TDN), Sanford demonstrou que nossos genomas sofrem de "entropia genética" — mutações deletérias subletais se acumulam inexoravelmente, levando-nos à extinção iminente. Os evolucionistas citaram diversas mutações que podem ser benéficas em algumas populações sob certas circunstâncias. <sup> 13,14 </sup> Os criacionistas examinaram esses casos <sup>15</sup> e concordam que alguns são plausíveis, mas outros são ambíguos (com potencial para vantagem ou desvantagem) e a maioria envolve perda de informação genética, consistente com a teoria de Sanford (e contrária à TDN). No entanto, nenhum desses exemplos é utilizado por teóricos da genética, pois eles necessitam de grandes conjuntos de dados que demonstrem os efeitos sobre a aptidão de alterações genéticas tanto grandes quanto pequenas.
figura-1
Figura 1. Suposição de Fisher de que as mutações menores têm a maior probabilidade de se tornarem benéficas para a espécie. Mutações com efeitos maiores têm uma probabilidade progressivamente menor de se tornarem benéficas. Redesenhado a partir de Fisher 3 , figura 3, p. 40, com ligeira compressão na escala horizontal.
Para os propósitos deste artigo, a suposição mais importante de Fisher era que apenas as mutações menores teriam probabilidade de se tornarem benéficas.<sup> 16</sup> Aquelas com efeitos progressivamente maiores teriam probabilidade progressivamente menor de se tornarem benéficas. Ele ilustrou essa suposição em sua figura 3, reproduzida aqui na figura 1. A linha tracejada na figura 1 descreve uma curva 'exponencial'. Fisher esperava que a maioria das mutações benéficas tivesse apenas um pequeno efeito e, portanto, surgisse de perto de zero na escala horizontal. Ele precisava de muitas alterações benéficas para que sua teoria funcionasse, de modo que sua frequência máxima também fosse próxima de zero, seguida por frequências decrescentes de mutações com efeitos maiores. Para testar a teoria de Fisher, os geneticistas precisavam de uma distribuição de frequências de mutação variando de efeitos pequenos a grandes. Nenhum dos exemplos citados anteriormente atende a esse critério, nem nenhum dos sequenciamentos em larga escala recentes de genomas humanos, como citado na Parte 1.<sup> 1</sup> Uma patente recente de 'bebê projetado' também não ajuda, pois se refere principalmente à minimização do risco de doenças. Os únicos benefícios potenciais foram a tolerância à lactose e o desempenho muscular (corrida de velocidade versus resistência). 17 Nenhum dos dois fornece um teste para a teoria de Fisher.
Os geneticistas têm outro requisito para dados adequados. Precisam de grandes amostras de mutações benéficas antes que a seleção natural comece a atuar sobre elas, e não depois, como em todos os exemplos citados acima. Um estudo de 2006, que tentou alcançar esse objetivo em experimentos com bactérias, declarou que “a distribuição dos efeitos de aptidão entre as mutações benéficas é indistinguível de… uma distribuição aproximadamente exponencial com muitas mutações de pequeno efeito e poucas de grande efeito” .¹⁸ A teoria de Fisher parecia ser confirmada. No entanto, um estudo de 2009 obteve um resultado ligeiramente mais discriminatório:
figura-2
Figura 2. Distribuição dos efeitos de aptidão de mutações benéficas medidas pela primeira vez (colunas sombreadas, representando 100 mutações em colônias bacterianas). Os teóricos da genética esperavam uma distribuição exponencial (como a linha pontilhada), mas os dados se ajustaram melhor a uma distribuição normal (linha tracejada). (De McDonald et al . 4 figura 1a.)
“De acordo com a teoria de Fisher, os efeitos das mutações benéficas são distribuídos exponencialmente quando a aptidão do tipo selvagem é moderada a alta. No entanto, quando a aptidão do tipo selvagem é baixa, os dados deixam de seguir uma distribuição exponencial, porque muitas mutações benéficas têm grandes efeitos sobre a aptidão. Não existe nenhuma teoria de genética de populações que explique essa tendência para mutações de grandes efeitos [ênfase adicionada].” 19
Os primeiros experimentos para resolver completamente o problema da seleção foram publicados em 2011, e os resultados são mostrados na figura 2. Em vez de se ajustar à distribuição exponencial unilateral de Fisher, produziu uma distribuição normal bilateral.⁴ Esse resultado foi tão “curioso” que levou os autores a declararem que seus experimentos “não eram um teste da teoria existente [isto é, de Fisher]”. Mas “mesmo na ausência de [uma nova] teoria, nossa compreensão detalhada do mapeamento genótipo-fenótipo que sustenta [as mutações benéficas] deveria ser suficiente para tentar explicar a distribuição normal observada”. No entanto, após aplicarem sua “compreensão detalhada”, tiveram que admitir que “não está claro por que as [mutações] deveriam se conformar a uma distribuição normal”.
Comparação entre mutações deletérias e benéficas
Agora que temos alguns 'dados concretos' sobre mutações benéficas que contradizem a distribuição exponencial de Fisher, vale a pena buscar dados igualmente 'concretos' sobre mutações deletérias para compará-los. Isso é especialmente importante considerando que a teorização genética sobre esse assunto ao longo do século XX foi baseada em suposições, não em dados. Por exemplo, a 'Teoria Neutra da Evolução Molecular' de Motoo Kimura se fundamenta no princípio de que a seleção natural é incapaz de detectar os efeitos da maioria das mutações.<sup> 20</sup> Sua teoria, portanto, baseia-se principalmente na ignorância das consequências genéticas, o que é a antítese do que é necessário aqui. Acontece que esse é um problema fundamental em todos os tipos de pesquisa sobre mutações. É extremamente difícil validar experimentalmente as relações de causa e efeito entre mudanças genéticas e consequências fenotípicas. O problema é tão grande que a maioria dos pesquisadores nem se dá ao trabalho de tentar. Eles simplesmente realizam 'estudos de associação genômica ampla' (GWAS) gerados por computador<sup> 21</sup> e depois especulam sobre causas e efeitos.
Mutações deletérias deveriam seguir a curva exponencial de Fisher, visto que poderíamos esperar que variações de um único nucleotídeo, como a ferrugem em uma máquina, causassem deterioração gradual na função de um organismo. De acordo com um modelo desenvolvido pelo físico e teórico da informação Hubert Yockey, as proteínas deveriam tolerar inúmeras substituições entre aminoácidos com propriedades semelhantes antes que a função de toda a molécula fosse prejudicada.²² Ou seja, mutações em regiões codificadoras de proteínas deveriam produzir apenas uma diminuição gradual da aptidão à medida que a carga mutacional aumenta, como Fisher previu. Parece, no entanto, que Fisher e Yockey estavam ambos errados.
figura-3
Figura 3. Distribuições dos efeitos de aptidão para mutações deletérias que alteram aminoácidos em humanos (colunas cinza-escuras à esquerda, representando 47.576 mutações de 35 indivíduos, Boyko et al . 23 tabela 5), comparadas com mutações benéficas (colunas cinza-claras à direita, dados microbianos, figura 2 acima). As linhas tracejadas são as curvas teóricas de melhor ajuste (Gama à esquerda, Normal à direita) e as linhas pontilhadas em ambos os lados são as distribuições exponenciais esperadas de Fisher.
Os resultados do maior estudo sobre os efeitos de mutações que alteram aminoácidos em genomas humanos, corrigidos pelos efeitos da seleção,<sup> 23</sup> são apresentados na figura 3, juntamente com as mutações benéficas da figura 2. Os dados não se assemelham à distribuição exponencial de Fisher (linha pontilhada à esquerda), mas se ajustam bem a uma distribuição gama, como ilustrado pela linha tracejada. Essa curva foi restringida a passar pela frequência zero, em efeito zero, para ilustrar um dos vários modelos testados pelos autores, nos quais as mutações deletérias pertencem a uma classe diferente das mutações neutras.<sup> 24</sup> Ela também foi restringida a passar pela frequência zero, no extremo esquerdo, onde as mutações deletérias se tornam letais.
As curvas exponenciais esperadas por Fisher apresentam o mesmo tamanho para ambos os efeitos porque ele assumiu que ambos ocorriam com igual frequência (em contradição com seus dados).²⁵ Suas curvas não se assemelham em nada às distribuições apresentadas aqui. Esses dois conjuntos de dados descrevem claramente duas classes bastante diferentes de eventos biológicos.
As comparações na figura 3 precisam de alguns ajustes para corrigir a falsa premissa de Fisher de que mutações benéficas e deletérias ocorrem com a mesma frequência. Hoje sabemos que mutações benéficas são muito raras. Se um geneticista moderno corrigisse a premissa errônea de Fisher (como Sanford 6 fez em sua figura 3d), o resultado poderia ser algo semelhante à figura 4.
figura-4
Figura 4. Ilustração da distribuição dos efeitos esperados de aptidão de Fisher para todas as mutações, corrigida para refletir a extrema raridade de mutações benéficas (a pequena cauda à direita do efeito zero).
A curva na figura 4 agora tem um formato estranho, mas isso não é um problema, pois as distribuições estatísticas podem ter muitos formatos e tamanhos diferentes. O ponto importante na figura 4 é que, desde Fisher, os geneticistas esperavam que as mutações benéficas fossem nada mais do que a cauda direita da distribuição dos efeitos de aptidão de todas as mutações. Eles tinham apenas um mecanismo para gerar novidades por meio de mutações benéficas — erros aleatórios de cópia do DNA (ver parte 1) — e era o mesmo mecanismo que gerava mutações deletérias. A distribuição esperada teria um valor máximo em, ou próximo de, zero, com caudas decrescentes em ambos os lados, traçando curvas exponenciais.<sup> 26</sup> O valor máximo próximo de zero significa que pequenas mudanças com pouco ou nenhum efeito são as mais frequentes para ambos os tipos, com mudanças maiores em ambas as direções tornando-se cada vez mais raras.
Os geneticistas não esperavam que mutações benéficas (ou deletérias) produzissem distribuições bicaudais independentes com valores máximos muito distantes do efeito zero na aptidão. Isso significaria que as mutações benéficas surgem de uma classe de processos diferente daquela que produz as mutações deletérias. E é por isso que os novos dados sobre os benefícios causaram tanta consternação — porque eles não tinham uma teoria para explicá-los. Mas os criacionistas conseguem explicá-los por meio de uma combinação de estatística e desenvolvimentos recentes na biologia de sistemas moleculares.
Biologia de sistemas moleculares
A teoria de Fisher foi construída sobre sua visão da hereditariedade centrada nos genes, que teve origem com Mendel e os primeiros geneticistas. Em termos modernos de DNA, sabemos agora que a menor mutação possível é apenas uma alteração de um único nucleotídeo. Para uma bactéria, isso representaria uma diferença de cerca de 0,0001% (1 alteração em um genoma de 1 milhão de nucleotídeos), e para um ser humano, seria uma diferença de cerca de 0,00000003% (1 alteração em um genoma de 3 bilhões de nucleotídeos). É muito provável que essas pequenas alterações tenham um efeito insignificante sobre o organismo.<sup> 27</sup> Também sabemos, por meio do sequenciamento de genomas, que as alterações de um único nucleotídeo são as mais comuns. O Projeto 1000 Genomas, citado na Parte 1, localizou 38 milhões de alterações de um único nucleotídeo, 1,4 milhão de inserções e/ou deleções (uma diferença de 1 a 50 nucleotídeos resultante de inserções e/ou deleções) e 14.000 grandes deleções (>50 nucleotídeos). Esses resultados estão de acordo com a expectativa de Fisher: pequenas alterações são mais comuns, enquanto alterações maiores se tornam cada vez mais raras. Fisher também assumiu que a quantidade de dano causado por uma mutação seria proporcional ao tamanho da alteração (na linguagem atual, o número de nucleotídeos envolvidos), resultando em uma curva exponencialmente decrescente semelhante. Nenhum dos conjuntos de dados na figura 3 corresponde a esse padrão, então algo mais deve estar acontecendo.
Quando o fisiologista Denis Noble anunciou o fim da Teoria da Demência Nuclear (NDT) em 2013, ele defendeu uma nova visão da vida baseada em células, com o genoma sendo apenas um órgão dentro da célula.<sup> 8 </sup> A biologia de sistemas moleculares <sup> 28</sup> e a biologia evolutiva do desenvolvimento (evodevo)<sup> 29</sup> são as disciplinas centrais na construção dessa nova visão da vida. Em um livro pioneiro de 1997, <i> Cells, Embryos, and Evolution: Toward a cellular and developmental understanding of phenotypic variation and evolutionary adaptability</i> (Células, Embriões e Evolução: Rumo a uma compreensão celular e do desenvolvimento da variação fenotípica e da adaptabilidade evolutiva) , o professor de Berkeley, John Gerhart, e o professor de Harvard, Marc Kirschner, delinearam um paradoxo evolutivo que a biologia molecular havia descoberto. Por um lado, há uma extraordinária conservação da estrutura e função molecular nos processos centrais da vida. Todas as células procarióticas têm estrutura e funções metabólicas semelhantes.
Os planos corporais permanecem exatamente os mesmos em todos os filos.
Todas as células eucarióticas possuem estrutura e funções metabólicas semelhantes (antes da especialização).
Todos os animais multicelulares utilizam as mesmas junções e matriz extracelular. Os processos metabólicos são tão altamente conservados que um gene da insulina humana pode ser inserido no genoma de uma bactéria ou levedura, produzindo exatamente a mesma insulina humana. Os planos corporais permanecem exatamente os mesmos em filos inteiros. Por outro lado, existe uma extraordinária diversidade na anatomia, fisiologia e estratégias comportamentais entre as espécies individuais. Como tantas coisas que permanecem iguais podem produzir tantas maneiras de ser diferentes? Kirschner e Gerhart não conseguiram resolver o paradoxo em 1997, mas identificaram isso como um problema grave para os biólogos evolucionistas. A Teoria da Nova Dimensão (NDT) depende inteiramente de erros aleatórios na cópia do DNA para produzir novidades, então eles esperavam encontrar mudanças aleatórias em tudo. Algo estava claramente errado!
Em 2005, Kirschner e Gerhart obtiveram sucesso no que afirmaram ser a primeira teoria abrangente de como a vida funciona em nível molecular: a teoria da variação facilitada . Já analisada anteriormente nesta revista, <sup> 30,31 </sup> ela foi recebida favoravelmente <sup> 32,33 </sup> pela Academia Nacional de Ciências<sup> 34</sup> e recebeu apoio de um estudo de modelagem computacional. <sup>35</sup> Eles identificaram a "ligação regulatória fraca" entre "processos centrais modulares conservados" como a solução para o paradoxo. Compararam os componentes modulares a peças de Lego — individualmente difíceis de quebrar (conservadas), mas fáceis de separar e reorganizar (ligações fracas) para criar diferentes tipos, tamanhos e formas de órgãos e organismos. Além disso, afirmaram que a adaptabilidade, e portanto a "evolutividade", é inata. A variação genética e as mutações não precisam ser criativas; basta que desencadeiem a criatividade inerente ao organismo.<sup> 36</sup> Essa afirmação é uma refutação impressionante do darwinismo, mas os autores não a reconheceram. 37 Uma consequência disso é que mutações exclusivamente benéficas não são mais necessárias, pois todo o potencial de variação em qualquer linhagem específica já está embutido, apenas esperando para ser expresso por meio de uma mudança genética. Uma das conquistas da teoria é que ela fornece um mecanismo pelo qual mutações deletérias podem ter resultados benéficos. Teria o sonho de Fisher se tornado realidade? Kirschner e Gerhart citaram os mecanismos subjacentes às variações de bico nos tentilhões de Galápagos de Darwin como suporte para sua teoria. A Teoria da Deletéria Natural (TDN) exigiria uma longa sequência de mutações ocorrendo independentemente no bico superior e inferior e no sistema craniofacial adjacente, além de muitas gerações de seleção para produzir lentamente mudanças morfológicas e funcionais graduais. Mas pesquisas mostraram que apenas duas mudanças regulatórias modulares são necessárias para explicar a variação natural observada.
A proteína BMP4, responsável pela morfologia óssea , quando expressa precocemente ou tardiamente na embriogênese, causa o desenvolvimento de bicos largos ou estreitos, e quantidades maiores ou menores da proteína reguladora de cálcio calmodulina produzem bicos longos ou curtos. Essas modificações ocorrem por meio de alterações em sistemas regulatórios que, de outra forma, não interferem na maquinaria que constrói as características craniofaciais. 38 Observações de campo confirmam que o tamanho e a forma do bico variam conforme o clima e a disponibilidade de alimentos. 39
Kirschner e Gerhart não especularam sobre a forma da distribuição dos efeitos de aptidão das mutações que sua teoria prevê. No entanto, se inserirmos em sua estrutura a Teoria dos Baranomas Front Loaded de Peer Terborg, que vêm com elementos genéticos indutores de variação (VIGEs) embutidos, ⁴⁰ juntamente com insights recentes sobre redes de regulação gênica, então os criacionistas podem fazer tais previsões.
O genoma regulatório
O sistema de codificação de proteínas no DNA representa apenas cerca de 1,5% do genoma humano. Relatórios recentes do ENCODE mostram que os outros 98,5% são “repletos de elementos funcionais”<sup> 41</sup> e são “transcritos de forma generalizada”. <sup>42</sup> Os pesquisadores afirmaram que o RNA, e não o DNA, deve agora ser identificado como o portador da hereditariedade, e o conceito de “gene” precisa ser revisado para levar em consideração todas as interações regulatórias, incluindo o surgimento do fenótipo que ele produz.<sup> 43</sup> Essa afirmação anuncia uma grande revolução no pensamento biológico — libertando-o do paradigma genocêntrico e inserindo-o firmemente no paradigma célula/organismo defendido por Noble.
A vasta quantidade de RNAs transcritos a partir do DNA não codificante está em grande parte confinada ao núcleo, onde atuam na regulação gênica.<sup> 43</sup> É nesse núcleo que a verdadeira atividade vital acontece. O genoma regulatório , como é conhecido atualmente, consiste em uma complexa rede de Redes de Regulação Gênica (RRGs) em combinações únicas para cada espécie. “As RRGs são compostas por múltiplos subcircuitos, ou seja, as tarefas regulatórias individuais em que um processo pode ser dividido são realizadas por um determinado subcircuito da RRG.”<sup> 44</sup> Isso significa que as RRGs são 'módulos', conforme definido por Kirschner e Gerhart. As RRGs utilizam circuitos lógicos booleanos (operadores AND, OR e NOT) para processar dados biológicos em seus nós ' cis -regulatórios' de maneira exatamente comparável à dos computadores modernos. <sup> 45 </sup> A partir dessas operações booleanas básicas, até mesmo os padrões de comutação mais complexos podem ser produzidos. Os genomas humanos contêm cerca de 8 milhões desses nós regulatórios, 46 portanto, elaborar os diagramas de circuitos para produzir um ser humano — e identificar as diferenças entre humanos e chimpanzés — será uma tarefa gigantesca. Ninguém está sequer realizando a pesquisa necessária para descobrir isso porque experimentos com embriões humanos e de chimpanzés são proibidos.
A ideia de que os genes poderiam ser regulados por circuitos lógicos surgiu em 1969.
A ideia de que os genes poderiam ser regulados por circuitos lógicos surgiu em 1969 com o físico do Projeto Manhattan, Roy Britten, e o biólogo do desenvolvimento Eric Davidson. <sup>47</sup> Eles passaram o resto de suas carreiras estudando as redes regulatórias gênicas (GRNs) no ouriço-do-mar roxo <i> Strongylocentrotus purpuratus</i> . Eles procuraram por sítios de comutação no DNA a montante dos genes que controlam, mediram o curso temporal dos RNAs produzidos a partir desses sítios e, em seguida, compararam-nos com os estágios de desenvolvimento no embrião inicial. Agora eles possuem os diagramas de circuito da GRN que transforma o DNA no embrião inicial.<sup> 48</sup>
Em 2006, Davidson escreveu o primeiro livro didático sobre o assunto. <sup>49</sup> Ele mostrou que as redes regulatórias gênicas (GRNs) operam sob três níveis de controle hierárquico. No nível superior estão os controles do plano corporal, que não toleram mudanças (mutantes morrem). Os controles de segundo nível desenvolvem os sistemas de órgãos e apêndices dentro do plano corporal e são altamente conservados (algumas mudanças podem ser raramente toleradas). Mas os controles de terceiro nível toleram mudanças possivelmente infinitas, e é aqui que Davidson acredita que ocorre a maior parte da variação em nível de espécie e gênero. Isso muda drasticamente o panorama dos efeitos das mutações na aptidão, porque seus efeitos dependerão do nível da hierarquia da GRN em que ocorrem.<sup> 50</sup> A invariância dos planos corporais entre os filos representa um sério desafio para a evolução:
“Uma conclusão importante é que o processo evolutivo que gerou os planos corporais básicos dos eumetazoários foi, em muitos aspectos, muito diferente das mudanças evolutivas que podem ser observadas no nível de espécie em animais modernos [ênfase adicionada].” 51
Em 2011, Davidson ganhou o Prêmio Internacional de Biologia por seu trabalho.
Integrando biologia molecular e estatística
Podemos agora tentar explicar por que as mutações benéficas se ajustam a uma distribuição Normal, por que as mutações deletérias se ajustam a uma distribuição Gama e por que nenhuma delas se ajusta à distribuição exponencial de Fisher. A distribuição exponencial de Fisher é totalmente compreensível dentro de sua visão da vida centrada nos genes, conforme descrito anteriormente, e não explica os dados da figura 3. Sua ideia de que mutações deletérias poderiam se tornar benéficas parece ser justificada pela teoria de Kirschner-Gerhart, mas seu mecanismo é tão radicalmente diferente que constitui uma clara refutação do mecanismo de Fisher. Mutações benéficas que seguem uma distribuição Normal podem ser explicadas pela estrutura modular da vida em nível molecular. A modularidade é reconhecida como fundamental na metáfora dos blocos de Lego de Kirschner e Gerhart, nos circuitos regulatórios gênicos booleanos hierárquicos de Davidson e nos VIGEs de Terborg. Ao contrário de Fisher, nenhum desses autores descreve um papel importante para as variações de nucleotídeo único (SNVs) na história da vida. A informação genética não reside na acumulação de SNVs ao longo do tempo (como pressupõe a NDT); ela reside em sistemas de informação genética , que sempre se apresentam de forma modular. 52
Praticamente tudo dentro de uma célula é modular, pois consiste em grandes macromoléculas, isoladas ou em combinação com uma ou várias outras, para criar máquinas intracelulares. As proteínas também são modulares em sua estrutura, com diferentes módulos desempenhando funções distintas, e cada um geralmente desempenhando a mesma função em diferentes proteínas. Os genes — em sua representação clássica — são modulares, consistindo em vários segmentos distintos de éxons e íntrons. A lógica booleana aponta para resultados discretos (estrutura irregular, abrupta ou gradual) em vez de contínuos (suaves) — os módulos estão presentes ou ausentes; estão ligados ou desligados; e operam em conjunto ou separadamente de outros módulos. Tudo em uma célula saudável tem uma função. As partes usadas são rapidamente desmontadas e os componentes são reciclados com rapidez, de modo que nunca há um grande número de itens pequenos sem efeito significativo na aptidão do organismo. Isso significa que nunca há uma frequência máxima de módulos em ou perto de zero na escala de efeitos na aptidão, como previsto pela teoria de Fisher.
Todas as espécies são capazes de tolerar e se adaptar a um certo grau de variação em suas condições de vida. Um criador inteligente provavelmente produziria VIGEs capazes de conferir um grande aumento à aptidão — em vez de apenas um pequeno — para levar uma espécie de uma "faixa adaptativa" para outra. Terborg listou retrovírus endógenos, sequências de inserção, LINEs, SINEs, microssatélites e transposons entre seus candidatos a VIGEs. Todas essas são sequências multinucleotídicas com tamanhos que variam de alguns a alguns milhares de nucleotídeos. Uma vantagem adaptativa produzida pelo rearranjo de VIGEs em um processo regulatório tem, portanto, maior probabilidade de gerar uma grande mudança benéfica em vez de uma pequena. A distribuição dos efeitos benéficos na aptidão deve, portanto, ter um valor máximo bem acima de zero, como observado.
Em contraste, quando se trata de mutações deletérias que alteram aminoácidos, esses seriam os tipos de eventos que quebram os módulos estruturais ou funcionais baseados em proteínas, em vez de simplesmente reorganizar os circuitos regulatórios. Tal quebra tem maior probabilidade de produzir grandes defeitos deletérios, e não pequenos, como observado na figura 3. A resposta benéfica nos experimentos com bactérias foi uma superprodução de celulose, que permitiu a formação de uma colônia e sua flutuação na superfície do meio líquido. As bactérias foram geneticamente modificadas para que as mutações que desencadeavam a superprodução também ativassem um gene de resistência a antibiótico. As bactérias foram cultivadas em um meio contendo o antibiótico, de modo que apenas os mutantes sobreviveram, enquanto o tipo ancestral não resistente foi eliminado. Dessa forma, os benefícios das mutações puderam ser expostos antes que qualquer seleção para a formação de colônias ocorresse (a seleção que ocorreu foi produzida pelo antibiótico).
Todas as espécies são capazes de tolerar e se adaptar a um certo grau de variação em suas condições de vida.
Existiam 39 vias metabólicas diferentes nas quais uma mutação poderia teoricamente ter produzido o resultado observado, mas, na verdade, ela foi observada em apenas três vias, e em cada uma delas estava em um componente regulatório.<sup> 53</sup> Para verificar outros tipos de mutações, os autores reestruturaram uma forma ancestral da bactéria que não apresentava nenhuma das mutações observadas e descobriram (ao longo de um período um pouco mais longo) que exatamente as mesmas mutações ocorriam repetidamente. Eles concluíram que a 'evolução' que estavam observando não era aleatória, mas sim condicionada pela arquitetura genética preexistente. Esses resultados correspondem exatamente ao que Kirschner e Gerhart propuseram: primeiro, que a regulação gênica é a 'ligação fraca' que permite o rearranjo fácil de módulos funcionais (produção de celulose, formação de colônias) e, segundo, que a arquitetura genética preexistente facilita esse tipo útil de variação!
Note-se que essas mutações não contribuíram com nada de novo para a espécie. Elas apenas ajustaram a maquinaria existente de produção de celulose para alcançar um resultado benéfico. A restrição da "evolução" a mutações em apenas 3 das 39 vias possíveis também coincide com a descoberta de Davidson de que as redes regulatórias gênicas hierárquicas toleram prontamente mudanças apenas em seus circuitos de controle de nível mais baixo. No presente caso, celulose extra suficiente para permitir que a colônia flutuasse tornou-se o ótimo e, portanto, o resultado mais comum, produzindo o pico da distribuição. Algumas mutações podem ter causado um excesso de celulose que poderia ter esgotado os recursos para outras funções, e estas formariam a cauda superior da distribuição. Outras mutações podem ter causado uma falta de celulose, fazendo com que menos bactérias se replicassem e/ou se juntassem à colônia, contribuindo assim para a cauda inferior da distribuição. Mutações que causaram apenas um pequeno excesso de celulose seriam de pouca ajuda na formação da colônia, então provavelmente sobreviveram com frequência praticamente zero, como observado.
Em contraste com a distribuição Normal, a curva da distribuição Gama na Figura 3 nos mostra algo bem diferente. Primeiro, a extremidade esquerda da curva tende a zero frequência, indicando que o dano por mutação além desse ponto é fatal. Não há um limite superior comparável no lado benéfico (extrema direita da curva Normal), pois os benefícios positivos poderiam, teoricamente, se estender muito além do ponto mostrado. O máximo da curva Gama, logo à direita da zona letal, indica que a maioria das mutações que alteram aminoácidos causam danos subletais, mas ainda assim quase fatais — elas interferem significativamente na aptidão reprodutiva. Esses são os tipos de mutações que a seleção natural não consegue eliminar e que se acumulam, como descreve o modelo de Sanford.
Discussão e conclusões
Durante cem anos, os darwinistas depositaram suas esperanças em mutações benéficas como a fonte de novidade que a seleção natural poderia acumular para produzir toda a variedade de vida na Terra. Mas, quando finalmente surgiram, desapareceram tão rapidamente quanto apareceram. Não existe mutação benéfica capaz de produzir algo novo que não existia antes. Não há uma colheita de novidade para a seleção natural colher e, assim, realizar o sonho darwiniano.
A teoria de Fisher — criada para salvar o darwinismo do abandono — é totalmente contradita por esses novos dados. Mutações benéficas não seguem uma distribuição exponencial com valor máximo próximo de zero, como ele esperava. Elas descrevem uma distribuição normal bicaudal com um valor máximo bem acima de zero. De maneira semelhante, mutações deletérias que alteram aminoácidos em humanos também não se encaixam em sua teoria — elas têm um valor máximo bem abaixo de zero.
Todos os exemplos de mutações aparentemente benéficas relatados na literatura podem ser explicados por pequenas alterações em estruturas biológicas preexistentes.
Ambos os resultados podem ser explicados pela modularidade: modularidade na estrutura da vida (os blocos de Lego de Kirschner e Gerhart), modularidade em redes regulatórias de genes (a hierarquia de circuitos lógicos booleanos de Davidson) e mecanismos modulares intrínsecos de indução de variação (os VIGEs de Terborg). Essas novas teorias da biologia de sistemas moleculares são todas fundamentadas, seja explicitamente (Kirschner-Gerhart, Terborg) ou implicitamente (Davidson), na mesma premissa inescapável: a de que a variedade funcional da vida provém de rearranjos modulares do que foi originalmente intrínseco. Ela não provém do que mutações e seleção natural acumularam ao longo do tempo. Cada exemplo de mutação aparentemente benéfica na literatura pode ser explicado por pequenas alterações em estruturas e funções biológicas preexistentes, que foram projetadas para responder dessa maneira ou onde danos a tais mecanismos produzem consequências benéficas. Nada de novo é criado que não existisse anteriormente. A única coisa que a vida acumulou ao longo do tempo é uma carga cada vez maior de mutações deletérias subletais que nos levam à extinção iminente!
A teoria de Fisher evoluiu ao longo do tempo até se tornar a "verdade científica" quase universalmente aceita de que toda a variedade de vida na Terra "evoluiu por meio de mutação e seleção natural". Mas o princípio da entropia genética de Sanford expôs a impotência da seleção natural, e aqui eu expus o erro subjacente ao conceito de mutação benéfica de Fisher. A verdade científica detalhada sobre a história da vida ainda está por ser desvendada, mas estamos dando passos gigantescos nessa direção. O roteiro foi traçado e aponta para longe do grande esquema do sonho darwiniano, direcionando-o diretamente para os capítulos 1 a 11 do Gênesis.
Agradecimentos
O Dr. Don Batten e três revisores anônimos contribuíram muito com comentários sobre versões anteriores deste artigo.
Williams, AR , Mutações benéficas: reais ou imaginárias? – Parte 1 , J. Creation 28 (1):122–127, abril de 2014; creation.com/mutations-part1. Voltar ao texto
Haldane, JBS, Uma Teoria Matemática da Seleção Natural e Artificial, Parte V: Seleção e Mutação, Math Proc Cambridge 23 (7):838–844, 1927 | doi: http://dx.doi.org/10.1017/S0305004100015644. Retornar ao texto
Fisher, RA, A Teoria Genética da Seleção Natural , Oxford University Press, Londres, p. 53, 1930. Voltar ao texto
McDonald, MJ, Cooper, TF, Beaumont, HJE e Rainey, PB, A distribuição dos efeitos de aptidão de novas mutações benéficas em Pseudomonas fluorescens, Biol. Lett. 7 (1):98–100, 2011 | doi: 10.1098/rsbl.2010.0547. Voltar ao texto
ReMine, WJ, A Mensagem Biótica: Evolução versus Teoria da Mensagem , St. Paul Science, MN, caps. 7–9, 1993. Retornar ao texto
Sanford, JC , Entropia Genética e o Mistério do Genoma, 3ª ed., FMS Publications, Nova Iorque, 2008. Voltar ao texto
Williams, A., Decaimento do genoma humano e a origem da vida , J. Creation 28 (1):91–97, abril de 2014; creation.com/human-genome-decay. Voltar ao texto
Noble, D., A fisiologia está abalando os fundamentos da biologia evolutiva, Exp Physiol. 98 (8):1235–43 | doi: 10.1113/expphysiol.2012.071134. Voltar ao texto
Spetner, L., Não por acaso! Desmantelando a teoria moderna da evolução , The Judaica Press, Brooklyn, 1997. Voltar ao texto
Truman, R., O problema da informação para a teoria da evolução: Tom Schneider realmente o resolveu? trueorigin.org, acessado em 21 de janeiro de 2014. Voltar ao texto
Williams, A., Mutações: o motor da evolução torna-se o fim da evolução , J. Creation 22 (2):60–66, agosto de 2008; creation.com/evolutions-end. Voltar ao texto
Carter, RW , As mutações podem criar novas informações? , J. Creation 25 (2):92–98, agosto de 2011; creation.com/new-info. Voltar ao texto
Carroll, SB, Formas Infinitas Mais Belas: A nova ciência da Evo Devo , Norton, Nova York, caps. 8–9, 2005. Voltar ao texto
rationalwiki.org, acessado em 6 de março de 2014; Exemplos de mutações benéficas e seleção natural, gate.net, acessado em 6 de março de 2014. Voltar ao texto
creation.com/search?q=beneficial+mutations . Voltar ao texto
Optei por manter a ênfase de Fisher no "tornar-se" para que os leitores continuem cientes de sua invenção. Voltar ao texto
Wojcicki, A. et al. , Seleção de doadores de gametas com base em cálculos genéticos, Patente dos Estados Unidos nº US 8.543.339 B2, 24 de setembro de 2013. Voltar ao texto
Kassen, R. e Bataillon, T., Distribuição dos efeitos de aptidão entre mutações benéficas antes da seleção em populações experimentais de bactérias, Nature Genetics 38 :484–488, 2006 | doi:10.1038/ng1751. Voltar ao texto
MacLean, RC e Buckling, A., A distribuição dos efeitos de aptidão de mutações benéficas em Pseudomonas aeruginosa, PLoS Genet. 5 (3):e1000406, 2009 | doi:10.1371/journal.pgen.1000406. Voltar ao texto
Kimura, M., A teoria neutra da evolução molecular , Cambridge University Press, 1983. Voltar ao texto
A política de GWAS dos Institutos Nacionais de Saúde ilustra esse ponto, gds.nih.gov, acessado em 26 de fevereiro de 2014. Voltar ao texto
Yockey, HP, Teoria da Informação, Evolução e a Origem da Vida , Cambridge University Press, cap. 6, 2005. Voltar ao texto
Boyko, AR et al. , Avaliando o impacto evolutivo de mutações de aminoácidos no genoma humano, PLoS Genetics 4 (5):e1000083, 2008 | doi: 10.1371/journal.pgen.1000083. A Figura 3 é baseada nas quatro categorias de efeitos de aptidão relatadas em sua tabela 5: s < 0,00001, 0,00001 < s < 0,0001, 0,0001 < s < 0,001, 0,01 < s, onde s é o coeficiente de seleção e s = 1 significa letal, s = 0 significa neutro. Voltar ao texto
Diversos autores sugeriram que pode não haver mutações verdadeiramente neutras. Uma possível explicação para mutações aparentemente neutras é a redundância genética. Veja Terborg, P., Evidence for the design of life: part 1—genetic redundancy , J. Creation 22 (3):79–84, dezembro de 2008; creation.com/baranomes-design. Voltar ao texto
Os dados de Fisher foram apresentados em sua tabela 1, p. 51, e sua suposição de frequência igual nas páginas 18–19 e 38–39. As curvas de Fisher na figura 3 têm valores máximos maiores que as demais porque a área sob todas as curvas reflete as proporções de mutações que estão sendo comparadas e precisa ser aproximadamente comparável. Voltar ao texto
Diversas modificações na forma exponencial foram feitas por autores mais recentes, mas todas ainda se qualificam como 'semelhantes a exponenciais', com um máximo próximo de zero. Voltar ao texto
Algumas doenças muito raras são causadas por uma alteração de um único nucleotídeo. Voltar ao texto
Biologia de sistemas moleculares, msb.embopress.org, acessado em 10 de setembro de 2013. Voltar ao texto
evodevojournal.com, acessado em 26 de fevereiro de 2014. Voltar ao texto
Williams, A., Variação facilitada: um novo paradigma emerge na biologia , J. Creation 22 (1):85–92, abril de 2008. Voltar ao texto
Lightner, JK , Projetado para habitar a Terra: Uma resenha de A Plausibilidade da Vida : Resolvendo o Dilema de Darwin, de Marc W. Kirschner e John C. Gerhart, Yale University Press, New Haven, CT, 2005, J. Creation 22 (1):33–36, abril de 2008. Retornar ao texto
Avise, JC e Ayala, FJ, À luz da evolução I: Adaptação e design complexo, PNAS 104 (Supl. 1):8563–8566, 2007 | doi: 10.1073/pnas.0702066104. Voltar ao texto
Wilkins, AS, Entre 'design' e 'bricolagem': Redes genéticas, níveis de seleção e evolução adaptativa, PNAS 104 (Supl. 1):8590–8596, 2007 | doi: 10.1073/pnas.0701044104. Voltar ao texto
Gerhart, J., e Kirschner, M., A teoria da variação facilitada, PNAS 104 (Supl. 1):8582–8589, 2007 | doi: 10.1073/pnas.0701035104. Voltar ao texto
Parter, M., Kashtan, N. e Alon, U., Variação facilitada: como a evolução aprende com ambientes passados para generalizar para novos ambientes, PLoS Computational Biology 4 (11):e1000206, 2008 | doi:10.1371/journal.pcbi.1000206. Voltar ao texto
Kirschner, MW e Gerhart, JC, A plausibilidade da vida: resolvendo o dilema de Darwin , Yale University Press, p. 227, 2005. Voltar ao texto
Suspeito que seja por isso que a teoria — embora baseada em evidências sólidas, proposta por cientistas tão eminentes e bem recebida nos mais altos escalões da comunidade científica — tenha sido tão amplamente ignorada desde então .
Kirschner e Gerhart, ref. 34, pp. 230–236. Voltar ao texto
Grant, PR e Grant, BR, Como e por que as espécies se multiplicam: a radiação dos tentilhões de Darwin , Princeton University Press, 2008. Voltar ao texto
Terborg, P., Evidências do projeto da vida: parte 2 — Baranomas , J. Creation 22 (3):68–76, dezembro de 2008. Terborg, P., Evidências do projeto da vida: parte 3 — uma introdução aos elementos genéticos indutores de variação , J. Creation 23 (1):99–106, abril de 2009. Voltar ao texto
Sanyal, A. et al. , O panorama de interação de longo alcance dos promotores de genes, Nature 489 (7414):109–115, 2012 | doi:10.1038/nature11279. Voltar ao texto
Venters, BJ e Pugh, BF, Organização genômica de complexos de iniciação da transcrição humana, Nature 502 (7469):53–58, 2013 | doi:10.1038/nature12535. Voltar ao texto
Djebali, S. et al. , Panorama da transcrição em células humanas, Nature 489 (7414):101–108, 2012 | doi:10.1038/nature11233. Voltar ao texto
Davidson, EH, Propriedades emergentes de redes regulatórias de genes animais, Nature 468 (7326):911–20, 2010 | doi:10.1038/nature09645. Voltar ao texto
Istrail, S., De-Leon, SB e Davidson, EH, O genoma regulatório e o computador, Biologia do Desenvolvimento 310 (2):187–195, 2007. Voltar ao texto
Neph, S. et al. , Um léxico regulatório humano expansivo codificado em pegadas de fatores de transcrição, Nature 489 (7414):83–90, 2012 | doi: 10.1038/nature11212. Voltar ao texto
Britten, RJ e Davidson, EH, Regulação gênica em células superiores: uma teoria, Science 165 (3891):349–357, 1969. Retornar ao texto
Laboratório Davidson, Resumo Geral da Pesquisa, its.caltech.edu, acessado em 20 de novembro de 2013. Voltar ao texto
Davidson, EH, O Genoma Regulatório: Redes Regulatórias de Genes no Desenvolvimento e na Evolução , Academic Press, San Diego, CA, 2006. Voltar ao texto
Erwin, DH e Davidson, EH, A evolução de redes hierárquicas de regulação gênica, Nature Reviews Genetics 10 (2):141–148, 2009 | doi:10.1038/nrg2499. Voltar ao texto
Davidson, EH e Erwin, DH, Uma visão integrada da evolução dos eumetazoários pré-cambrianos, Cold Spring Harbour Symposium on Quantitative Biology 74 :65–80, 2009 | doi: 10.1101/sqb.2009.74.042. Voltar ao texto
Truman, R., Teoria da informação—parte 3: introdução aos Sistemas de Informação Codificados , J. Creation 26 (3):115–119, dezembro de 2012. Voltar ao texto
McDonald, MJ et al. , Divergência adaptativa em populações experimentais de Pseudomonas fluorescens . IV. Restrições genéticas guiam trajetórias evolutivas em uma radiação adaptativa paralela, Genetics 183 (3):1041–1053, 2009 | doi: 10.1534/genetics.109.107110. Voltar ao texto
Artigos relacionados
Genética: não é amiga da evolução.
O Enigma
As mutações podem criar novas informações?
O trem da evolução está chegando.
Mutações benéficas: reais ou imaginárias?—parte 1
Redes regulatórias de genes em desenvolvimento — um obstáculo intransponível para a evolução
Degradação do genoma humano e a origem da vida
O periquito mutante 'espanador'
Mutações benéficas
Mutações: o motor da evolução torna-se o fim da evolução!
Um artigo recente da revista científica New Scientist 1 reflete sobre um enigma supreendente para os evolucionistas—os ‘fósseis vivos’. Estas’são criaturas que ainda vivem hoje, mas que’são idênticas a fósseis do mesmo formato, os quais acredita-se terem vivido ‘há milhões de anos’. Alguns exemplos incluem o peixe Celacanto (os evolucionistas crêem que os fósseis dos celacantos tenham 340 milhões de anos 2), as árvores Gingko (125 milhões de anos), crocodilos (140 milhões de anos), carangueijos de ferradura (200 milhões de anos), a concha Lingula (450 milhões de anos), moluscos Neopilina (500 milhões de anos), e o lagarto tuatara (200 milhões de anos).
O dilema para a evolução é o seguinte: ‘Por que estas formas de vida’têm permanecido iguais por tantos anos?’ A revista científicaNew Scientist cita vários evolucionistas que dizem que ‘acaso’ e ‘sorte’ é a resposta. Não estando satisfeitos com isto, outros evolucionistas buscaram explicações alternativas. Eles crêem que a barata (suposta por ter sobrevivido 250 milhões de anos) demonstra que a chave para o sucesso é: ‘ser abundante e viver em todos os lugares’,1 isto é, ser um oportunista e generalista que não se importa com a comida e nem com o ambiente. Porém, muitos dos ‘fósseis vivos’ são muito especializados, tal como o celacanto, que está perfeitamente adaptado para viver em cavernas nas profundidades do oceano. A revista New Scientist sugere que o celacanto tem se mantido estável porque seu ambiente não se modificou. Mas, isto se aplica a muitas outras espécies vivas e extintas.
Alguns evolucionistas pensam que, se necessitar muitos anos (como pelo menos 15 anos para a tuatara) para a reprodução da próxima geração de um organismo, isto se torna sua ‘camisa de força’, porque ‘retarda o processo de evolução’ de fósseis viventes. No entanto, isto não se aplica ao caso das baratas e arqueobactérias, que se reproduzem rapidamente (a bactéria multiplicando-se em minutos, sendo que os evolucionaistas ainda acreditam que tenha estado na Terra por 3,5 milhões de anos.).
Lutando para que este dilema faça sentido, a zoóloga, autora deste artigo, diz que ‘alguns biólogos se maravilham de que ainda haja evolução, considerando as possibilidades decadentes de mudanças’. Ela cita um paleontólogo da universidade de Yale dizendo que ‘os organismos’são’tão complexos que é muito difícil mudar um aspecto sem prejudicar o resto’.1
O artigo da revista New Scientist não resolve o dilema: ‘Deixa uma cena complicada … Ser generalizado ou especializado. Viver rápido ou lentamente. Manter-se simples ou não. Estar no lugar certo no momento certo. Se tudo mais falha, tentar tornar-se uma “super-espécie”, abençoada com uma fisiologia que pode superar tudo.’ 3
Porém, para o Cristão, não deveria haver um mistério sobre os assim nomeados ‘fósseis vivos’. Temos o testemunho ocular (a Palavra de Deus) que explica como foram criadas estas criaturas para serem frutíferas e para multiplicar-se seguindo seu tipo. Então, o fato de que as criaturas modernas ‘tem permanecido iguais’ aos seus ancestrais fossilizados, não é uma surpresa para nós. (E sabemos através da Bíblia que eles foram criados há milhares de anos, e não milhões.)
Então, por que os evolucionistas insistem em suas amadas teorias de idades longas, apesar de existirem inconsistências paradoxiais e outras evidências do contrário? Como disse um evolucionista, eles (os evolucionistas) são comprometidos com as explicações materialistas (por exemplo a de excluir a Deus) … ‘não importa o quanto contra-intuitivo, nem o quanto místico … porque nós não podemos permitir que um Pé Divino entre pela porta’. 4
Referências e notas
Dicks, L., The creatures time forgot, (As Criaturas que o tempo esqueceu) New Scientist, 164(2209):36–39, 1999. Regresar ao texto.
Acreditava-se que eram extintos há 70 milhões de anos. Regresar ao texto.
Note que uma teoria que é compatível com possibilidades que’são’tão diametricamente opostas não pode fazer previsões, e é imune à falsificação. Então, ela não se encaixa no critério que os evolucionistas geralmente utilizam quando é vantajoso para eles. Regresar ao texto.
Lewontin, R., ‘Billions and billions of demons’ (Bilhões e bilhões de demônios), The New York Review, 9 January 1997, p. 31. Regresar ao texto.
A Aurora Borealis (aurora boreal). É causada por partículas carregadas vindas do espaço, notáveis da atmosfera terrestre. Estas partículas foram desviadas para os pólos pela presença do campo magnético da terra (que também desvia muitas dessas partículas inofensivas para o espaço).
O decaimento do campo magnético da Terra é uma prova poderosacontra o dogma anti-bíblico de milhões ou bilhões de anos. Um aspecto importante do modelo físico são as rápidas inversões de campo durante o dilúvio, seguido de oscilações amortecidas por um tempo. Isto foi previsto pela primeira vez pelo Dr. Russell Humphreys, e a força motriz era as convulsões relacionadas a placas tectônicascatastróficas conforme o modelo bem-suportado do Dr John Baumgardner. Essa previsão foi justificada por descobertas de finas camadas de lava que devem ter se solidificado em dias, mas registrou o campo magnético da terra mudando continuamente como as diferentes partes que esfriaram. Tudo isto é explicado em O campo magnético da Terra: a evidência de que a Terra é jovem.
No entanto, um correspondente nos perguntou sobre um artigo recente, onde um dos autores dos trabalhos seculares sobre inversões de campo rápidos se retratou. Dr Humphreys responde, explicando que a retratação é muito suspeita.
Prezado CMI,
Em primeiro lugar, deixe-me agradecer-lhes por sua maravilhosa coleção de artigos excelentes, de fortalecimento da fé. Eu tenho lido muitos sobre as reversões magnéticas rápidas. Muitos se referem ao artigo do Dr. Russell Humphreys Mecanismo Físico para a Reversão do Campo Magnético da Terra Durante o Dilúvio e modelo do Dr. Baumgardner de Placas Tectônicas Catastróficas. Em seu artigo, o Dr. Humphreys parece contar, também com artigos de Coe e Prévot das rápidas reversões da Montanha Steen. Isto tem sido ótimo para uma discussão que eu estou envolvido. Ao fazer uma leitura mais adicional me deparei com um [artigo de Coe¹] com um destaque, "O caso de mudança de campo extraordinariamente rápido na Montanha Steen é agora insustentável." Como é que isso afeta as obras dos Drs Humphreys e Baumgardner?
Obrigado pela pergunta. A resposta rápida é que Coe et al. não tem muito boas razões experimentais para retrair. Só para comparar a situação a algo familiar, suponho Mary Schweitzer que de repente usou uma maneira nova e não-bem-testada de analisar material mole de dinossauro e anunciou que o novo método mostra que não houve material macio, e então agora ela se arrepende de sua chutzpah² em saco e cinza? Isso lhe dará o sabor deste mais novo artigo Coe para mim.
Em seguida, observe que Michel Prévot não é um dos autores, nem é Pierre Camps. Ambos esses foram co-autores com Coe em documentos marcantes anteriores sobre este tema. Coe tem estado sob enorme pressão para retrair nas duas últimas décadas, e se fosse para ser aceito novamente dentro do aprisco, então seus alunos de graduação e pós-docs não iriam ser vistos com desconfiança quando procurarem emprego. Eu acho que ele ficaria enormemente aliviado ao encontrar uma desculpa legítima-aparecendo para se retrair.
No papel, Coe abandona a técnica passo-aquecimento (muito bem testada e invocada desde os anos 1940) que ele tinha usado: medindo a perda de uma amostra de magnetização como alguém leva lentamente através de uma série de pequenos passos de temperatura. Ele também abandona a desmagnetização de campo-alternado (não é tão confiável, mas ainda amplamente utilizado).
Em vez disso, ele usa uma técnica relativamente nova: aquecimento rápido e contínuo de uma amostra a 40 graus Celsius por minuto, medindo a desmagnetização continuamente. Ele inventa um cenário questionável, "alteração térmica", que eu não acho que seria aplicável ao basalto ordinário bem abaixo do seu ponto de fusão. A técnica rápido-aquecimento supostamente dá menos tempo para a alteração térmica. A nova técnica põe em questão os resultados anteriores, a mudança constante de direção magnética, de cerca de 60 graus, para amostras indo cada vez mais fundo no interior da laje de basalto. Se o novo método é certo, possam pôr em causa a pena de quase 75 anos de conclusões paleomagnéticas baseadas no método passo-aquecimento.
Como o campo magnético da Terra mudou. A intensidade não poderia ter sido muito maior do que o ponto de partida mostrada, indicando uma idade jovem.
No método passo-aquecimento normal, o experimentador espera durante alguns minutos a cada temperatura para a amostra ficar desmagnetizada. Isto enfatiza os grãos maiores de material magnético que são (a) mais lentos para mudar sua magnetização a temperaturas elevadas e (b) não eram susceptíveis de alterar a sua magnetização após o basalto resfriado. Mas no método contínuo de aquecimento rápido, os grãos têm apenas alguns segundos a mudar a sua magnetização a cada temperatura. Isso tende a enfatizar grãos menores que podem mudar magnetização facilmente ... e são, portanto, mais susceptíveis de terem sido re-magnetizados por milhares de anos de campo magnético normal da terra após as rochas se tornarem frias.
Assim, o método antigo olha para um conjunto magneticamente mais robusto, "rígido" de grãos, mas o novo método olha para grãos menores magneticamente 'moles'. O método antigo não seria muito influenciado pelos menores, grãos "mais flexíveis", por isso deve ser uma forma muito mais confiável para se determinar o campo magnético da terra, enquanto o basalto foi esfriando abaixo de sua temperatura Curie, cerca de 500 ° C. Se os especialistas paleomagnéticos seculares não estavam tão ansiosos para descartar os resultados anteriores de Coe, acho que não estariam tão ansiosos para confiar neste novo método.
Novos artigos dão provas de que a última transição magnética da polaridade (durante ou pouco antes da Idade do Gelo, a partir revertida ao normal) sobre a Terra era muito rápida, provavelmente tendo menos de poucos meses. Se você pode ignorar a campanha publicitária sobre possível futuro campo rápido inversão, um artigo de pop-ciência sobre isso foi intitulado, "O campo magnético da Terra poderia inverter dentro de uma vida humana".³ Isto foi baseado em um documento técnico, 'Mudança direcional extremamente rápida durante Matuyama-Brunhes de polaridade de reversão geomagnética'. 4
Esses pesquisadores paleomagnéticos olharam para Idade do Gelo no lago de sedimentos do leito na Itália e descobriram que a última inversão do campo magnético ocorreu dentro de uma sub-camada de apenas 2 cm de espessura. Usando a datação argônio-argônio, eles pensaram que toda a camada foi estabelecida em cerca de 0,2 mm por ano, o que é bastante lento em comparação com sedimentos do lago hoje. Isso faria com que a transição ocorrer em menos de 100 anos, que ainda é super rápida em comparação com os tempos de transição geralmente-assumidos, de centenas de milhares de anos a milhões de anos.
No entanto, se uma é responsável por decaimento nuclear acelerado sumindo (mas ainda significativo) no período após o dilúvio, então a taxa de deposição de sedimentos poderia facilmente tornar-se mais como 4 cm / ano, uma taxa bastante razoável durante a tempestuosa Era do Gelo. Isso reduziria o tempo de transição para apenas alguns meses. Isso se compara muito bem com a evidência que temos para a reversões rápidas nos últimos estágios do dilúvio de Gênesis. Suporta o quadro geral que temos de muitas inversões rápidas durante o dilúvio de Gênesis. Isso provoca o colapso da escala de tempo paleomagnético de 'Mega-anos' cair para meses.
Quanto à especulação do escritor pop-ciência de que o presente decaimento do campo magnético da Terra está se movendo em direção a uma futura reversão rápida ... Eu sinto muito em dizer que o fluido no núcleo da Terra está se movendo muito mais lentamente agora do que provavelmente era logo após o dilúvio de Gênesis. Tudo indica que o decaimento, hoje, é a perda de potência simples na (turbulento) resistência elétrica do (turbulento mas lento) fluido núcleo. Veja meu artigo 'Teorias Dínamos Magnéticas Planetárias: Um Século de Fracasso' nos 2.013 processos do TPI. 5
Decaimentos resistivos velhos chatos não fazem manchetes emocionantes, mas inversões passadas rápidas!
Espero que isto seja útil,
Russ Humphreys
Referências e notas
Coe R.S. et al., Desaparecimento da hipótese rápido-mudança-campo em Steens Mountain: O papel crucial da desmagnetização térmica contínua, Earth and Planetary Science Letters400:302–312, 15 August 2014; sciencedirect.com.
Chutzpah (Yiddish; Hebraico חֻצְפָּה) é um termo depreciativo judaico para uma audácia inacreditável, falta de remorso, e arrogância por algum mau comportamento. Uma ilustração comum é um homem que mata seu pai e mãe, então, pede simpatia, porque ele é agora um órfão.—Ed.
Science Daily, sciencedaily.com, 14 October 2014;Resumo: "A última reversão magnética da Terra ocorreu 786.000 anos atrás e aconteceu muito rápida, em menos de 100 anos - aproximadamente uma vida humana. A rápida inversão, muito mais rápida do que os milhares de anos que a maioria dos geólogos pensavam, vem como novas medições mostram o campo magnético do planeta está enfraquecendo 10 vezes mais rápido do que o normal e pode cair a zero em alguns milhares de anos ".
Sagnotti, L. et al., Extremely rapid directional change during Matuyama-Brunhes geomagnetic polarity reversal, Geophysical Journal International199(2):1110–1124, November 2014 | doi: 10.1093/gji/ggu287.
Humphreys, R., Planetary magnetic dynamo theories: A century of failure, 7th ICC, 2013; creationicc.org. Resumo: "Por quase um século, os geocientistas que acreditam que a Terra tem bilhões de anos de idade têm se esforçado para desenvolver uma teoria 'dínamo' bem sucedida para explicar como o campo magnético da Terra pode manter-se ao longo desse tempo. Depois de rever as teorias analíticas, simulações de computador, e experimentos de laboratório, cheguei à conclusão de que todos os esforços têm ficado aquém de provar o campo geomagnético poder ser mantido por um dínamo. Para contrastar com este aparente fracasso, de me debrucei sobre o notável sucesso de teorias criacionistas para explicar os campos magnéticos em nosso sistema solar, especialmente o planeta Mercúrio. Esse contraste suporta a pouca idade bíblica do mundo, cerca de 6.000 anos ".
Criacionistas sempre tiveram um profundo interesse no magnífico Grand Canyon. Os visitantes a esta maravilha impressionante do mundo natural, bem como os estudantes da oitava série de ciências da Terra, têm sido tradicionalmente ensinados que ele se formou lentamente. Dizia-se que o rio Colorado, assim como o vemos hoje, foi esculpido neste imenso desfiladeiro ao longo de dezenas de milhões de anos.
Nos últimos anos, os cientistas da Terra têm cada vez mais rejeitado esta ideia. Embora eles ainda falem em termos de milhões de anos, eles consideram que grandes volumes de água, ocasionalmente, correndo através da área desempenharam um papel muito maior esculpindo o desfiladeiro. Geólogos criacionistas concordam que água corrente formou o Grand Canyon. Alguns sugerem que era água do dilúvio de Noé à medida que fluíram ao largo do continente (Gênesis 8: 3). Outros sugerem que foi uma catástrofe regional de pós-Dilúvio causada quando uma enorme massa de água interior, que sobrou do Dilúvio (e excessiva precipitação pós-Dilúvio), de repente, violou os seus apoios naturais e correu para o mar.
A ideia de que desfiladeiros invariavelmente levam vastas eras para se formarem é, infelizmente, muito firmemente cimentada na mente do público. Ainda hoje, a maioria dos alunos da escola são, lamentavelmente, ainda ensinados ao modelo mais antigo, de longa idade de formação para o Grand Canyon, por exemplo.
Verificação da Realidade
Deixe-me apresentar-lhe Burlingame Canyon perto de Walla Walla, Washington, uma analogia de pequena escala para Grand Canyon, que foi observada a se formar em menos de seis dias. Mede 450 m (1.500 pés) de comprimento, até 35 m (120 pés) de profundidade, e, novamente, como largura, de enrolamento através de uma encosta.
Em 1904, o Distrito de Gardena Farming construiu uma série de canais de irrigação para fornecer água a esta área de alto deserto normalmente bastante árida. Em março de 1926, os ventos coletadas pelos tumbleweeds em uma constrição concreto ao longo de um dos canais situados em uma mesa (plataforma em cima de uma região montanhosa) elevada, sufocando o fluxo de água, que em 2 m3 (80 pés cúbicos) por segundo foi invulgarmente elevado devido a chuvas de primavera. Para limpar a obstrução, os engenheiros desviaram o fluxo em uma vala de desvio que conduz à vizinha Pine Creek. Antes disso, a vala era bastante pequena, em nenhum local superior a 3 m (10 pés) de profundidade e 1,8 m (6 pés) de largura, e muitas vezes com sem água de todo
Uma pequena vala de drenagem, como a foto (no topo da página), se transformou no desfiladeiro impressionante, bem mais de 30 m (100 pés) de profundidade, mostrados nas três outras imagens. Camadas evidentes nestas fotos revelaram como inundações cortam o chão.
O anormalmente elevado fluxo aglomerado na vala e querenado juntamente até que em cascata abaixo da mesa em uma cachoeira impressionante. De repente, sob esta pressão extrema e velocidade, o estrato subjacente cedeu e erosão remontante começou de fato. O que antes era uma vala insignificante tornou-se um barranco. O barranco tornou-se uma ravina. A ravina se tornou um o Grand Canyon em miniatura.
Os estratos erodidos consistiam de areia bastante suave e argila, que estava saturado pelas recentes chuvas. A desidratação dos sedimentos saturados na vala, atualmente aberto aumentou a erosão. A água que se move rapidamente poderia desalojar as partículas e levá-las a jusante, deixando sedimentos subjacentes vulneráveis a uma maior erosão. No total, estes seis dias de fugitiva erosão a vala removeu cerca de 150.000 m3 (cinco milhões de pés cúbicos) de lodo, areia e rocha.
Sim, desfiladeiros (canyons) podem se formar rapidamente. Um bom lema a lembrar é: "Isso ou leva um pouco de água e um longo período de tempo, ou um monte de água e um curto período de tempo." Mas então, nunca vimos um desfiladeiro se formar lentamente com apenas um pouco de água. Sempre que as observações científicas são feitas, é um monte de água e um curto período de tempo.
O big bang (grande explosão) é normalmente definido como um evento que se originou aleatoriamente, ao acaso. Alguma instabilidade supostamente se desenvolveu em um "núcleo" original com enorme quantidade de energia, e o universo então se expandiu. Entretanto, as Escrituras claramente excluem tal origem acidental. Uma visão modificada da teoria do big bang diz que quando o evento explosivo ocorreu, ele foi direcionado por Deus. Essa é chamada de evolução teísta e é uma tentativa de conciliar a Bíblia com teorias evolutivas de longa data.
O big bang como é entendido hoje é uma teoria inadequada. Há muitos problemas fundamentais que raramente são mencionados na literatura popular. Alguns dos “elos perdidos” na teoria são:
Origem Perdida: A teoria do big bang supõe uma concentração original de energia. De onde veio essa energia? Os astrônomos algumas vezes falam de uma origem a partir de uma "flutuação mecânica quântica dentro de um vácuo." No entanto, na teoria do big bang, não existia nenhum vácuo antes da explosão. De fato, não há nenhuma teoria secular consistente para a origem, desde que cada idéia é baseada na preexistência de matéria ou energia.
Detonador Perdido: O que acendeu a grande explosão? A concentração de massa proposta nessa teoria iria permanecer unida para sempre como um buraco negro universal. A gravidade iria impedi-la de se expandir ao redor.
Formação dos Astros Perdida: Nenhum modo natural foi encontrado para explicar a formação dos planetas, estrelas e galáxias. Uma explosão teria produzido, na melhor das hipóteses, uma pulverização de gás e radiação para o exterior. Este gás deveria continuar se expandindo, e não formar intrincados planetas, estrelas e galáxias inteiras.
Antimatéria Perdida: Algumas versões da teoria do big bang requerem igual produção de matéria e antimatéria. Contudo, apenas pequenos traços de antimatéria - positrons e antiprótons, por exemplo - são encontrados no espaço.
Tempo Perdido: Alguns experimentos indicam que o universo pode ser jovem, da ordem de 10.000 anos de idade. Se for verdade, então não há tempo suficiente para o desdobramento das conseqüências da teoria do big bang. Um curto espaço de tempo não levará em conta a evolução gradual das estrelas ou da vida na Terra.
Massa Perdida: Muitos cientistas assumem que o universo eventualmente irá parar de se expandir e começar a se contrair novamente. Então ele irá novamente explodir e repetir seu tipo oscilatório de movimento perpétuo. Esta idéia é um esforço para escapar de uma origem e um destino para o universo. Para que a oscilação ocorra, entretanto, o universo deve ter uma certa densidade ou distribuição de massa. Até agora, medições da densidade da massa são 100 vezes menores do que o esperado. De fato há indicações de que o universo estáacelerando para fora em vez de diminuir a velocidade. O universo não parece estar oscilando. A massa necessária ou “matéria escura” está “desaparecida.”
Vida Perdida: Em um universo em evolução, a vida deveria ter se desenvolvido em toda parte. O espaço deveria estar cheio de sinais de rádio de formas de vida inteligentes. Onde estão todos?
Neutrinos Perdidos: Essas pequenas partículas deveriam inundar a Terra a partir do processo de fusão do Sol. O pequeno número detectado levanta questões acerca da fonte de energia do Sol e do entendimento global do homem sobre o universo. Como então a ciência pode falar com alguma autoridade sobre as “origens”?
Ela é rejeitada por muitos criacionistas por sua divergência com a ordem dos eventos em Gênesis. O quadro seguinte compara algumas das divergências cronológicas entre a narrativa bíblica e a teoria do big bang.
Os Criacionistas sustentam que no princípio Deus falou e a Terra surgiu—ele ordenou e os céus se firmaram (Sl. 33:9)! Todas as milhares de estrelas apareceram repentinamente e sobrenaturalmente no espaço. As Escrituras não indicam uma explosão, embora o universo deva ter experimentado uma entrada repentina, “explosiva” de energia ordenada. Talvez alguns dados astronômicos que pareçam apoiar a teoria do big bang, tais como radiações infravermelhas e residuais, precisem, pelo contrário, ser encarados como evidências de uma criação rápida. Uma primeira variação secular da teoria do big bang fazia referência a um big bang "inflacionário", sugerindo que o universo teria se desenvolvido e amadurecido muito rapidamente em seus primeiros instantes. Nessa teoria particular, a ciência secular parece ter tomado um passo na direção criacionista. Maiores progressos devem ser de interesse nessa área de teoria e pesquisa.
Como então a ciência pode falar com alguma autoridade sobre as “origens”?
Afirma-se que os planetas em nosso sistema solar se originaram ou a partir do sol (fissão), independente do sol (captura), ou juntamente com o sol (nebulosa, acréscimo). Já que essas mesmas três idéias também aparecem nas teorias correntes sobre a origem da lua, os problemas mencionados naquela resposta também se aplicam ao sistema solar.
Uma versão da teoria da fissão estabelece que o sol uma vez foi atingido obliquamente por uma outra estrela que passava e que enormes porções de matéria foram arrancadas do sol e eventualmente se fundiram nos planetas atuais. Entretanto, uma estrela que estivesse passando não poderia fornecer o movimento ou momento angular que o sistema solar possui.
A captura de matéria formadora dos planetas pelo sol é uma teoria ainda menos aceitável do que a fissão. Nuvens de gases estão presentes no espaço, mas alguém dificilmente pode imaginar sua captura pela gravidade do sol. A maioria das nuvens espaciais está muito afastada; elas estão isoladas das estrelas por muitos anos-luz.
A formação Nebular dos planetas requer a contração de uma nuvem de gás devido à gravidade, e então o sol e os planetas se condensam a partir da nuvem em rotação. Há dois principais problemas com essa ideia. Primeiro, semelhante a uma patinadora em rotação sobre seu próprio eixo quando encolhe seus braços de encontro a seu corpo, o gás em contração faria com que o sol girasse em uma rotação muito rápida. Contudo, a rotação real do sol é devagar demais para sustentar tal teoria. O sol possui apenas 2 por cento do movimento circular ou momento angular do sistema solar. Observa-se que as nuvens gasosas no espaço geralmente se expandem ou permanecem constantes em tamanho, mas não se contraem. Para uma nuvem típica, as forças exteriores de um gás são muito mais fortes do que o puxão da gravidade para dentro.
Desde que toda teoria secular para a origem do sistema solar começa com matéria preexistente, nenhuma é realmente uma teoria da origem afinal! Exceto aceitando a criação sobrenatural a partir do nada (João 1:3; Col. 1:16-17), a ciência deve começar com material de uma fonte desconhecida. A ciência sozinha nunca terá as respostas finais com respeito à verdadeira origem e propósito do sistema solar. Apenas em Cristo o Criador "estão escondidos todos os tesouros da sabedoria e da ciência…" (Col. 2:3). Isto não significa que nós devemos abandonar nossa busca por conhecimento científico. Significa que nós devemos manter uma postura de reverência e humildade espiritual nessa busca. Afinal, é o universo de Deus, e reflete seus atributos de perfeito poder, sabedoria e amor.
As mutações gênicas podem produzir mudanças positivas nos seres vivos?
Os evolucionistas têm sustentado que as mutações gênicas são uma estrada de mudanças positivas nos organismos vivos. Por exemplo, o livro de Richard Dawkins, The Blind Watchmaker (O Relojoeiro Cego), busca estabelecer um universo de acasos, sem Deus, em que o aparecimento de design na vida ocorreu por acidente, por sucessivos acúmulos de mudanças positivas nos genes. Sua evidência relacionada à genética bioquímica, contudo, consiste em modelos teóricos de pequena relevância no mundo real.
Assim, a pergunta continua: O que nós realmente vemos no mundo que nos cerca quando usamos ferramentas científicas de medição e observação? Nós vemos esse “relojoeiro cego” em ação em qualquer dos exemplos da vida real, ou nós vemos o oposto?
O propósito deste artigo é demonstrar a pobreza da teoria evolucionária em explicar os fatos numa área da biologia muito bem pesquisada - ou seja, a área da genética humana. Ele mostrará como os fatos revelados por essa pesquisa mostram que as mutações são, não um “relojoeiro cego”, mas verdadeiramente mais análogas a um “atirador cego.”
Literalmente milhares de doenças humanas associadas a mutações genéticas têm sido catalogadas nos últimos anos, com mais sendo descritas continuamente. Um livro recente de referência em genética médica listou umas 4.500 doenças genéticas diferentes. Algumas das síndromes hereditárias caracterizadas clinicamente antes das análises das moléculas dos genes (tais como a síndrome de Marfan) agora têm demonstrado ser heterogêneas; ou seja, associadas a muitas mutações diferentes. Esta revisão vai apenas arranhar a superfície das muitas descobertas recentes. Ainda assim, os exemplos citados irão ilustrar um princípio geral convincente que se estende por todo esse campo em expansão.
O que são mutações?
Mutações são definidas como alterações aleatórias no DNA celular. Elas mudam o código genético que determina a seqüência dos aminoácidos nas proteínas, introduzindo assim erros bioquímicos de graus de severidade variáveis. As mutações têm sido classificadas como deleções (perda de bases do DNA), inserções (ganho de bases do DNA), e translocações (substituição de uma base do DNA).
Se as mutações afetam as células germinativas (óvulo feminino e espermatozóide masculino), elas são transmitidas para todas as células dos descendentes, e afetam as gerações futuras. Tais mutações são denominadas “mutações germinativas”, e são a causa de doenças hereditárias.
As mutações também ocorrem em outras populações de células do corpo e vão se acumulando durante o período de vida, sem ser transmitidas aos descendentes. Estas são as chamadas “mutações somáticas”, e são importantes na origem de cânceres e outros processos de doenças degenerativas.
Quais são os resultados das mutações no mundo real? (exemplos)
Para examinar o problema das mutações, será útil considerar alguns exemplos de como as mutações realizam seus estragos bioquímicos.
Mutações relacionadas ao colesterol
No sistema cardiovascular, há muito tempo se reconhece que um elevado conteúdo de colesterol circulando no sangue está associado com a degeneração e o estreitamento de artérias médias e grandes. Este processo é denominado “arteriosclerose” e é uma das principais causas de doenças do coração. Mais recentemente, um defeito bioquímico genético causador de altos níveis hereditários de colesterol no sangue foi descoberto e é conhecido como “hipercolesterolemia familiar” (FH).
Essa desordem tem sido relacionada à mutação de um gene que codifica uma proteína receptora da membrana celular. O gene está no cromossomo 19 e tem cerca de 45.000 pares de bases com 18 exons (códigos para a molécula de RNA mensageiro). Sua proteína receptora codificada está ancorada nas membranas de todas as células do corpo, e permite-lhes capturarem e absorverem “pacotes” de gordura e colesterol (chamados lipoproteínas de “baixa densidade” - “low-density lipoproteins”, ou LDL) que são fabricados no fígado. A proteína receptora tem 772 aminoácidos que formam cinco domínios funcionais.
Pelo menos 350 diferentes mutações do receptor de colesterol, causadoras de doenças, têm sido descritas. Elas podem ser classificadas de acordo com o domínio funcional afetado.
Exemplos de mutações no gene receptor LDL relacionado ao colesterol. Os 18 exons do gene e várias combinações de mutações conhecidas, classes 1-5, são mostrados. (Esta ilustração é adaptada de um diagrama mais detalhado em J.L. Goldstein e M.S. Brown, “Familial Hypercholesterolemia,” in C.R. Scriver , A.L. Beaudet, W.S. Sly, and D. Valle, editors, The Metabolic Basis of Inherited Disease, 6th edition (New York: McGraw-Hill, 1989), p. 1232.)
Na primeira classe de mutação, pouco ou nenhum receptor é sintetizado. Na segunda, a proteína receptora é sintetizada, mas não toma seu devido lugar na membrana celular. Na terceira, a proteína receptora está presente na membrana mas não se liga aos pacotes de LDL. Na quarta, a proteína receptora é incapaz de permanecer na membrana. Na quinta, a proteína receptora está presente na membrana e se liga aos pacotes de LDL, mas não os transporta para o interior da célula. Nenhuma dessas é benéfica.Todas as células do corpo necessitam de colesterol para suas membranas; então, uma certa quantidade é necessária e benéfica. Contudo, defeitos nesse receptor de proteína resultam em altos níveis de colesterol no sangue através de um ciclo de retroalimentação (feedback). Quando o receptor de proteína não está funcionando, as células continuam enviando os sinais para a fabricação de mais pacotes de colesterol, e o fígado obedece. Em homozigotos, os níveis de colesterol são de três a cinco vezes o nível adequado, enquanto heterozigotos têm cerca de duas vezes o nível adequado. Isso resulta em uma rápida arteriosclerose, que às vezes resulta em doenças cardíacas fatais na infância.
Mutação da fibrose cística
Um segundo exemplo é uma doença genética comum, a fibrose cística (FC). Esta doença afeta muitos sistemas e aleija crianças, levando à morte prematura. Ela danifica os pulmões, os órgão digestivos e, nos homens, os vasos deferentes (dutos espermáticos). Seus diferentes efeitos, de brandos a severos, são em parte devido a diferentes tipos de mutação afetando um gene chave.
Essa base bioquímica é a mutação de um gene codificador de uma proteína da membrana que regula o transporte de íons cloreto através da membrana celular. Esse gene tem 250.000 pares de bases e é denominado de gene CFTR. Ele codifica uma proteína da membrana composta de 1.480 aminoácidos. Pesquisas sobre esse gene mostraram uma mutação, delta-F508, ocorrendo na maioria dos casos clínicos de FC. Essa mutação é uma deleção de três nucleotídeos resultando na perda de resíduo de fenilalanina na posição 508 da cadeia de peptídeos.
Além dessa mutação geralmente comum, mais de 200 outras mutações desse gene foram descritas. Apenas algumas poucas dessas estão associadas às formas mais severas da doença, que levam à morte prematura por infecções pulmonares. Outras mutações ou combinações de mutações levam a estados menos graves da doença, como pancreatite crônica ou esterilidade masculina, mas, novamente, nenhum resultado benéfico tem sido observado.Câncer
Como um exemplo abrangente de doença produzida por mutações somáticas, vamos considerar o câncer. A ligação entre as causas de câncer e mutações genéticas tem se tornado muito mais clara.
Cancerígenos (agentes que causam câncer) também tendem a ser poderosos mutagênicos (agentes que produzem mutações). A descoberta de “oncogenes” e "genes supressores de tumor" tem demonstrado como essa relação funciona. Basicamente, esses genes estão envolvidos com a regulação do ciclo celular. Os oncogenes forçam a reprodução da célula para adiante, enquanto os genes supressores de tumor a detêm. Ambos são necessários para o funcionamento adequado e o crescimento da célula. Mas danos causados por mutação aos componentes de ambos os sistemas podem produzir um crescimento descontrolado das células, ou seja, câncer.
Este fenômeno pode ser comparado a um carro em que há danos no acelerador, fazendo com que ele fique preso “acelerando”, enquanto os freios também estão danificados. Essas mutações são normalmente adquiridas ao longo de décadas, assim o câncer é principalmente uma doença da velhice. Contudo, estudos mostram que mutações germinativas herdadas, nos oncogenes e genes supressores chaves podem predispor pessoas ao desenvolvimento de câncer na infância.
Exemplos disso incluem câncer na infância como retinoblastoma, assim como casos hereditários de câncer mais comuns (por exemplo, na mama ou no cólon) que estão ligados a genes mutantes específicos (por exemplo, o BRCA1 e BRCA2 para câncer de mama hereditário, e o gene APC para câncer e pólipos hereditários no cólon).
As mutações têm algum efeito positivo?
Com essa série de doenças humanas causadas por mutações, o que dizer dos efeitos positivos? Com milhares de exemplos de mutações prejudiciais prontamente disponíveis, seguramente seria possível descrever algumas mutações positivas se a macroevolução fosse verdade.
Estas seriam necessárias não apenas para a evolução em direção a uma maior complexidade, mas também para compensar os danos de muitas mutações prejudiciais. Porém, quando se menciona a identificação de mutações positivas, os cientistas evolucionistas ficam estranhamente silenciosos.
Anemia Falciforme
A mutação responsável pela anemia falciforme foi apresentada como um exemplo de Evolução. Isso é obviamente problemático, visto que a mutação falciforme, como muitas outras mutações descritas da hemoglobina, claramente prejudica a função da outrora maravilhosamente bem-formada molécula de hemoglobina. De maneira nenhuma ela pode ser considerada como uma melhoria em nossa espécie, mesmo que sua preservação seja aumentada pela seleção natural em áreas da África central onde a malária é endêmica.
Degeneração de células cancerosas
Ainda mais estranhamente, o processo de degeneração de células cancerosas tem sido visto como uma forma Darwiniana de mutação Mais uma vez, essa idéia falha em se sustentar quando submetida a um exame mais minucioso. Células malignas dificilmente podem ser consideradas como um melhoramento das similares normais. Elas são “mais eficientes” apenas em sua atividade de replicação, mas mesmo isso é apenas um uso exagerado de um mecanismo celular já existente. Em muitos outros sentidos importantes, elas possuem características degenerativas. Elas não mostram nenhum ganho de informação, mas geralmente uma perda ou desordem de funções.
Conclusões
Que conclusões podem ser extraídas desses poucos exemplos, e de incontáveis outros exemplos como esses? Primeiro, que o problema da mutação humana é ruim e está ficando pior. Segundo, que ele está em desequilíbrio por não ter sido encontrada nenhuma mutação positiva.
Para resumir, pesquisas recentes têm revelado literalmente dezenas de milhares de mutações diferentes afetando o genoma humano, com uma probabilidade de muitas outras ainda serem caracterizadas. Essas têm sido associadas a milhares de doenças que afetam todos os órgãos e tecidos do corpo. As descrições médicas de muitas formas de doenças hereditárias têm um tema em comum: 80 a 90% dos casos têm afetado indivíduos na árvore genealógica, porém os demais casos são esporádicos - o resultado de um número sempre crescente de novas mutações. Em toda essa pesquisa, nem ao menos uma única mutação que aumentasse a eficiência de uma proteína humana codificada geneticamente foi encontrada.
Em vez de “relojoeiro cego”, as mutações comportam-se como um “atirador cego”, um destruidor que dispara aleatoriamente suas “balas” mortais em direção aos tão bem projetados modelos de mecanismos moleculares viventes. Algumas vezes eles matam. Assim, o “relojoeiro cego” é uma ilusão. Pior que isso, ele é intelectualmente e moralmente equivalente a um ídolo - uma invenção da imaginação, a quem falsamente se atribuíram poderes super-humanos.
Deterioração e degeneração
Esta pesquisa afirma a realidade da maldição Bíblica de degeneração e deterioração no mundo natural, como está expresso em ambos, no Velho e no Novo, Testamentos.
Ela também realça a assustadora realidade da futura desesperança da raça humana sem a intervenção salvadora de Deus e de Seu Cristo. As mutações lentamente continuam a nos prejudicar. Cada geração tem uma constituição genética levemente mais desordenada do que a precedente, e nenhuma quantidade de eugenia pode reverter esse processo de deterioração. A terapia gênica pode mascarar os efeitos, mas não irá reverter o processo degenerativo básico.
Uma ligeira, porém definida e contínua taxa de mutação, acompanhada de uma taxa nula de mudanças genéticas positivas irá eventualmente transformar o código genético humano em uma mensagem inteligível. O problema é como um grande livro, escrito com uma gramática perfeita a princípio, mas com substituições aleatórias das letras introduzidas num ritmo contínuo. O livro ainda permanecerá legível por algum tempo, mas finalmente irá perder todo o sentido. Assim como o universo é projetado para alcançar um estado de máxima entropia, a raça humana também está condenada a uma morte degenerativa, não apenas como indivíduos, mas como um todo.Em conclusão, a esperança cristã permanece como a única luz na escuridão. Apenas a obra criadora e regeneradora de Cristo, como revelada em Sua criação de todas as coisas (João 1:3), Suas curas miraculosas, e Sua ressurreição dos mortos, oferece à humanidade verdadeira esperança para o futuro.
Referências
Richard Dawkins, The Blind Watchmaker: Why the Evidence of Evolution Reveals a Universe Without Design (W.W. Norton and Co., 1987).
Lubert Stryer, Biochemistry, 3rd edition (W.H. Freeman and Co., 1998).
C. Koch and N. Hoiby, "The Pathogenesis of Cystic Fibrosis," The Lancet, Volume 341 (1993).
Friedman Cohn, et al., "Idiopathic Chronic Pancreatitis and Mutations of the Cystic Fibrosis Gene," The New England Journal of Medicine, Volume 339 (1998).
Robert Weinberg, "Oncogenes and Tumor Suppressor Genes,"CA: A Cancer Journal for Clinicians, Volume 44, Number 3 (1994).
Felix Mitelman, "Chromosomes, Genes, and Cancer," CA: A Cancer Journal for Clinicians, Volume 44, No. 3 (1994).
J. Defasche and J. Kastelein, "Molecular Epidemiology of Familial Hypercholesterolemia," The Lancet, Volume 352 (1998).
Robbins, Cotran and Kumar, The Pathologic Basis of Disease, 5th edition (Philadephia: W.R. Saunders Co., 1994).
Costumo receber e-mails perguntando sobre onde na Bíblia afirma que a Terra tem 6.000 anos. Esta resposta resulta de uma síntese de uma série de passagens das Escrituras.
Genealogias de Gênesis
Nosso ponto de partida seriam as chamadas Chrono-genealogias de Gênesis 5 e 11. Estas genealogias, pela sua natureza, não contêm quaisquer lacunas. O Dr. Jonathan Sarfati, da Creation Ministries International, escreveu um artigo detalhado sobre o porquê de a gramática e a exegese sonora não poderem permitir falhas nestas duas genealogias especiais.¹ Estas genealogias nos permitem encontrar a data em que Abraão saiu de Haran, em Gênesis 12:4. Esta data deve ter sido 2083 AM, onde AM significa Anno Mundi, o Ano do Mundo - isto é, os anos após a criação.
Em Gênesis 12:10, lemos que os descendentes de Abraão estavam no Egito por 430 anos. Em 1 Reis 6:1, vemos que Salomão construiu o templo 479 anos depois do Êxodo. Salomão morreu, e o reino foi dividido 37 anos depois (1 Reis 11:42). E então, Jerusalém foi destruída 390 anos depois disso, de acordo com Ezequiel 4:4-6. Quando estes números são somados, descobrimos que a destruição de Jerusalém foi em 3419 AM. No entanto, temos uma data extra-bíblica para este evento - 584 a.C. Quando 3419 é adicionado a 584, nós achamos que o ano da criação era em torno de 4003 a.C.
Aproximadamente Preciso
Há uma pequena margem de erro. Cada adição poderia representar um erro de quase um ano, porque não sabemos se, por exemplo, Abraão deixou Haran em seu 75º aniversário, ou quando ele tinha 75 anos e 11 meses de idade. Nós simplesmente sabemos que ele estava com 75 anos. Então, a data de criação poderia ser adiada para cerca de 4.200 a.C., mas não é realmente muito mais distante. Aqueles que assumem que o Criacionismo da Terra Jovem implica que a Terra é de 10.000 anos de idade ou mais jovens não estão usando a Bíblia para os seus métodos de datação. O termo Criacionismo da Terra Jovem só deve realmente ser utilizado para aqueles que tomam a posição bíblica de cerca de 6.000 anos.
Existem lacunas nas genealogias de Gênesis 5 e 11 ?
Uma leitura direta das genealogias bíblicas, segundo o confiável texto massorético, mostra que Adão foi criado por volta de 4000 a.C., no sexto dia da criação. As cópias existentes da Septuaginta e do Pentateuco Samaritano não são tão confiáveis, mas, no máximo, poderiam estender essa data até cerca de 5400 a.C. Não há justificativa para acreditar em lacunas nas cronogenialogias do Gênesis, visto que os argumentos apresentados em favor de tais pontos de vista são refutados por análises contextuais, linguísticas e históricas.
Qual texto deve ser usado?
CMIAs cronogeniarias de Gênesis 5 e 11 podem ser usadas para datar a criação e o Dilúvio, como fez James Ussher na década de 1650.
Existem três textos antigos principais no Antigo Testamento:
O Texto Massorético, usado nas Bíblias hebraicas modernas, é a base da maioria dos Antigos Testamentos em inglês. Seu nome deriva dos massoretas (transmissores), copistas especializados da Bíblia que padronizaram o texto e adicionaram sinais vocálicos para facilitar a pronúncia, já que o texto anterior continha apenas consoantes. Os massoretas só padronizaram os sinais vocálicos no século VII ou VIII d.C.
A Septuaginta (LXX) foi uma tradução grega do Antigo Testamento. O nome vem do latim septuaginta (70), porque, segundo a lenda, 72 rabinos (seis de cada uma das 12 tribos) foram responsáveis pela tradução em Alexandria, por volta de 250 a.C. Na realidade, foi composta ao longo de décadas, a partir do século III a.C.século a.C. Os múltiplos tradutores significam que sua precisão é irregular. O Pentateuco é considerado razoavelmente confiável, enquanto outras seções são menos precisas. A Septuaginta era amplamente utilizada por judeus fora de Israel nos tempos do Novo Testamento [NT]. Isso explica por que ela era comumente (mas longe de ser exclusivamente) citada no NT — caso contrário, pessoas como os nobres bereanos de Atos 17:11 poderiam ter verificado os ensinamentos dos apóstolos com base no AT e dito: "Não é assim que encontramos em nossa Bíblia". .²
O Pentateuco Samaritano (PS) é uma versão hebraica que data do século I a.C.século a.C. Depois que os assírios deportaram muitos habitantes do Reino do Norte de Israel, eles importaram colonos para a área centrada em Samaria. Os samaritanos eram descendentes mistos desses colonos e judeus. Eles tinham seu próprio sistema de culto centrado no Monte Gerizim ( João 4:20-21 ), baseado apenas na Lei de Moisés, ou Pentateuco, que era ligeiramente diferente daquela usada pelos judeus tradicionais. O Texto Samaritano difere do Texto Massorético em cerca de 6.000 passagens. Em cerca de 2.000 desses casos, concorda com a Septuaginta contra o Texto Massorético.
Como demonstrado na tabela 1, esses três textos apresentam idades diferentes para os patriarcas no nascimento do próximo na linhagem e em suas mortes, mas todos concordam dentro de uma margem de menos de 1.400 anos para a cronologia desde a criação até Abraão. A cronologia bíblica deve ser baseada no Texto Massorético, pois os outros textos apresentam evidências de edição.<sup> 3</sup> Por exemplo, as cronologias da Septuaginta são comprovadamente exageradas, pois contêm o erro (óbvio) de que Matusalém viveu 14 anos após o Dilúvio.
Data de criação
Podemos definir o ano da criação do mundo como AM 1 (AM = Anno Mundi = ano do mundo). Adão morreu em AM 930, Noé nasceu em AM 1056 e o Dilúvio ocorreu 600 anos depois, em AM 1656. Abraão nasceu quando Terá tinha 130 anos, 352 anos após o Dilúvio, em AM 2008. Isso reduz o intervalo possível para a data da criação. A única razão para a incerteza é a datação de Abraão, que depende das datas de sua estadia no Egito e da monarquia israelita. Uma vez conhecidas essas datas, as demais podem ser calculadas matematicamente.
O falecido Dr. Gerhard Hasel, que foi professor de Antigo Testamento e Teologia Bíblica na Universidade Andrews, calculou a partir do Texto Massorético que Abraão nasceu por volta de 2170 a.C. Assim, o Dilúvio ocorreu em 2522 a.C. e a Criação em 4178 a.C.⁴ O Dr. Hasel assumiu corretamente que não havia lacunas nas genealogias, como será justificado adiante.
Tabela 1. Cronogenealogias dos Patriarcas de acordo com diferentes tradições textuais.
Nome
Idade ao gerar o próximo filho
anos de vida restantes
LXX
Texto Massorético
Pentateuco Samaritano
LXX
Texto Massorético
Pentateuco Samaritano
Adão
230
130
130
700
800
800
Seth
205
105
105
707
807
807
Enosh
190
90
90
715
815
815
Cainan
170
70
70
740
840
840
Mahalaleel
165
65
65
730
830
830
Jared
162
162
62
800
800
785
Enoch
165
65
65
200
300
300
Matusalém
167
187
67
802
782
653
Lameque
188
182
53
565
595
600
Noé
500
500
500
450
450
450
Total: Adão ao Dilúvio
2242
1656
1307
Sem
100
100
100
500
500
500
Arphaxad
135
35
135
430
403
303
[Cainan] (i)
[130]
–
–
[330]
–
–
Selá
130
30
130
330
403
303
Éber
134
34
134
370
430
270
Peleg
130
30
130
209
209
109
Reu
132
32
132
207
207
107
Serug
130
30
130
200
200
100
Nahor
79
29
79
129
119
69
Terah (ii)
70
70
70
135
135
75
Total: Dilúvio a Abraão
1070
290
940
A inclusão de um Cainiano adicional na Septuaginta será discutida em uma seção posterior.
Note que Abraão não era o primogênito de Terá. Gênesis 12:4 diz que Abraão tinha 75 anos quando saiu de Harã, pouco depois da morte de Terá, aos 205 anos ( Gênesis 11:32 ), e a diferença (205 menos 75) significa que Terá tinha, na verdade, 130 anos quando Abraão nasceu, e não 70 (Ussher parece ter sido o primeiro cronologista moderno a notar esse detalhe). Este último número se refere à idade de Terá quando nasceu o mais velho dos três filhos mencionados, provavelmente Harã.
As genealogias apresentam lacunas?
James Barr, então professor régio de hebraico na Universidade de Oxford, escreveu em 1984:
'... provavelmente, até onde sei, não há nenhum professor de hebraico ou do Antigo Testamento em qualquer universidade de renome mundial que não acredite que o(s) autor(es) de Gênesis 1–11 pretendiam transmitir aos seus leitores a ideia de que: ... as figuras contidas nas genealogias de Gênesis forneciam, por simples adição, uma cronologia desde o início do mundo até os estágios posteriores da história bíblica.' 5
Barr, coerente com suas visões neo-ortodoxas, não acreditava no Gênesis, mas compreendia o que o texto hebraico ensinava com tanta clareza . Foi apenas a necessidade percebida de harmonizar-se com a suposta idade da Terra que levou ele e pessoas como ele a pensarem de forma diferente — não tinha nada a ver com o texto em si.
Davis Young, um veterano da área, destaca:
Os pais da igreja também sugeriram que o mundo tinha menos de seis mil anos na época de Cristo, com base na cronologia dos relatos genealógicos de Gênesis 5 e 11 e em outras informações cronológicas das Escrituras. .
O historiador judeu Flávio Josefo (37/38 d.C. – c. 100), em sua obra Antiguidades Judaicas, também apresenta uma cronologia sem qualquer indício de lacunas. Isso é significativo, pois indica que os judeus de sua época nunca presenciaram tais lacunas. Os nomes e as épocas em seus escritos demonstram que Josefo utilizou principalmente a Septuaginta (LXX).
'Esta calamidade [Dilúvio] começou no ano 600 do governo de Noé [era]... Agora ele [Moisés] diz que este dilúvio começou no dia 27 [ 17 ] do mês mencionado anteriormente [Nisan]; e isso foi 2.656 [1.656] 7 anos depois de Adão, o primeiro homem; e o tempo está escrito em nossos livros sagrados, aqueles que viveram então anotaram, com grande precisão, tanto os nascimentos quanto as datas de homens ilustres.
Pois Sete nasceu quando Adão tinha 230 anos , e este viveu 930 anos. Sete gerou Enos aos 205 anos , o qual, aos 912 anos, entregou o governo a Cainã, seu filho, que nasceu aos 190 anos e viveu 905 anos. Cainã, aos 910 anos, gerou Malaleel, que nasceu aos 170 anos. Este Malaleel, tendo vivido 895 anos, morreu, deixando Jarede, que nasceu aos 165 anos e viveu 962 anos; e Enoque o sucedeu, que nasceu quando seu pai tinha 162 anos. Ora, ele, tendo vivido 365 anos, partiu e foi para Deus; por isso não se registrou a sua morte. Ora, Matusalém, filho de Enoque, que lhe nasceu aos 165 anos, teve Lameque como filho aos 187 anos, a quem confiou o governo, que manteve por 969 anos. Lameque, depois de governar por 777 anos, nomeou Noé, seu filho, como governante do povo. Noé nasceu aos 182 anos e manteve o governo por 950 anos. A soma desses anos corresponde ao período anteriormente mencionado; mas que ninguém questione a morte desses homens, pois eles viveram por muitos anos, incluindo seus filhos e netos, e que se atenha apenas aos seus nascimentos. … 8
'Tratarei agora dos hebreus. O filho de Falague, cujo pai era Héber, foi Ragau, cujo filho foi Serugue, de quem nasceu Naor; seu filho foi Terá, que foi o pai de Abraão, que, portanto, era o décimo a partir de Noé, e nasceu no ano 290 após o Dilúvio; pois Terá gerou Abrão aos 70 anos . 9 Naor gerou Harã [ sic —Terá?] quando tinha 120 anos; Naor nasceu de Serugue aos 132 anos ; Ragau teve Serugue aos 130; na mesma idade também Falague teve Ragau; Héber gerou Falague aos 134 anos ; ele próprio foi gerado por Sala quando tinha 130 anos, a quem Arfaxade teve como filho aos 135 anos de idade, Arfaxade era filho de Sem, e nasceu 12 anos após o Dilúvio.' 10 , 16 , 17
Isso vem do 'Livro 1, que contém o intervalo de 3.831 anos: da criação à morte de Isaac'. Mais uma vez, isso descarta quaisquer lacunas ou longos dias de criação.
Para demonstrar que as citações de Barr e Josefo não são meramente a falácia do Argumentum ad verecundiam (apelo à autoridade), seguem algumas evidências exegéticas da precisão da cronologia.
Gramática
O criacionista progressista Hugh Ross aponta para algumas genealogias bíblicas que apresentam lacunas para afirmar que as genealogias de Gênesis 5 e 11 estão em grande parte incompletas. 11 Ele também afirma:
'As palavras traduzidas para o inglês dizem o seguinte: “Quando X tinha vivido Y anos, tornou-se pai de Z.” Alguém que lesse a mesma passagem em hebraico veria uma segunda possibilidade: “Quando X tinha vivido Y anos, tornou-se pai de uma linhagem familiar que incluía ou culminava em Z”.' 12
Contudo, nenhum dos exemplos de lacunas nas genealogias ( Mateus 1:8-9 vs. 1 Crônicas 3:10-12 ) menciona a idade do pai no nascimento do próximo nome na linhagem, sendo, portanto, irrelevantes para a questão da genealogia estar incompleta, expressamente declarada como sendo três grupos de 14 nomes ( Mateus 1:17 ). Isso, por sua vez, provavelmente se deve ao fato de que as letras hebraicas do nome Davi, uma figura-chave na narrativa, somam 14. Em Gênesis 5 e 11 , não há tal intenção. Assim, as listas de Gênesis 5 e 11 são, por vezes, corretamente chamadas de "listas incompletas". genealogias de Gênesis , que a mencionam. Além disso, a genealogia de Mateus foi claramente concebida cronogenealogias , pois incluem tanto informações temporais quanto pessoais. Hasel explicou a diferença:
No que diz respeito à genealogia em Mateus, a esquematização é evidente e pode ser corroborada pela comparação com dados genealógicos do Antigo Testamento. Será que o mesmo pode ser demonstrado para Gênesis 5 e 11 ? Existe um esquema de dez mais dez em Gênesis 5 e 11 ? Uma simples contagem dos patriarcas em Gênesis 5 e 11 revela que não há uma sequência esquemática de dez a dez. Em Gênesis 5, há uma linhagem de dez patriarcas, de Adão a Noé, que tiveram três filhos, mas em Gênesis 11:26 a linhagem de patriarcas consiste em apenas nove membros, de Sem a Terá, que “gerou Abrão, Naor e Harã” ( Gênesis 11:26 ). Se Abraão for considerado o décimo patriarca em Gênesis 11 , então a coerência exige que Sem seja considerado o décimo primeiro patriarca em Gênesis 5 , pois cada genealogia termina com um patriarca para o qual são mencionados três filhos. Ao que parece, uma comparação entre Gênesis 5:32 e 11:26 revela que não há justificativa para contar um dos três filhos em um caso e não no outro, quando, na verdade, a fórmula é a mesma. Assim, se contarmos dez patriarcas em Gênesis 5 , a coerência exige a contagem de nove patriarcas em Gênesis 11 , ou vice-versa, se contarmos onze em Gênesis 5 , então precisamos contar dez em Gênesis 11. Os números 10/9 e 11/10, respectivamente, dificilmente podem ser considerados um arranjo intencional ou uma simetria. Em suma, a suposta “simetria de dez gerações antes do Dilúvio e dez gerações depois do Dilúvio” [Refs.] é inexistente no texto hebraico. Portanto, a analogia com as três séries de quatorze gerações em Mateus 1:1-17 é uma falha. falácia [não se segue] .¹³
Ross também destaca que a palavra hebraica 'ab (pai) pode significar avô ou ancestral, enquanto ben (filho) pode significar neto ou descendente. 14 Mas Ross novamente erra ao adotar injustificadamente um campo semântico expandido. 14 Ou seja, o fato de essas palavras poderem ter esses significados em alguns contextos não significa que possam tê-los em qualquer nesse contexto específico .Contexto. As genealogias de Gênesis 5 e 11 dizem que X também 'gerou filhos e filhas', o que implica que Z é igualmente filho de X.
E mesmo que admitamos que Z seja descendente de X, Z é sempre precedido pela partícula acusativa את ( 'et ), que não é traduzida, mas marca Z como o objeto direto do verbo 'gerar' (ויולד wayyôled ). Isso significa que a geração de Z por X ainda ocorreu quando X tinha Y anos de idade, independentemente de Z ser filho ou um descendente mais distante. A gramática hebraica fornece suporte adicional — wayyôledé a forma hiphil waw — imperfeito consecutivo do verbo hebraico yalad — o radical hiphil comunica o sujeito que participa da ação que causa um evento, por exemplo, Sete como o gerador de Enos. Hasel destacou:
A frase repetida “e gerou PN [nome pessoal]” ( wayyôled 'et-A expressão "e gerou filhos e filhas" (ou seja, "e gerou filhos e filhas " ) aparece quinze vezes no Antigo Testamento — todas em Gênesis 5 e 11. Em duas outras ocorrências, os nomes de três filhos são mencionados ( Gênesis 5:32 ; 11:26 ). A mesma forma verbal dessa frase (ou seja , "e gerou filhos e filhas") é empregada outras dezesseis vezes na expressão "e gerou filhos e filhas" ( Gênesis 5:4 , 7 , 10 , etc.; 11:11, 13, 17, etc.). Os demais usos dessa forma verbal no Hifil, no livro de Gênesis, revelam que a expressão "e gerou filhos e filhas" (ou seja, "e gerou filhos e filhas" ) é usada no sentido de descendência física direta ( Gênesis 5:3 ; 6:10 ). A descendência física direta é evidente em cada um dos usos restantes do Hiphil de , “e ele gerou”, no Antigo Testamento ( Juízes 11:1 ; 1 Crônicas 8:9 ; 14:3 ; 2 Crônicas 11:21 ; 13:21 ; 24:3 ). A mesma expressão reaparece duas vezes nas genealogias de 1 Crônicas, onde a frase “e Abraão gerou Isaque” ( 1 Crônicas 1:34 ; cf. 5:37 [6:11]) descarta a possibilidade de o filho mencionado ser apenas um descendente distante do patriarca, e não um descendente físico direto. Portanto, a frase “e ele gerou PN” em Gênesis 5 e 11 não pode significar que Adão “gerou um ancestral de Sete”. A visão de que Sete e qualquer filho mencionado em Gênesis 5 e 11 sejam apenas descendentes distantes se torna frágil diante das evidências da língua hebraica utilizada. wayyôled wayyôled wayyôled 15
Onde podem ser inseridas as 'lacunas'?
Outro problema reside em onde as lacunas poderiam ser plausivelmente inseridas. Há diversos locais onde a inclusão de uma lacuna é explicitamente descartada:
Sete: Sete é definitivamente um filho direto de Adão e Eva, e é visto como um substituto para Abel, morto por Caim ( Gênesis 4:25 ).
Enos: deve ser filho de Sete, porque Sete lhe deu o nome ( Gênesis 4:26 ).
Enoque: Judas 14 diz que Enoque era o sétimo depois de Adão, o que indica uma relação direta de pai e filho, de Adão a Enoque.
Noé: Lameque o nomeou, então Lameque deve ser seu pai, não apenas um ancestral ( Gênesis 5:29 ).
Sem, Cam e Jafé eram certamente filhos comuns de Noé, visto que o acompanharam na arca.
Arfaxade era claramente filho de Sem, porque nasceu dois anos depois do Dilúvio ( Gênesis 11:10 ).
Abrão, Harã e Naor eram filhos comuns de Terá, pois viajaram juntos de Ur dos Caldeus ( Gênesis 11:31 ).
Matusalém: Enoque, um profeta pré-diluviano ( Judas 14 ), deu ao seu filho um nome que significa 'quando ele morrer, será enviado', e a cronologia massorética, sem lacunas, situaria sua morte no ano do Dilúvio.
Alguns comentários afirmam que Matusalém significa "homem da lança", mas o estudioso cristão hebreu Dr. Arnold Fruchtenbaum argumenta:
O nome Matusalém pode significar duas coisas. Portanto, pode significar "homem da lança" ou "quando ele morrer, ela será enviada". O debate não gira em torno da segunda parte da palavra que, em hebraico, é shalach; e shalach significa "enviar". Embora o conceito de enviar seja o significado primário de shalach , ele tem um significado secundário de ser lançado ou arremessado em um contexto onde o envio é feito com grande força ou velocidade. Com base nisso, alguns concluiriam que shalach significaria "míssil", "dardo" ou "lança". No entanto, esse é um significado derivado, porque o significado primário de shalach é "enviar", como qualquer léxico demonstra.
Em última análise, a forma como lidamos com shalach depende de como lidamos com a primeira parte da palavra, que contém as duas letras hebraicas que formam a palavra mat . Com base na raiz, o significado seria de fato "homem". Portanto, os comentaristas concluem que significa "homem da lança" ou "homem do dardo". No entanto, o uso do termo "lança" ou "dardo" não corresponde ao significado de shalach em nenhum léxico que eu conheça. Trata-se simplesmente de um significado derivado, que vai de enviar a arremessar, até tentar criar um objeto específico. Se mat tivesse a intenção de significar homem, numa interpretação estritamente literal, não significaria "homem da lança" ou "homem do dardo", mas sim "um homem enviado".
A segunda opção para "mat" é que venha da raiz que significa "morrer". Além disso, a letra " vav" entre "mat " e "shalach" confere-lhe uma força verbal. É por isso que prefiro interpretá-la estritamente ao pé da letra, usando a raiz "morrer", que literalmente significaria "ele morre, assim será enviado".
'Prefiro essa tradução do nome, “quando ele morrer, será enviado”, por dois motivos. O primeiro é que acho que se encaixa muito melhor na interpretação hebraica do nome. Em segundo lugar, é melhor no contexto mais amplo, já que, se seguirmos a cronologia do Gênesis, o mesmo ano em que ele morreu foi o ano do dilúvio. Não acho que isso tenha sido mera coincidência.' 18
O número de gerações desaparecidas teria que ser enorme.
É importante notar que aqueles que desejam estender o período entre a Criação, o Dilúvio e Abraão para adequá-lo às suas interpretações geológicas precisam de muito MasMais do que apenas alguns nomes faltando. Normalmente, as pessoas querem recuar o Dilúvio ao máximo, e como as cronologias de Gênesis 11 são as que ligam o Dilúvio a Abraão, são essas que precisam ser "expandidas". Ross "data" o Dilúvio entre "vinte e trinta mil anos atrás". Mas, como o povo de Gênesis 11 tinha filhos com 35 anos ou menos, adicionar mesmo 10.000 anos exigiria mais de 250 gerações faltantes! É de se perguntar como uma genealogia poderia omitir todas essas gerações sem deixar qualquer rastro. E, visto que muitos dos nomes mencionados não incluem nenhum registro de feitos ou ditos por eles, por que o autor se daria ao trabalho de mencioná-los quando tantos outros foram omitidos?
Ross também destaca que Lucas 3:36 contém o nome adicional Cainã, que não é mencionado em Gênesis 11:12 . 14 Ele usa isso para afirmar, na verdade, aqui está uma lacuna comprovada, então não há nada que impeça a multiplicação ilimitada de lacunas.
Este Cainã adicional aparece na maioria dos manuscritos gregos de Lucas e na Septuaginta de Gênesis 11. Mas o nome provavelmente não estava nos autógrafos originais, como demonstram as seguintes evidências textuais:
O termo adicional "Cainã" em Gênesis 11 é encontrado apenas em manuscritos da Septuaginta escritos muito tempo depois do Evangelho de Lucas. Os manuscritos mais antigos da Septuaginta não contêm esse "Cainã" adicional.
A cópia mais antiga conhecida de Lucas omite o adicional de Cainã. Trata-se do códice de papiro de 102 páginas (originalmente 144) da Coleção Bodmer, etiquetado como P 75 (datado entre 175 e 225 d.C. ) .
Josefo frequentemente usava a Septuaginta como fonte, mas não mencionou o segundo Cainã (veja acima).
Júlio Africano (c. 180 d.C. – c. 250 d.C.) foi "o primeiro historiador cristão conhecido por ter produzido uma cronologia universal". Em sua cronologia, escrita por volta de 220 d.C., ele também seguiu as eras da Septuaginta, mas mais uma vez omitiu esse misterioso Cainiano.
Agora que se comprovou que o "Cainan" adicional não estava presente nos manuscritos originais, é útil tentar reconstruir de forma plausível como o erro se infiltrou nas cópias.
Note que o Novo Testamento grego foi originalmente escrito sem pontuação ou espaços entre as palavras. Portanto, Lucas 3:35–38 teria sido originalmente escrito como na Figura 1a. Neste manuscrito, TOYKAINAN ( filho de Cainã) poderia ter aparecido no final da terceira linha.
Mas suponha que um copista antigo do Evangelho de Lucas estivesse copiando a primeira linha, mas seus olhos se detiveram no final da terceira linha, onde se lia TOYKAINAN. Então ele também o teria escrito na primeira linha (Figura 1b).
Em inglês, mantendo a mesma formatação de linha e com itálico indicando palavras adicionadas pelos tradutores que foram compreendidas no grego, a passagem faz sentido (Figura 1c).
Então, se um copista do Evangelho de Lucas é responsável pelo erro, por que ele também está presente na Septuaginta? Como demonstrado, ele não consta nas cópias anteriores, portanto, deve ter sido adicionado posteriormente por um copista que desejava alinhá-lo com Lucas. E mais evidências corroboram essa hipótese, visto que as idades de "Cainã" no nascimento de seu filho e em sua morte são idênticas às datas de Selá, o próximo na linhagem. Isso não é surpreendente — o copista se depara com o nome adicional em Lucas, mas este não fornece informações sobre as idades. Assim, tudo o que o copista pode fazer para manter o padrão é repetir as idades do patriarca seguinte.
A doutrina da inerrância bíblica não é afetada em nada pela diferença de Cain. Como demonstrado, não se trata de um erro nos autógrafos originais das Escrituras, mas sim de um dos raríssimos erros de copista nos manuscritos disponíveis atualmente.
Figura 1.O gráfico acima mostra como o nome de Cainã pode ter sido inserido em versões posteriores de Lucas 3:36 .
Conclusão
Uma leitura direta das genealogias bíblicas, baseadas no confiável Texto Massorético, mostra que Adão foi criado por volta de 4000 a.C. e que o Dilúvio ocorreu por volta de 2500 a.C. Análises contextuais, linguísticas e históricas do livro de Gênesis confirmam que as cronogenialogias constituem um registro completo, sem lacunas. Os criacionistas que desejam retroceder a data do Dilúvio e da Criação para adequá-la às suas teorias geológicas ou arqueológicas não têm fundamento para fazê-lo com base no relato bíblico. Deveriam, em vez disso, recorrer às suas teorias científicas para identificar as discrepâncias.
Referências e notas
Archer, GL, Jr, Enciclopédia de Dificuldades Bíblicas , Zondervan, Grand Rapids, p. 40, 1982.
Young, DA, Cristianismo e a Idade da Terra , Zondervan, Grand Rapids, p. 19, 1982.
As datas entre colchetes referem-se ao Texto Massorético.
Josefo, Antiguidades dos Judeus1 (3):3–4; em: Whiston, W., trad., As Obras de Josefo , p. 28, William P. Nimmo, Edimburgo, sd; números convertidos em numerais.
Mas veja a nota ii, Tabela 1.
Josefo, Antiguidades dos Judeus , 1 (6):5, em Whiston, Ref. 8, p. 32.
Ross, H., A Questão do Gênesis, Navpress, Colorado Springs, 2ª ed ., p. 108–109, 2001.
Ross, Ref. 11, p. 109.
Hasel, Ref. 4.
Carson, DA, Falácias Exegéticas , Baker Book House, Grand Rapids, 2ª ed., p. 60, 1996.
Young, R., Concordância Analítica da Bíblia Sagrada , 1879; 8ª ed ., Lutterworth Press, Londres, p. 210, 1939. Josefo calculou a data da criação em 5555 a.C., porque usou principalmente os números inflados da Septuaginta (5508 ou 5586 a.C.).
Fruchtenbaum, AG, comunicação pessoal, 7 de novembro de 2000.
Ross, Ref. 11, p. 177.
Sarfati, J., Cainã de Lucas 3:36 , Journal of Creation 12 (1):39–40, 1998.
Publicado em 10 de dezembro de 2012 | Atualizado em 15 de junho de 2024
A Bíblia fornece marcadores históricos claros que nos permitem construir uma cronologia da idade da Terra.
A história bíblica nos dá a resposta para a idade da Terra.
Muitas pessoas escrevem perguntando: "Como sabemos que a Terra tem 6.000 anos com base na Bíblia?" Dado que as cronogenialogias — genealogias em que a idade do pai no momento do nascimento do filho é apresentada em uma linhagem ininterrupta — terminam logo após Noé, como chegamos a essa idade a partir de aproximadamente 1600 AM (anno mundi= 'ano do mundo') até hoje, que argumentaríamos ser por volta das 6000 AM?
Com que precisão podemos saber a idade da Terra?
A precisão com que podemos determinar a cronologia de eventos históricos ou a idade de coisas é limitada pela precisão dos dados que nos são fornecidos. A cronologia apresentada nas cronogenialogias tem uma precisão de até um ano em relação ao evento. Com isso, quero dizer que podemos saber que Adão tinha 130 anos quando gerou Sete, mas não sabemos se ele tinha 130 anos e 3 meses, ou pouco menos de 131, por exemplo. Isso se aplica a todas as idades. Portanto, ao somarmos as cronogenialogias, sabemos que o Dilúvio ocorreu em 1656, com uma margem de erro de menos de 10 anos, porque temos 10 números com menos de um ano de incerteza. Se todos os números tivessem sido registrados pouco antes do aniversário seguinte (por exemplo, Adão tinha 130 anos e 11 meses quando gerou Sete, Sete tinha 105 anos e 11 meses quando gerou Enos, e assim por diante), o Dilúvio poderia ter ocorrido por volta de 1665 AM. Mas é evidente que esse tipo de incerteza em pequena escala não trará nenhum conforto para as pessoas que desejam acrescentar milhares de anos à história da humanidade.
O Dilúvio aos Patriarcas
Há uma cronogenia ininterrupta de Sem a Abraão em Gênesis 11, e em Gênesis 1 encontramos informações que estendem a cronologia até a migração de Israel para o Egito, quando Jacó tinha 130 anos. Com base nesses números, Jacó foi para o Egito em 642 + menos de 12 anos após o Dilúvio, ou 2298 + menos de 22 anos AM. A cronogenia termina aqui, com quase 2.000 anos restantes até Cristo. 2 Como podemos estender a linha do tempo?
Dos Patriarcas ao Êxodo
Êxodo 12:40 diz que Israel esteve no Egito por 430 anos. Isso está em perfeita harmonia com Gênesis 15:13, onde Deus diz a Abrão que seus descendentes seriam escravizados e maltratados por 400 anos (a escravização não ocorreu na chegada deles ao Egito, mas algum tempo depois da morte de José, quando seu número se tornou ameaçador). Portanto, o Êxodo aconteceu em 2728 + menos de 23 anos AM.
O Êxodo aos Reis
Sabemos que Israel vagou pelo deserto durante 40 anos, o que significa que entrou na Terra Prometida em 2768 + menos de 24 anos AM. Mas aqui a cronologia fica um pouco mais nebulosa por um tempo. Isso porque não sabemos exatamente quanto tempo durou a conquista, ou exatamente quanto tempo se passou antes que os juízes começassem a governar Israel. Sabemos por quanto tempo cada juiz governou e quanto tempo durou cada período de paz, mas alguns desses períodos claramente se sobrepõem, e alguns juízes claramente governaram apenas parte de Israel enquanto outro juiz governava outra parte.
Mas temos uma declaração clara em 1 Reis que nos permite continuar com uma cronologia confiável. 1 Reis 6:1 diz: “No ano quatrocentos e oitenta depois da saída dos israelitas do Egito, no quarto ano do reinado de Salomão sobre Israel, no mês de Zive, o segundo mês, ele começou a construir o templo do Senhor.”
Portanto, se subtrairmos 124 anos (40 para cada período de peregrinação no deserto, reinado de Saul e reinado de Davi, e 4 para o reinado parcial de Salomão), obtemos um período de cerca de 356 anos para os juízes, o que se encaixa bem com os números em Juízes, se assumirmos algumas sobreposições. Assim, Salomão começou a construir o Templo em 3208 + menos de 23 anos AM. Observe que, embora já tenhamos passado milhares de anos na história, a incerteza sobre as datas é de menos de 25 anos!
Os Reis no Exílio
Se considerarmos os reinados dos reis de Judá, sem assumir quaisquer corregências, do Templo ao Exílio de Judá teriam se passado 429,5 anos, com uma margem de erro de menos de 21 anos. Mas sabemos que houve corregências em Judá, em parte comparando os reis de Judá aos reis de Israel. 3 Fazendo essa comparação, sabemos que do Templo ao Exílio de Judá, na verdade, ocorreram cerca de 345 anos, por volta de 3553 AM. Neste ponto, é possível determinar a data correspondente em nossos termos — e, ao ajustar as diferenças entre os sistemas de calendário, o consenso da grande maioria é 586 a.C. Isso significaria que o ano 1 d.C. seria por volta de 4150 AM, com uma margem de erro de menos de 50 anos, e hoje estaríamos por volta de 6150 AM, com uma margem de erro de menos de 50 anos.
A Bíblia é história!
É evidente que, desde o primeiro versículo de Gênesis, a Bíblia se preocupa em apresentar um relato factual de como Deus interagiu com a Terra. Isso significa que ela deve fornecer detalhes historicamente precisos , além de ser teologicamente correta. De fato, o que cremos sobre Deus se baseia em relatos históricos; portanto, se a história for imprecisa, a teologia também o será! Uma das maneiras pelas quais os autores bíblicos comunicaram que estavam relatando a história com veracidade foi registrando a duração da vida ou medindo o intervalo de tempo entre certos eventos.
Podemos ter certeza de que a Palavra de Deus é precisa tanto em seus detalhes históricos quanto no que nos ensina sobre teologia.
Gênesis 5 narra a história de Adão até Noé e seus filhos; Gênesis 11:10 e seguintes narram a história de Sem até Abrão; Gênesis 21:5 afirma que Abraão tinha 100 anos quando Isaque nasceu; Gênesis 25:26 afirma que Isaque tinha 60 anos quando Jacó e Esaú nasceram, e Gênesis 47:9 diz que Jacó tinha 130 anos quando foi para o Egito.
Alguns argumentam que existem lacunas nas genealogias de Gênesis 5 e 11. Para as razões pelas quais se deve considerá-las genealogias ininterruptas, veja Sarfati, J. Cronogenealogias bíblicas , J. Creation 17 (3):14–18, dezembro de 2003, creation.com/chronogenealogies.
Para obter mais detalhes sobre os desafios da interpretação da cronologia dos reis de Israel e Judá, veja Kaiser W., A History of Israel: From the Bronze Age Through the Jewish Wars (Broadville & Holman: Nashville, TN, 1998), p. 292–300.
Perspectivas sobre a cronologia antiga e o Antigo Testamento — Parte 1
Por Murray R. Adamthwaite
Publicado em 01 de abril de 2019 | Atualizado em 10 de dezembro de 2024
Como podemos começar a correlacionar a cronologia bíblica com dados externos à Bíblia?
Uma tendência crescente entre estudiosos seculares é descartar sumariamente a história bíblica de Gênesis a 1 Reis, sob a alegação de que há uma total incompatibilidade entre esses relatos e o registro arqueológico. Como seu veredicto é de que não existe tal correlação, as histórias bíblicas dos patriarcas, de Israel no Egito, do Êxodo e da Conquista, e até mesmo de Davi e Salomão, devem ser descartadas como meras lendas piedosas, sem fundamento histórico. A resposta a esse desafio é buscar outro período em que esses eventos possam ser encontrados, mesmo que esse período esteja em desacordo com os esquemas cronológicos aceitos, e assim construir uma cronologia revisada. Embora isso implique uma compressão dos esquemas seculares convencionais, é essencial para alcançar uma correspondência entre a história bíblica e os registros do Egito e de outros lugares. Neste e em um artigo subsequente, apresento inicialmente os esquemas convencionais de cronologia antiga para o Egito e a Mesopotâmia, a fim de servirem como pontos de partida para discussão e revisão. Em seguida, ofereço algumas observações preliminares a respeito das correlações entre as pistas bíblicas e a história e cronologia antigas.
Wikimedia Commons
Figura 1. Lista de reis sumérios, Museu Ashmolean, Oxford, Reino Unido
De acordo com Gênesis 11:10–12:4, um período de 367 anos transcorre entre o Dilúvio e a entrada de Abraão em Canaã. Se arredondarmos esse período para 400 (incluindo a inserção de Cainã após Arpachasade na Septuaginta), ele é, em qualquer caso, muito mais curto do que as longas eras de "evolução cultural" que a arqueologia moderna exige. Além disso, a correlação dos relatos bíblicos sobre patriarcas, Êxodo, juízes e reis de Israel com a história antiga, conforme proposto e aceito por historiadores seculares, provou ser um problema intratável. Algumas correlações no período monárquico são bastante seguras: Nabucodonosor e a captura de Jerusalém (586 a.C. ), a invasão de Judá por Senaqueribe (701 a.C. ) e a queda de Samaria para os assírios (722 a.C. ) são exemplos que vêm à mente. Contudo, quando recuamos ainda mais, até o início do primeiro milênio a.C. e antes, surgem problemas: quem era o faraó cuja filha Salomão desposou (1 Reis 3:1)? Podemos identificar os reinos arameus que Davi conquistou (2 Samuel 8)? Os vários opressores durante o período dos Juízes podem ser identificados em textos extrabíblicos? E, claro, há o antigo, mas persistente, problema do faraó do Êxodo — e de José, aliás.
Ao tentar resolver esses problemas, gostaria de estabelecer dois critérios desde já:
Deixando de lado as conclusões dos secularistas que não se comprometem com a inspiração divina das Escrituras, existem visões amplamente divergentes entre os estudiosos crentes. Consequentemente, deve haver uma disposição de todos os lados para considerar com empatia as opiniões de outros dentro da comunidade de fé. Não há espaço para dogmatismo, do qual houve em excesso ao longo do último século ou mais. Por um lado, há o dogmatismo daqueles que aceitam a estrutura da história antiga segundo os secularistas (por exemplo, as 30 dinastias de Maneto, embora com variações) como um dado, e tentam encaixar os dados bíblicos nela. Exemplos disso são Kitchen, ¹ Hoffmeier, ² Currid³ e Aling.⁴ Na minha opinião , isso tem sido um exercício de tentar encaixar a proverbial peça quadrada em um buraco redondo.
Outra vertente do dogmatismo consiste em tomar, por exemplo, o esquema revisado de história antiga de Velikovsky como ponto de partida definitivo — pelo menos na sua versão "desastralizada" por Courville 5 — e construir um esquema praticamente invertido em comparação com o esquema aceito. Os defensores dessa abordagem — e de outros tipos semelhantes de revisão drástica — podem ser tão inflexíveis em sua adesão quanto seus oponentes do lado mais "secular".
Na minha opinião, devemos analisar os dados com paciência, partindo do conhecido para o desconhecido, à luz das evidências bíblicas (determinadas por meio de exegese adequada), da arqueologia e dos textos antigos. Acredito firmemente que a cronologia egípcia aceita está grosseiramente inflada, não apenas em um período específico, mas em vários: o Período Dinástico Inicial; o Antigo Império e o Primeiro Período Intermediário; e certamente o Terceiro Período Intermediário. Portanto, o esquema precisa ser reduzido, mas em séculos no geral, e não apenas em alguns anos aqui e ali. Contudo, quaisquer conclusões devem ser provisórias se as evidências forem inconclusivas.
Para o primeiro milênio a.C., temos as evidências combinadas dos dados bíblicos e das listas de epônimos assírios ( listas limmu ). Embora a cronologia de Edwin Thiele possa precisar de alguns ajustes e refinamentos (por exemplo, a segunda metade do século VIII a.C. ainda é bastante imprecisa — e muito curta — no esquema de Thiele), o esboço básico não pode deixar de ser aceito. Tomando os dados assírios como ponto de partida, temos uma lista ininterrupta de anos até 911/912 a.C. , mas antes disso começam as incertezas, e quanto mais recuamos no tempo, mais essas incertezas aumentam. Mesmo entre os secularistas, existem as cronologias longa, média e curta, embora a "longa" esteja agora praticamente abandonada.⁶ Devemos então procurar correlações e sincronismos entre reis e eventos, mas isso não é fácil: da nossa perspectiva, poderíamos falar, por exemplo, de Salmanasar I e Hatushili III, mas os textos antigos não apresentam numerais romanos após o nome de um rei. Novamente, Muwatilli II lutou contra Ramsés II na Batalha de Kadesh no quinto ano do reinado deste último, mas esse sincronismo deixa em aberto a questão da posição cronológica de Ramsés II.
Do lado egípcio, é muito fácil apontar uma semelhança entre um nome na Bíblia e em um monumento egípcio, e então concluir que esses dois nomes se referem ao mesmo rei. Um exemplo óbvio é o Shishaq de 1 Reis 14:25 e o Shoshenq do Portal Bubastita. No entanto, ao compararmos o itinerário das conquistas desse rei na Palestina, conforme descrito no Portal Bubastita, com o relato em 1 Reis 14:25-26, percebemos que são bem diferentes: Shoshenq nunca chegou perto de Jerusalém. Seriam, então, as duas referências à mesma pessoa?
Um problema relacionado a este contexto diz respeito ao nome pelo qual um faraó egípcio era conhecido em nações estrangeiras e, aliás, pela população em geral. Como é sabido, a titulatura real tinha cinco nomes: o de Hórus, o de Nebty, o de Hórus Dourado, o de Nesu-bit ou prenome e o de Filho de Rá ou nome de nascimento. Podemos obter algumas informações sobre isso na carta de Ankh-hesen-amun, viúva do jovem rei Tutancâmon, a Šuppiluliuma dos hititas. Ela se refere ao seu falecido marido como Niphururiya — uma transcrição precisa em cuneiforme do prenome de Tutancâmon, Nebkheperure, mas não pelo seu nome de nascimento.⁷ Isso parece ter sido comum na diplomacia da época. Quanto às versões populares do nome de um faraó, é sabido que, por exemplo, Ramsés II era conhecido como Sessi, aparentemente um hipocorístico de seu nome de nascimento.⁸
Existem também as diversas listas de reis egípcios: Abidos, Karnak, Cânon de Turim, Pedra de Palermo (para o período inicial), para citar algumas, mas precisamos ter em mente o propósito dessas listas. Elas não foram elaboradas, é claro, para informar os historiadores dos séculos XX e XXI ! Eram, antes, declarações políticas; propaganda para proclamar a continuidade com seus ancestrais e, assim, a legitimidade de sua própria permanência no trono. Dito isso, porém, as evidências que contêm devem ser consideradas e levadas em conta.
Portanto, mais uma vez, as evidências devem ser analisadas e avaliadas, mas minha opinião é que, embora o esquema atual da história egípcia precise de alguns ajustes — às vezes ajustes radicais —, o esquema geralmente aceito pelos secularistas não pode ser descartado de imediato, nem drasticamente derrubado da maneira que os revisionistas radicais buscam fazer (como os seguidores de Velikovsky e Courville). A Bíblia deve ser, de fato, nossa posição fundamental, mas, ao mesmo tempo, precisamos ouvir atentamente os secularistas, sem necessariamente aceitar seus esquemas por completo.
Antes de prosseguir, a fim de familiarizar os não especialistas com a história antiga e permitir que compreendam melhor a linha de raciocínio aqui apresentada, descreverei os esquemas históricos convencionais, primeiro do Egito antigo e, em seguida, da Mesopotâmia e Anatólia antigas.
Com a morte do último Ramsés, os dias de glória do Novo Império ficaram definitivamente para trás, a economia do país estava em ruínas, invasores estrangeiros voltavam a marcar presença (desta vez pelos 'Povos do Mar'), e a Vigésima Dinastia deu lugar ao Terceiro Período Intermediário.
Até aqui, isso demonstra o esquema convencional da história egípcia e sua cronologia correspondente, mas, como mencionado acima, onde, nesse esquema, encaixamos Abraão, José, o Êxodo, o início do Israel e, por extensão, Davi e Salomão? Apesar dos enormes esforços e das intermináveis discussões entre estudiosos cristãos ao longo dos anos, não houve solução, a não ser destacar o "colorido egípcio" nas narrativas de José e do Êxodo, em particular. Esse tipo de discussão pode ser válido, mas não nos leva a identificar os faraós do período de José ou do evento do Êxodo. A única maneira de avançar é revisar o esquema convencional da história egípcia e reduzir a cronologia associada. Dessa forma, será possível estabelecer uma correspondência entre a Bíblia e os registros do antigo Egito.
Contudo, na outra extremidade do Crescente Fértil, encontram-se também os registros mesopotâmicos, que são tão importantes para esta tentativa de revisão quanto qualquer investigação sobre o Egito, visto que Abraão era originário de Ur, na Baixa Mesopotâmia, e Israel, em tempos posteriores, manteve contato tanto com a Alta quanto com a Baixa Mesopotâmia, sofrendo invasões de ambas. Assim, apresento aqui, mais uma vez, o esquema convencional da história mesopotâmica como prelúdio para destacar os principais problemas nele contidos.
Esquema convencional da história da Mesopotâmia 10
A fase inicial da história da Mesopotâmia manifesta uma rede de cidades-estado na Baixa Mesopotâmia, conhecidas coletivamente como Suméria, cada uma com seu próprio governo e frequentemente em guerra umas com as outras. De acordo com a lista de reis sumérios, essas cidades-estado datam do final do Grande Dilúvio, começando com Quis. Às vezes, uma cidade (por exemplo, Uruk) dominava, enquanto em outras ocasiões outras cidades (por exemplo, Lagash ou Ur) detinham a hegemonia, até que Sargão de Agade (Acádia) conquistou toda a região e expandiu-se para o norte. A Suméria também sofreu incursões de Elam e de povos das regiões montanhosas entre as duas. Esta tabela traça a cronologia convencional desde o Período Dinástico Inicial I (2900 a.C.) até o início do segundo milênio a.C., embora as datas, mesmo para os secularistas, sejam incertas.
Pontos a observar em relação à tabela
As datas à direita são as de Roux (1993), mas, mais recentemente, Kuhrt revisou para baixo muitas dessas datas mais convencionais. Por exemplo, Sargão da Acádia foi redatado para 2296–2240 e Naram-Sîn para 2213–2176. Sobre essa cronologia, ela observa: “os reis ainda governavam em Ágade na época em que Ur-Nammu, fundador de Ur-III, se estabeleceu no poder” .¹¹ Assim, as datas para esse período inicial são muito incertas e obscuras, assim como os sincronismos entre as várias cidades-estado. Essas primeiras dinastias certamente se sobrepuseram, como agora se sabe, e, de um ponto de vista bíblico, podem — e devem — ser ainda mais reduzidas para se adequarem a uma estrutura bíblica.
As duas tabelas não se coadunam de fato. Ao examiná-las, fica evidente que o Estado egípcio começa por volta de 3100 a.C. , enquanto a história da Mesopotâmia começa por volta de 2900 a.C. Mesmo os secularistas proclamam que “a história começa com a Suméria”.¹² A solução encontrada é recorrer a diversas culturas pré-letradas em cada extremidade do Crescente Fértil: Naqada I e II na extremidade egípcia; os períodos Halaf, Ubaid e Uruk na extremidade mesopotâmica, com períodos que se estendem pelo Calcolítico, Neolítico, Mesolítico e Paleolítico ao longo de muitos milênios. Contudo, todos esses períodos são baseados em métodos de datação e correlações duvidosas, além de pressupostos evolucionistas, que não abordarei aqui.
De acordo com a lista de reis sumérios, a realeza após o Dilúvio foi estabelecida inicialmente em Quis. Segundo Gênesis 10:8, Cuxe era o pai (ancestral?) de Ninrode, mas não se trata do mesmo Cuxe mencionado em 10:7, cujos descendentes habitaram o Norte da África e o Egito. Agora, com a mera diferença de uma vogal, Cuxe (ou Kush) torna-se Quis, o ancestral dos povos da Mesopotâmia, que dá nome à cidade fundadora. Assim, a lista de reis sumérios parece preservar essa tradição, ainda que de forma um tanto distorcida. 13
Outra questão diz respeito à posição do evento da Torre de Babel na cronologia da Mesopotâmia acima mencionada. Como grande parte da história antiga da Mesopotâmia é obscura e envolta em mitos e lendas, segundo fontes cuneiformes, é quase impossível, da perspectiva atual, estabelecer uma localização temporal precisa. Como argumentei em um artigo anterior sobre línguas antigas, ¹⁴ o sumério é apenas uma das inúmeras línguas que surgiram no Oriente Próximo na mesma época — todas sem relação entre si e todas extremamente complexas. Portanto, uma proposta provisória seria a época do surgimento do sumério (a menos, é claro, que se queira considerar o sumério como a língua original), ou seja, a época de Enmebaragesi de Kish. Consequentemente, é evidente que isso se daria no contexto de uma cronologia reduzida.
Nimrod é mencionado especialmente como o fundador do primeiro império mesopotâmico, que abrangia tanto a Baixa Mesopotâmia, ou seja, a Suméria, quanto o norte da Assíria (Nínive e Kalah). A partir dos registros cuneiformes, há dois possíveis candidatos: (i) Gilgamesh e (ii) Sargão da Acádia.
wikipedia.org
Figura 2. Antiga cidade suméria de Ur. Em primeiro plano, habitações residenciais; ao fundo, o famoso templo-torre (zigurate) de Nanna/Sîn, a divindade lunar.
A partir de certas inscrições em edifícios, da inscrição de Tummal e do poema épico “Gilgamesh e Agga”, sabemos que Gilgamesh foi (a) um rei histórico e (b) contemporâneo de Agga de Quis e Mesannepadda de Ur. Ele foi o herói supremo da lenda suméria por seus feitos e aventuras, mas nessa literatura ele se transformou em um deus-homem mítico, principalmente como um buscador da imortalidade na famosa Epopeia de Gilgamesh . 15 16Que Gilgamesh foi um herói poderoso, cujos feitos se tornaram proverbiais em toda a Mesopotâmia, é inegável, mas nenhum império como o descrito em Gênesis 10:10-12 foi ou pode ser atribuído a ele.
Sargão da Acádia é o outro candidato, muito mais provável, para Ninrode. Primeiro, Sargão (Šarru-kin: “o rei é legítimo”) é um nome de trono, não um nome pessoal, portanto é inútil tentar ligá-lo foneticamente a Ninrode. 17 uma compreensão adequada do hebraico gibbōr șayid (Gênesis 10:9). 18Se considerarmos Cuxe em Gênesis 10:8 como o ancestral de Ninrode (o que seria necessário mesmo considerando a identificação com Gilgamesh), então é bastante plausível identificar Sargão como Ninrode. Ele certamente conquistou toda a região da Baixa Mesopotâmia ("a terra de Sinar") e, em seguida, avançou para a Assíria, chegando até o norte do Levante e o Mediterrâneo, construindo assim o primeiro império conhecido na história da humanidade. Além disso, ele também se tornou um herói lendário por direito próprio, um guerreiro temível e implacável, como indica uma interpretação adequada do hebraico ( Gênesis 10:9 ).Assim, a Assíria ficou conhecida como "a terra de Ninrode" em tradições posteriores (cf. Miquéias 5:6 ), e ainda hoje o sítio da antiga Calá (em acádio, Kalhu) é conhecido como "Nimrud".
Período patriarcal: correlações propostas
Duas pistas surgem em relação ao período patriarcal: uma específica sobre Abraão; a outra geral em relação ao período como um todo.
Começamos com Abraão. Ele deve ser situado em Ur, na Baixa Mesopotâmia, um importante centro cultural da antiga Suméria, conhecida nas Escrituras como "a terra de Sinar". Alguns tentaram situá-lo no norte da Mesopotâmia, como Cyrus Gordon, ¹⁹ mas seus argumentos não são convincentes. Quanto à posição de Abraão no esquema cronológico acima, considerando que sua datação é de aproximadamente 1950 a.C. , ele pode plausivelmente ser situado na Terceira Dinastia de Ur, desde que a cronologia possa ser reduzida de forma que Ur III pertença ao período de 2000 a 1900 a.C. 550 a.C.Tal localização seria admirável, visto que este período foi o último — e o maior — da civilização suméria, quando sua cultura, organização social e poder político atingiram o ápice, e, humanamente falando, teria sido um lugar difícil de deixar. Somente um homem de fé em Deus, que buscava “uma cidade com fundamentos” ( Hb 11:10 ) e “uma pátria melhor” ( Hb 11:16 ), teria visto Ur como um navio afundando, como de fato era, já que desmoronou durante a vida de Abraão, conforme a sincronia aqui proposta. Depois disso, a civilização suméria desapareceu da história, enquanto Ur tornou-se praticamente inexistente, ressurgindo apenas brevemente no final do Império Neobabilônico, por volta de 550 d.C.
Além disso, há uma análise do período patriarcal em termos mais gerais, onde uma passagem pouco notada do livro de Jó fornece algumas evidências importantes. O livro de Jó, por consenso geral entre os estudiosos conservadores, é o livro mais antigo do cânone do Antigo Testamento. Tendo isso em mente, parece haver uma referência aos túmulos piramidais de reis e nobres em Jó 3:14-15 . O texto diz na versão NKJV:
“Com reis e conselheiros da terra, que construíram ruínas para si mesmos,
ou com príncipes que tinham ouro, que encheram suas casas de prata.”
A frase interessante aqui é a segunda metade do versículo 14, em hebraico, habbōnīm h o rābōt lāmō , que é melhor traduzida como “que construíram túmulos para si mesmos”. Hartley comenta o seguinte:
“Em apoio à interpretação de 'ruínas' como túmulos, há o termo paralelo 'casa' no versículo 15b (cf. 17:13; 30:23; Eclesiastes 12:5 , onde 'casa' representa o Sheol), e o uso dessa palavra em associação com 'a cova', o reino dos mortos em Ezequiel 26:20 . Nesse caso, Jó está aludindo particularmente à motivação que inspirou a construção deles, ou seja, acreditava-se que os habitantes desses monumentos... tinham uma existência mais pacífica na morte do que as massas que estavam vivas.” 20
Wikimedia Commons
Figura 3. Tijolo inscrito de Ur-Nammu, rei fundador da Terceira Dinastia de Ur.
Se Hartley estiver correto em sua análise, e especialmente se a equação ḥrm / ḥ a rābōt estiver correta, então as pirâmides egípcias, com todos os seus tesouros para a vida após a morte (em sua crença), são contemporâneas de Jó. No Antigo Império, a vida após a morte era de fato algo reservado à realeza e à nobreza, como o texto aqui claramente implica, ou seja, antes da 'democratização' da vida após a morte em períodos posteriores. 21Observe também os particípios em Jó 3:14-15 : os reis estão construindo túmulos, e os nobres estão enchendo suas casas de prata. Essas construções parecem indicar uma prática contemporânea à época de Jó, não algo de um passado distante.
Mas qual é a relação de Jó com Israel? Muitos estudiosos conservadores acreditam que a história de Jó pertence aproximadamente à época patriarcal, mesmo que sua composição seja posterior, como argumentado, por exemplo, no comentário de Gibson.<sup> 22</sup> Ele cita a ausência de qualquer referência à Lei Mosaica ou à aliança com Israel; depois, o uso constante do nome genérico para Deus, ' e loah , nos discursos (embora Shaddai , “Todo-Poderoso”, ocorra frequentemente), em oposição a Javé, que aparece apenas no Prólogo e no Epílogo. <sup>23</sup> Archer ecoa os mesmos argumentos e acredita ainda que tanto o Jó histórico quanto a composição do livro pertencem à era pré-mosaica, seja à era patriarcal ou durante a estadia egípcia.<sup> 24</sup> Se esse raciocínio estiver correto, então a era pré-mosaica ou patriarcal, a era de Jó, é contemporânea às pirâmides, pelo menos do final do Antigo Império.
Se o raciocínio acima parece um tanto tênue, trata-se simplesmente de seguir as pistas onde elas aparecem e de ir aonde elas podem levar, tarefa e procedimento do historiador.
Quanto a Abraão no Egito ( Gênesis 12:10-20 ), quando ele fez passar sua esposa Sarai por sua irmã (em parte verdade), não é possível dizer quem era aquele faraó, e qualquer tentativa de identificá-lo é especulação.
Conclusão
Resumindo o que foi dito até agora:
Os esquemas de cronologia do terceiro milênio a.C.A cronologia adotada pelos secularistas não se coaduna com o curto período de tempo de Gênesis 11 para o mesmo período; muito menos com as vastas eras arqueológicas de culturas pré-letradas propostas para o período anterior ao surgimento das cidades-estado sumérias. Visto que se sabe que várias das dinastias aparentemente sequenciais da lista de reis sumérios eram, na verdade, contemporâneas, os historiadores bíblicos deveriam buscar evidências de que essas supostas "culturas" sequenciais também eram contemporâneas entre si. Uma cronologia reduzida é essencial para a correlação da antiga Mesopotâmia com as Escrituras.
O esquema da cronologia egípcia requer compressão, e não apenas em uma área específica, para que se correlacione com um período de tempo reduzido para a Mesopotâmia e com a cronologia bíblica. O período Dinástico Inicial, o Antigo Império e os três períodos Intermediários precisam ser reduzidos, mas isso exigirá um trabalho sério por parte de uma equipe de historiadores e arqueólogos da antiguidade, trabalhando a partir de uma perspectiva bíblica.
Já existem indícios e sugestões de correlações e sincronismos nas Escrituras, que não só exigem uma cronologia reduzida, como também fornecem alguns pontos relativamente fixos para a reconstrução da cronologia antiga. Um artigo subsequente explorará esse aspecto mais a fundo.
Kitchen, KA, A Bíblia em seu Mundo , Paternoster, Exeter, Reino Unido, pp. 75–79, 1977; idem, Faraó Triunfante: A Vida e a Época de Ramsés II , Warminster, Aris & Phillips, pp. 70–71, 1982. Voltar ao texto .
Hoffmeier, JK, Israel no Egito: as evidências da autenticidade da tradição do Êxodo , OUP, Oxford, Reino Unido, 1996. Após extensa discussão, ele tende a favorecer um Êxodo raméssida, pp. 122–126. Voltar ao texto .
Currid, JD, Antigo Egito e o Antigo Testamento , Baker, Grand Rapids, MI, pp. 121–141, 1997. Sua posição é raméssida, de data tardia. Voltar ao texto .
Aling, CF, Egito e História Bíblica , Baker, Grand Rapids, MI, 1981. Ele adota uma data da Décima Oitava Dinastia, com Amenófis II como o faraó do Êxodo. Voltar ao texto .
Courville, DA, O Problema do Êxodo e suas Ramificações , Challenge Books, Loma Linda, CA, 1971. Ele identifica o faraó do Êxodo como Concharis ou Ka-ankh-Ra na Décima Terceira Dinastia. Voltar ao texto .
Ver Åstrom, P., Alto, Médio ou Baixo? , Atas de um Colóquio Internacional sobre Cronologia Absoluta realizado na Universidade de Gotemburgo, Gotemburgo, Suécia, 1987. Voltar ao texto .
Ver Bryce, T., The Kingdom of the Hittites , Oxford, p. 193, 1998, citando Güterbock, HG, The deeds of Suppiluliuma, as told by his son Mursili II, JCS 10:94 , 1956. Voltar ao texto .
Ver Rohl, D., A Test of Time , Arrow Books, Random House, Londres, pp.158–163, 1995. Voltar ao texto .
Por conveniência, segue PA Clayton, Crônica dos Faraós , Thames and Hudson, Londres, 1994. Outros egiptólogos podem apresentar datas ligeiramente diferentes, mas são essencialmente variações sobre o mesmo tema. Voltar ao texto .
Seguindo as tabelas cronológicas em G. Roux, Ancient Iraq , 3ª ed ., Penguin Books, Londres, 1992, mas também observando Kuhrt, A., The Ancient Near East: c. 3000–330 BC , Routledge, Londres, 1995, para datas revisadas. Voltar ao texto .
Assim como o título do livro de Kramer, SN, History Begins at Sumer: Thirty-Nine Firsts in Recorded History , University of Pennsylvania, Philadelphia, PA, 1956. Voltar ao texto .
Como também proposto por Van Gelderen, observado por Gispen, WH, Quem era Nimrod?; em: Skilton, JH (Ed.), A Lei e os Profetas JETS 56 (2):275–276, 2013. Retornar ao texto ., Presbiteriana e Reformada, Filadélfia, PA, pp. 208–229, 1974. Petrovich, D., discute este assunto detalhadamente e chega à mesma conclusão; veja Identificando Ninrode de Gênesis 10 com Sargão da Acádia por meios exegéticos e arqueológicos,
Ver Kramer, SN, Os Sumérios , Universidade de Chicago, Chicago, IL, pp. 45–49, 1963. Voltar ao texto .
Ao contrário de Gispen, ref. 13, n. 12, e dos outros autores que ele cita, pp. 209–211 e notas. Voltar ao texto .
Petrovich vê o nome como um 'disfemismo' (o oposto de um eufemismo), ref. 13, n. 12 e p. 277. Voltar ao texto .
Ver discussão de Petrovich, D., ref. 13, pp. 278–280. Voltar ao texto .
Gordon, CH, Abraão e os mercadores de Ura, J. Near Eastern Studies 17 :28–31, 1958. Hershel Shanks reabriu recentemente a questão da localização no norte em seu artigo, Ur de Abraão: O Papa está indo ao lugar errado? Centre for Online Jewish Studies , cojs.org/abrahams-ur-is-the-pope-going-to-the-wrong-place/. Millard, AR, respondeu a isso: Onde ficava Ur de Abraão? O caso da cidade babilônica, Biblical Archaeology Review 27 (3):52–53, maio–junho de 2001. Voltar ao texto .
Hartley, JE, O Livro de Jó , Eerdmans, Grand Rapids, MI, pp. 97–98, 1988. Em uma nota de rodapé, ele se refere à raiz árabe hrm , “estar deteriorado”, que os árabes usam para se referir às ruínas das pirâmides. Alguns estudiosos insistem que hi o rābōt é o equivalente hebraico de hrm . Voltar ao texto .
Callender, G., O renascimento do Reino Médio; em: Shaw, I. (Ed.), A História de Oxford do Antigo Egito , Oxford, Reino Unido, pp. 180–182, 2000. Voltar ao texto .
Gibson, ECS, O Livro de Jó , Publicado originalmente em 1899, reproduzido por Klock e Klock, Minneapolis, MN, pp. xix–xxi, 1978. Voltar ao texto .
No entanto, o nome aparece em Jó 12:9. Hartley explica isso como provavelmente um erro de copista, que substituiu a expressão mais comum “mão do SENHOR ” por “mão de Deus”. Por isso, alguns manuscritos hebraicos trazem “there ' e loah ” , em vez de YHWH . Veja Hartley, ref. 20, n. 4, p. 208. Voltar ao texto .
Archer, GL, Jr, O Livro de Jó , Baker, Grand Rapids, MI, pp.14–16, 1982. Voltar ao texto .
Perspectivas sobre a cronologia antiga e o Antigo Testamento — parte 2
Por Murray R. Adamthwaite
Publicado em 09 de maio de 2019 | Atualizado em 31 de maio de 2019
Como podemos começar a correlacionar a cronologia bíblica com dados externos à Bíblia?
É sabido que as datas para o primeiro milênio a.C. são bastante precisas e que o Cânon Epônimo Assírio contém um registro completo de anos que remontam a 912/911 a.C. No entanto, antes disso, a cronologia é bastante incerta. Para o Egito, o recurso tradicional tem sido o chamado "ciclo sótico", fixando as datas com base nas poucas referências astronômicas presentes nos registros egípcios. Contudo, o esquema preciso estabelecido por esse método começou a ruir nos últimos anos, e sérias contestações têm sido feitas à cronologia sótica. Em particular, as escavações de Manfred Bietak na região de Fakus, no Delta do Nilo, revelaram o que se assemelha muito ao assentamento israelita, mas muito anterior à cronologia tradicional, ou seja, às 12ª e 13ª dinastias . Das regiões mesopotâmica e síria, também surgiram sérias discrepâncias em relação ao final do segundo milênio, especialmente a partir dos textos de Emar, na região do Médio Eufrates. No total, as discrepâncias podem chegar a 250 anos.
freeimages.com
Em um artigo anterior, descrevi os esquemas convencionais de cronologia antiga para o Egito e a Mesopotâmia, a fim de servirem como pontos de partida para discussão e revisão. Tal revisão é certamente necessária para que haja correspondência com a cronologia bíblica, visto que o veredicto dos secularistas é de que não há tal correlação; portanto, as histórias bíblicas dos patriarcas, de Israel no Egito, do Êxodo e da Conquista, e até mesmo de Davi e Salomão, devem ser descartadas como meras lendas piedosas, sem fundamento histórico. Contudo, mesmo os secularistas estão dispostos a admitir que a Monarquia Dividida, conforme registrada nos livros de Reis, é histórica, o que nos leva a perguntar: “Onde, então, está o ponto de transição entre lenda e história?” A resposta a essa pergunta torna-se subjetiva e arbitrária.
Se, porém, partirmos do pressuposto de que as narrativas bíblicas constituem história sóbria, mas que, segundo o esquema cronológico convencional, faltam evidências dos eventos bíblicos, então a única conclusão possível é que a cronologia convencional deve ser modificada, ou mesmo alterada radicalmente. Essa é, portanto, a abordagem deste artigo, visto que há crescentes indícios de que o esquema convencional está equivocado até mesmo em seus próprios termos, quanto mais em relação à Bíblia. Contudo, cabe ressaltar que a abordagem aqui não visa a uma reconstrução completa da história antiga em comparação com a história bíblica, seja a de Courville ou a de Rohl. O objetivo é mais modesto: partir dos esquemas convencionais e, em seguida, demonstrar as dificuldades e inconsistências inerentes a eles.
José no Egito
Muito já se escreveu sobre essa questão, a qual dinastia ele pertenceria, mesmo que o faraó em si permaneça um mistério. Não pretendo abordar todos os aspectos neste artigo introdutório, mas há uma pista importante que aponta para um contexto histórico: quando José destituiu os nomarcas, ou governantes das províncias, do poder, centralizando o governo no palácio e reduzindo o povo à servidão, conforme registrado em Gênesis 47. Um evento precisamente semelhante ocorreu no século XII a.C. Dinastia , durante o reinado de Senusret III, como já argumentei em outro lugar.² Um trecho do que escrevi lá é pertinente :
Figura 1. Senusret III da XII Dinastia — o faraó de José?
“Sob o seu governo (isto é, Senusret III), os nomarcas perderam o seu poder tradicional em favor do vizir, que passou a dirigir a administração de todo o país. Battenfield argumenta que esta centralização do poder é precisamente a de José, de acordo com Gênesis 47. ” ³
As evidências das tábuas da fome de Emar ilustram ainda mais o recurso à escravidão por dívida por parte das famílias e da população em geral em tempos de severa fome. Nesses textos, um homem, em tempos de fome e aflição, vendia sua família como escrava a um oficial do templo (e, portanto, ligado ao rei) para manter a vida ( buluṭu : “manter vivo”); ou para cuidar dos que eram entregues ( palāḫuNormalmente significa “temer, reverenciar”, mas neste contexto significa “tratar com respeito, cuidar”. Isso é semelhante à expressão החיתנו em Gênesis 47:25 , onde os camponeses egípcios confessam a José: “você salvou nossas vidas”. .⁴
Embora a memória do próprio José possa ter sido deliberadamente apagada dos registros em um exercício de damnatio memoriae Dinastia , possivelmente ao reinado de Senusret III ou Amenemhet III.exercício — bastante típico do que vemos em outros momentos da história egípcia — o tipo de desenvolvimento em Gênesis 47 é algo que poderíamos esperar encontrar nos registros egípcios, e de fato é o caso. Dando a devida atenção a esse evento, a história de José pertence ao período posterior dos 12.
Outro ponto de referência nesta discussão diz respeito à 'Terra de Gósen' (em hebraico: Eretz Gošen ארץ גושן; Septuaginta: gē gesem; Gênesis 45:10 ; 46:28–29 ; 47:6 ). Novamente, para resumir o que escrevi em outro lugar, como segue:
De acordo com Gênesis 47:4 , 6 , o faraó permitiu que Jacó e sua família extensa se estabelecessem na “terra de Gósen”, e no versículo 11 fica claro que isso equivale à “terra de Ramsés”. Surge então a questão: algum desses nomes era usado para a região na época, especialmente o último? Visto que, em qualquer cronologia, a descida ao Egito precedeu o século XIX. Dinastia Raméssida, a referência deve ser retrospectiva ou anacrônica. 5 Mas como esse nome surgiu posteriormente para essa região? Essa questão pode ser respondida com relativa facilidade graças ao trabalho de Manfred Bietak e sua equipe (veja mais adiante): a capital dos Hicsos, Avaris, tornou-se, no período Raméssida, o porto da extensa nova capital e residência real de Pi-Ramesse. 6
Em outras palavras, o nome Ramsés em Gênesis 47:11 é usado anacronicamente: o nome foi atribuído posteriormente em referência à extensa obra de construção de Ramsés II, e o autor bíblico emprega esse nome a partir de sua perspectiva. No entanto, o local também testemunhou considerável atividade de construção em séculos anteriores, remontando ao Império Médio.
O nome moderno de Fakus, uma cidade a 7 km ao sul da atual Qantir, reflete claramente o nome ptolomaico Facusa para a mesma região, mencionado em sua obra Geographica , onde ele registra que o (vigésimo) nomo da Arábia tinha esta cidade como capital. Egéria, viajando para lá no século IV, observa igualmente que a cidade da Arábia é a terra de Gósen.⁷ Isso (en gē Gesem Arabias). Qantir é agora aceita como o local de Pi-Ramesse, e Facusa/Fakus é a cidade que deu nome à região em suas proximidades.Isso, por sua vez, reflete a Septuaginta de Gênesis 45:10 e 46:34 , onde se lê "na terra de Gesem da Arábia".
Registros egípcios mencionam Gšmt como a principal cidade da região, ⁸ que pode ser identificada como p3-ks em egípcio. O prefixo p3 é o artigo definido, e o elemento ks corresponde aos fonemas k e s no Gesem da Septuaginta . Em suma, a terra de Gósen pode ser identificada com a moderna Fakus e a região circundante, e nas imediações de Avaris e da posterior Pi-Ramesse, agora também identificada com segurança com a moderna Qantir.
Opressão e Êxodo
O primeiro ponto a considerar é a Opressão. Muitas vezes, os comentaristas assumem e falam do " faraófaraó da Opressão', e passam a identificá-lo com, por exemplo, Seti I (no modelo de data tardia) ou Tutmés III (no modelo convencional de data antiga). Mas isso está de acordo com uma exegese adequada de Êxodo 1 ? Considere o que está registrado: A passagem mostra uma série de iniciativas do palácio para controlar o crescimento da população israelita. A primeira delas é a construção das 'cidades-armazém' ( 'arey miskenōt ) para o faraó. Em seguida, seguem-se outras medidas: aumento do trabalho forçado (vv. 13-14) e infanticídio forçado (v. 22). Ora, cada uma dessas medidas exigiria tempo tanto para implementação quanto para avaliação. Enquanto isso, a população continua a crescer. No total, isso pressuporia um período de pelo menos 50 anos a um século, incluindo vários faraós. A noção, defendida pelos que consideram uma data tardia, de que as cidades foram construídas pouco antes da fuga dos israelitas do Egito ignora os dados do texto, pois exige que as cidades tenham sido construídas pouco antes do Êxodo. Para explicar: o reinado de 13 anos de Seti I (durante a Opressão), somado a alguns anos do reinado de Ramsés II, é insuficiente para o que seria um projeto de grande escala como a construção de cidades- armazém (ênfase minha). Como argumenta Bimson:
“As tradições bíblicas, ao falarem de uma servidão que se estendeu por vários séculos, separam claramente por um período considerável a primeira tarefa do povo (isto é, a construção das cidades) e sua eventual fuga do Egito.” 9
Outro aspecto do problema reside na duração da estadia no Egito. A visão convencional, baseada no texto massorético de Êxodo 12:40 , afirma que o período de permanência no Egito foi de 430 anos. Contudo, tanto a Septuaginta quanto o Pentateuco Samaritano, aparentemente seguindo uma tradição textual diferente, trazem a leitura de que “a permanência na terra do Egito e na terra de Canaã 10</sup>foi de 430 anos” [ênfase adicionada]. Isso reduziria a estadia no Egito precisamente pela metade, visto que a adição de notas de datação nas narrativas patriarcais resulta em um total de 215 anos. Também estaria em consonância com a declaração de Paulo em Gálatas 3:17 , de que a Lei foi dada 430 anos após Abraão. Lamentavelmente, nos fragmentos preservados do Manuscrito do Mar Morto 4Q22, um paleo-Êxodo em escrita paleo-hebraica, Êxodo 12:40 está ausente, frustrando, assim, qualquer tentativa de confirmar ou refutar essa hipótese. Contudo, de modo geral, visto que vários manuscritos bíblicos do Mar Morto corroboram as leituras da Septuaginta e da Bíblia Samaritana, seus testemunhos devem ser levados mais a sério do que tradicionalmente se tem feito. Consequentemente, uma estadia de 215 anos no Egito deve ser considerada com seriedade.
Quanto à presença de Israel no Egito, o trabalho de Manfred Bietak e sua equipe no Delta do Nilo (Tell el-Dab'a), mencionado anteriormente, foi um marco histórico. Os seguintes fatos emergem dessa investigação (utilizando a cronologia egípcia convencional):
Isso confirmou a existência de diversos assentamentos semitas na região desde a XII Dinastia até o final da XIII Dinastia e início do Segundo Período Intermediário. Embora a população semita ( aamu : “asiáticos”, para os egípcios) fosse esparsa desde o início do Médio Império, do final da XII Dinastia até a XIII Dinastia houve uma explosão populacional. Contudo, no início do Segundo Período Intermediário, os assentamentos cessam abruptamente, havendo um breve hiato ocupacional.
Durante o período de domínio dos Hicsos, o mesmo local tornou-se a capital dos Hicsos, Avaris, até sua expulsão após 100 a 150 anos de domínio.
Ramsés II expandiu esta antiga capital dos Hicsos, tornando-a sua capital do Delta, Pi-Ramesse, na 19ª Dinastia . 11
Esta região de Tell el-Dab'a era precisamente a 'terra de Gósen' do relato bíblico. 12
Esses fatos, e outros que poderiam ser mencionados, exigem que esses assentamentos semitas sejam identificados como Israel no Egito, mesmo que alguns dos habitantes fossem de outras partes do Levante e de regiões mais distantes. Esta última hipótese estaria de acordo com a "multidão mista" de Êxodo 12:38 . No entanto, tudo isso é muito antigo para a cronologia convencional, e, portanto, o cenário precisa ser explicado de outra forma. Contudo, isso tem se mostrado difícil, mesmo para os secularistas, como observa a Dra. Janine Bourriau em relação às descobertas de cerâmica de Bietak:
“Quando essas datas foram importadas para sítios na Síria-Palestina onde foram encontrados objetos semelhantes aos de Tell el-Dab'a, por vezes houve conflitos com a cronologia existente. Os acirrados debates daí resultantes, quando resolvidos, acabarão por exigir revisões radicais não só na datação das camadas de Tell el-Dab'a, mas também nos métodos utilizados para datar a Idade do Bronze Médio em toda a região do Mediterrâneo.” 13
De fato, haverá "revisões radicais" (ela não especifica exatamente o que são), mas suspeita-se que tais procedimentos, em última análise, visarão reforçar o esquema existente. Aguardamos para ver qual será o rumo da questão. Por ora, porém, essas discrepâncias evidenciam como o esquema atual — com suas evidências arqueológicas — é inconsistente consigo mesmo, para não mencionar os dados bíblicos.
Se, como acredito ser o caso, Bietak descobriu evidências claras da estadia de Israel no Egito, então a Opressão deve ser identificada com o período da 13ª Dinastia , e o faraó do Êxodo, seguindo Rohl, deve ser identificado como Dudimose, no final dessa dinastia. 14 Como Rohl também destaca, tal identificação está de acordo com a descrição de Maneto sobre o desastre que assolou o Egito nessa época:
“Tutimeu. Em seu reinado, por razões que desconheço, um sopro de Deus nos atingiu; e inesperadamente, das regiões do Oriente, invasores de raça obscura marcharam confiantes na vitória contra nossa terra.” 15
Tutimeu pode ser facilmente relacionado foneticamente a Dudimose, um rei posterior da 13ª Dinastia , enquanto a menção intrigante de "um sopro de Deus" pode plausivelmente se referir às pragas, uma devastação que deixou o Egito vulnerável a invasores estrangeiros. Nesse contexto, também se recorre, por vezes, às Admoestações de Ipuwer como descrição das condições caóticas após as pragas. Contudo, cautela é necessária: este texto pertence a um gênero de literatura "pessimista" de vários períodos e não apresenta nenhuma referência ou contexto histórico definido. De fato, a datação do texto é controversa: alguns o datam do final do Antigo Império, outros de algum momento do Médio Império. Nas palavras de Miriam Lichtheim:
“Em suma, as Admoestações de Ipuwer não só não têm qualquer relação com o remoto Primeiro Período Intermediário, como também não derivam de qualquer outra situação histórica.” 16
Conforme já foi dito, deve-se evitar recorrer a este texto em relação às pragas.
Além disso, considerando a devastação causada pelas pragas: explicar seus efeitos como um revés relativamente menor, ou como uma série de eventos naturais mais intensos do que o normal, dos quais o Egito se recuperou rapidamente, como frequentemente alegado pelos defensores da datação tardia convencional, é ignorar as evidências.<sup> 17Isso fica evidente, por exemplo, na narrativa da grande tempestade de granizo: “Havia granizo, e fogo que resplandecia continuamente no meio do granizo, tão severo como nunca houve na terra do Egito desde que se tornou uma nação” ( Êxodo 9:24 ). Portanto, se a sucessão de pragas relatada em Êxodo 7–12 teve o efeito total de devastar a agricultura, a economia, a capacidade militar e a mão de obra do Egito, podemos bem entender por que, como resultado, o país ficou indefeso e vulnerável à invasão e ocupação estrangeiras. Em outras palavras, de acordo com a interpretação aqui proposta, a sucessão de pragas provocou o colapso do Estado egípcio do Médio Império e, por sua vez, foi um dos fatores que mergulharam o Egito nas convulsões do Segundo Período Intermediário.
Conquista de Canaã
Neste ponto, antes de discutirmos a Conquista propriamente dita, é preciso mencionar uma questão importante que levanta um sério problema para a cronologia convencional e que justifica uma revisão drástica: as discussões de Yurco sobre os relevos de Karnak de Merneptá, que retratam a mesma campanha cananeia mencionada no texto de sua famosa "Estela de Israel".¹⁸ Segundo Yurco, esses relevos retratam uma campanha vitoriosa pela Palestina liderada pelo faraó Merneptá (convencionalmente entre 1212 e 1202 a.C. ), com um "registro de Israel" (quarta cena) que mostra um exército israelita equipado com carros de guerra com rodas de seis raios — muito antes (segundo a cronologia convencional) de os carros de guerra serem atestados biblicamente como parte da tecnologia militar de Israel.¹⁹ Além disso, os israelitas vestem as mesmas roupas urbanas que seus contemporâneos em Gezer e Ascalão. Claramente, então, um exército israelita capaz de enfrentar um faraó do Egito e de utilizar uma força de carros de guerra para tal, atesta uma nação israelita coesa — não meramente uma agregação de tribos, e uma que reside na terra há um período considerável. As observações de Yurco não apenas criaram uma séria anomalia no esquema convencional de datação tardia (lembre-se aqui que as conquistas de Davi foram realizadas por infantaria, não por carros de guerra), mas também apontam para uma data muito anterior para a chegada de Israel a Canaã — embora o próprio Yurco não perceba toda a importância de suas propostas.
Quanto às evidências arqueológicas da Conquista propriamente dita, embora eu não vá acrescentar nada às minhas discussões anteriores sobre os sítios na Transjordânia e o testemunho que eles trazem da Conquista, 20 um ponto precisa ser enfatizado: na própria Palestina, não há um padrão de cidades fortemente fortificadas e muradas durante os períodos da Idade do Bronze Final (IB), seja na IB I ou na IB II. Essa simples observação invalida tanto os esquemas convencionais de Data Tardia (19ª Dinastia , IB II) quanto os de Data Antiga (18ª Dinastia , IB I) daqueles estudiosos que adotam a cronologia secular existente do Egito e tentam combiná-la com os dados bíblicos. No entanto, essa rede de cidades fortificadas era precisamente o que assustava os israelitas quando eles cogitavam uma conquista da região do Negev:
“Contudo, o povo que habita aquela terra é forte, e as cidades são fortificadas e muito grandes… Não podemos subir contra aquele povo, porque é mais forte do que nós” ( Números 13:28 ).
“Nossos irmãos nos desanimaram, dizendo: ‘Os povos são maiores e mais altos do que nós; e as cidades são grandes e fortificadas até o céu’” ( Deuteronômio 1:28 ; veja também Deuteronômio 9:1 ).
Figura 2. Relevo de Karnak representando a Quarta Batalha.
Contudo, é no período anterior, o Bronze Médio (convencionalmente 2000–1550 a.C. ), que encontramos um sistema de cidades fortemente fortificadas por toda a Palestina. A última parte desse período, arqueologicamente Bronze Médio IIIC, deve ser onde situamos a Conquista. Isso, por sua vez, se encaixa perfeitamente com um Êxodo no mesmo período geral (embora 40 anos antes), como argumentado acima.
Um último ponto a este respeito é o cenário frequentemente repetido de camadas de destruição nas cidades da Palestina do final da Idade do Bronze, que, segundo o modelo convencional de datação tardia, são identificadas com a conquista de Josué. Mesmo aqueles que adotam o modelo convencional de datação antiga têm (com razão) contestado essa identificação, citando os dados bíblicos:
De acordo com Josué 6:24 ; 8:28 ; e 11:11–13 , apenas três cidades foram queimadas: Jericó, Ai e Hazor, respectivamente. As demais foram deixadas sobre seus montes; 21
Queimar cidades era contrário à política de conquista de viver nas casas e cidades dos cananeus conquistados, cf. Deuteronômio 6:10–11 ; 19:1 ; e Josué 24:13 .
Portanto, os níveis de destruição ou "incêndio" nas cidades israelitas são totalmente irrelevantes e não constituem evidência da conquista israelita.
As Cartas de Amarna e os primórdios de Israel
As Cartas de Amarna, descobertas em 1887 e, portanto, conhecidas há mais de um século, retratam uma Palestina sob o controle de uma série de pequenos reis em uma rede de cidades-estado, disputando entre si e negociando com o faraó egípcio. Assim, vemos Abdi-hepa governando em Jerusalém, Milkilim em Gezer, Shuwardata em Gate (?), Lab'ayu em Siquém, etc.<sup> 22 </sup> Os defensores da datação tardia proclamam isso como prova irrefutável de uma Palestina pré-conquista, <sup>23 </sup> onde reis cananeus controlavam a Palestina e Israel ainda não existia, enquanto os proponentes da datação antiga convencional ainda não se reconciliaram com as evidências desses textos. Alguns destes últimos ainda se apegam à teoria, agora insustentável, de que os Habīru dessas cartas representam as forças israelitas em avanço sob o comando de Josué, vistas de uma perspectiva oposta.<sup> 24</sup>
No entanto, essa conclusão simplista não é de modo algum necessária, pelas seguintes razões:
Lab'ayu como rei de Siquém apresenta um problema específico, visto que, de acordo com Josué 24:1, Israel se reúne em Siquém para a reafirmação de uma aliança, sem qualquer interferência dos cananeus locais. Além disso, Josué 10-11 referem-se, respectivamente, a uma campanha no sul e a uma no norte, mas não a nenhuma campanha nas terras altas centrais, onde Siquém se localizava. A impressão que se tem é que as terras altas centrais — posteriormente o território tribal de Efraim — estavam praticamente desprovidas de presença ou influência cananeia naquela época, portanto, o fato de Lab'ayu governar Siquém representa um grande problema. Contudo, essa pessoa não era rei de Siquém, e o único texto de Amarna que liga os dois (EA 289) foi mal interpretado no passado e não pode ser lido de forma a vinculá-lo a Siquém. É muito mais plausível que ele seja rei de Pela (URU). Pí-ḫi-lì ) na Transjordânia. Além disso, nem sequer podemos ter certeza de que KUR Ša-ak-mi em EA 289:23 se refere a Siquém. 25 Com Lab'ayu, e um suposto império Lab'ayan, removidos da região central montanhosa, o cenário está aberto para acomodar o início do Israel.
A lista de cidades e territórios ainda não conquistados em Juízes 1 coincide com as Cartas de Amarna, referindo-se precisamente às cidades que ainda estavam em mãos cananeias. 26</sup>As únicas anomalias aqui são Siquém — que, como argumentado acima, não era onde o cananeu Lab'ayu governava seu mini-império — e Laquis, que, como cidade próxima à fronteira com o território filisteu, poderia muito bem ter mudado de mãos diversas vezes durante o período dos Juízes, embora seja listada como uma das cidades derrotadas pela coalizão de reis em Josué 10:22-27 . Em 1 Samuel 7:14, há uma afirmação circunstancial de que o território perdido para os filisteus foi recuperado na época de Samuel: o mesmo poderia ser dito de outras localidades durante o período dos Juízes, visto que foi uma época de turbulência, com sucessivas opressões e perdas territoriais. 27</sup>
Embora diversos estudos tenham demonstrado de forma bastante conclusiva que o termo ḫapīru / ḫabīru (logograma SA.GAZ) é sociológico, denotando párias sociais e aventureiros, desprezados pelas populações majoritárias das cidades e vilas e relegados às margens da sociedade, uma conexão com os hebreus ainda é possível. 28 Embora qualquer tentativa de relacionar o termo foneticamente a 'hebraico' ( 'ibrī ) tenha sido abandonada, se ḫabīru fosse um termo geral de opróbrio, poderia plausivelmente ser aplicado, neste contexto e circunstância, aos hebreus sem qualquer relação linguística desse tipo — embora existam, de fato, problemas também nesse aspecto. 29
Monarquia primitiva
Gráfico 1. Neste gráfico, OB denota o período da Babilônia Antiga; 2ª Isin denota a 2ª Dinastia de Isin (Babilônia).Gráfico 2. O período abrangido pelos textos de Emar, mostrando os vários sincronismos, novamente de acordo com a cronologia convencional. Os nomes em negrito indicam os reis de Carquemis ou Emar com maior número de registros, ou, no caso de Melišihu, relevantes para a presente discussão.
Ao chegarmos aos dias de glória de Davi e Salomão, quando Israel dominava todo o Levante, do rio Eufrates ao rio do Egito ( 1 Reis 4:21 ), seria razoável esperar que as evidências no registro arqueológico fossem abundantes. A sua escassez levou estudiosos céticos à conclusão de que tal império jamais existiu; pelo menos, não como descrito em 2 Samuel e 1 Reis. 30No entanto, mesmo de um ponto de vista secular, é, no mínimo, difícil aceitar que toda a narrativa de 2 Samuel 8 a 1 Reis 11 seja pura ficção, como esses céticos querem que acreditemos.
A resposta, estou convencido, vem de uma reavaliação da cronologia do período em questão: não apenas para alinhá-la com as Escrituras, mas também consigo mesma. Aqui, os textos de Emar, no Médio Eufrates, lançam luz sobre as anomalias cronológicas no esquema convencional da cronologia mesopotâmica e síria (CS), 31 e apontam o caminho para uma nova posição de Davi e Salomão na história antiga. Se começarmos a procurar nessa nova localização temporal, certamente encontraremos um lugar para o império de Salomão e, de fato, evidências de sua existência.
Para melhor compreender o impacto das evidências de Emar, o gráfico a seguir apresenta primeiro a cronologia convencional (CC):
Para os propósitos desta discussão, o foco deve ser nos reinos hitita, mitani e assírio médio. A cronologia convencional, como visto no gráfico 1, mostra os estágios finais do Reino Mitani como contemporâneos à ascensão da Assíria Média; o último contato conhecido da Assíria com Hanigalbat (ou seja, Mitani) foi com Sattuara II e Salmanasar I, quando este último “invadiu e destruiu o reino apoiado pelos hititas”. 32 No entanto, os textos de Emar parecem condensar esses sincronismos em uma escala de tempo muito mais curta, como se pode observar ao considerar as seguintes anomalias:
Problema 1
Cada epônimo em Emar abrangia dois anos (em oposição a um ano na Assíria), e os que chegaram até nós cobrem um período total de 34 anos. Sendo generosos, poderíamos acrescentar, no máximo, cerca de 45 anos referentes à carreira dos escribas, totalizando 80 anos. 33 Portanto, é necessária uma compressão considerável em relação aos 130 anos da cronologia convencional apresentada por Arnaud, o epigrafista original dos textos. 34
Problema 2
Segundo esse esquema, Talmi-Tešub de Carquemis não coincide com Melišīhu (1188–1174 a.C. ), o último rei cassita da Babilônia, mas de acordo com as evidências de Emar, coincide. 35
Problema 3
Emar enfrentou um inimigo em seus últimos dias, a saber, “o rei dos Hurri” (isto é, os Hurri do reino de Mitanni). Mas, como visto acima, quando Emar chegou à sua fase final, o reino Hurri já havia sido completamente conquistado e desaparecido da história. O inimigo agora, segundo o esquema convencional, era a Assíria, mas embora vários textos de Emar mencionem “um ano de angústia e guerra”, o inimigo é ou os Hurri ou um povo misterioso chamado țarwu (Hurri?), enquanto os textos são completamente omissos quanto à Assíria. 36
Figura 3. Texto emar. Respectivamente, anverso (esquerda), descrevendo a invasão hurrita e sua repulsão, e reverso (direita).
Problema 4
Em seguida, temos a tabuleta nº 26 (figuras 3A e 3B), datada do segundo ano de Melišihu da Babilônia, o último dos reis cassitas, convencionalmente datado de 1187 a.C. No entanto, este rei é cerca de 40 a 50 anos posterior aos reis emaritas, considerando os sincronismos atestados com os vice-reis de Carquemis, o último dos quais é Talmi-Tešub. Alguns estudiosos, diante da dificuldade, sugeriram que esta tabuleta pode ser uma intrusão de uma fase posterior, mas a arqueologia do conjunto não permite essa hipótese. A única alternativa é revisar a cronologia. Repito aqui a conclusão a que cheguei em minha tese publicada:
“Toda a cronologia do século XIII (deve) ser drasticamente revisada para baixo para atender a este terminus ad quem . Isso envolveria uma drástica 'compressão' das cronologias relativas do período: Assírio Médio, Cassita Tardio, Hitita Tardio, para encaixá-las em menos de um século! Tal reformulação dos esquemas aceitos é aqui proposta como uma opção séria, e embora tal revisão não deva ser baseada apenas na evidência de um único sítio arqueológico, os textos de Emar devem ter permissão para apresentar seu próprio testemunho.” 37
Contudo, reduzir a cronologia em 40 a 50 anos pode não parecer muito quando, no caso do Egito, defendo uma redução de cerca de 200 anos. Entretanto, embora a anomalia relativa a Melišihu seja da ordem de 40 a 50 anos, a de Emar em relação ao reino de Mitanni é provavelmente maior, da ordem de talvez mais de 100 anos. O ponto principal a ser compreendido aqui é o de um valor mínimo em relação às evidências de Emar. A realidade pode ser muito maior. Faço duas observações a esse respeito:
As evidências apresentadas acima já indicam a existência de anomalias na cronologia convencional, da ordem de 150 a 200 anos no início do segundo milênio (Egito) e de cerca de 60 a 100 anos ou mais no final (Síria). A cronologia convencional não consegue acomodar essas anomalias, o que, por sua vez, serve como um indicador ou sinal de que a cronologia do segundo milênio precisa de uma revisão mais aprofundada, e novas evidências poderão confirmar essa necessidade.
Mesmo o material acima apresentado sobre Emar não foi aceito pelos historiadores tradicionais, o que demonstra que até mesmo revisões de pequena escala (se é que podem ser consideradas como tal) enfrentam uma árdua batalha para serem aceitas.
Figura 4. Tabuleta 42 do corpus de Emar. Respectivamente, anverso (esquerda) e reverso (direita).
Resumo das evidências da Emar
O período total abrangido pelos reizinhos de Emar deve ser reduzido para cerca de 60 ou 70 anos, no máximo 80; mas não para os 130 anos exigidos pelo esquema convencional ou por Arnaud e outros.
As evidências de Emar revelam dados cronológicos que o esquema convencional não consegue explicar, ou seja, em relação a Mitanni e aos hurritas, e estão em desacordo consigo mesmo.
Implicações para a cronologia bíblica
Além de estar em desacordo consigo mesma, a evidência de Emar também mostra que o esquema convencional da Mesopotâmia-Síria no final do segundo milênio está em desacordo com os dados das Escrituras, conforme interpretados atualmente. Considere, por exemplo, a cena em 1 Reis 10:29 , onde Salomão negociava com os reis arameus e os reis hititas. Se levarmos em conta a evidência de Emar e, assim, condensarmos a cronologia do período hitita tardio, eliminando a "Idade das Trevas" nos gráficos 1 e 2 acima (o que a evidência de Emar também sugere fortemente, mas o espaço me impede de detalhar). 38 ), temos um cenário em que Salomão pertence ao período Hitita Tardio, ao qual também pertence o período Aramaico Inicial (novamente, a evidência de Emar também indica isso, mas o espaço me impede de discutir aqui 39 ). É nesse período Hitita Tardio/Aramaico Inicial, arqueologicamente a fase do Bronze Final II, que, acredito firmemente, encontraremos Salomão. 40
Resumo geral
A discussão acima buscou simplesmente destacar anomalias na cronologia convencional em vários pontos, mas não propôs uma estrutura revisada. No entanto, deve ficar evidente que a cronologia do Antigo Oriente Próximo, em particular do terceiro e segundo milênios a.C. , seja no Egito, na Mesopotâmia ou na Anatólia, encontra-se em certa desordem e necessita de uma revisão séria. O trabalho de Bietak no Delta do Nilo, as evidências de Emar no Médio Eufrates, os relevos de Karnak e a reavaliação dos textos de Amarna apontam nessa direção, embora nem sempre com a mesma intensidade em cada caso. Tal revisão, portanto, traria os eventos bíblicos do reino da ficção para o mundo da realidade concreta. Outras questões decorrentes desses dados serão exploradas em artigos subsequentes.
Ver Adamthwaite, M., Luz arqueológica sobre o Antigo Testamento; em: Baker, D. (Ed.), The Face of Old Testament Studies ( FOTS ), Baker, Grand Rapids, MI, pp. 75–78, 1999. Voltar ao texto .
Adamthwaite, ref. 2, p. 77. A referência a Battenfield é ao seu artigo, Uma consideração sobre a identidade do faraó de Gênesis 47 . J. Evangelical Theological Society 15 :77–85, 1972. Voltar ao texto .
Veja também Hurowitz, VA, A escravização dos egípcios por José ( Gênesis 47:13–26 ) à luz dos textos sobre a fome de Emar, Revue biblique 101 :355–62, 1994. Voltar ao texto .
Veja Bimson, JJ, Redating the Exodus and Conquest Voltar ao texto ., Almond Press, Sheffield, Reino Unido, p. 39, 1981, que vê a referência a Ramsés em Gênesis 47:11 como retrospectiva, “já que a descida de Jacó ao Egito deve ter precedido o reinado do primeiro Ramsés”.
Bietak, M., Avaris: A capital dos hicsos , Museu Britânico, Londres, p. 82, 1995. Voltar ao texto .
Wilkinson, J., (Ed. e trad.), Viagens de Egéria à Terra Santa , Aris & Phillips, Warminster, pp. 100–101, 1981. Este 20º nomo , chamado Arábia na época helenística e posteriormente, era conhecido como Sopdu na época faraônica. Veja Baines, J. e Malek, J., Atlas do Antigo Egito , Equinox, Oxford, pp. 175–176, 1984. Voltar ao texto .
Alguns egiptólogos interpretaram os sinais como Šśmt , mas Naville (Naville, E., The Geography of the Exodus, J. Egyptian Archaeology 10 :28–32, 1924 ) argumentou de forma convincente contra essa interpretação. Veja Adamthwaite, ref. 2, p. 73. Voltar ao texto .
Veja também Viccary, M., Cronologia bíblica: nossos tempos estão em Suas mãos , J. Creation 21 (1):62–66, 2007; Austin, D., Cronologia dos 430 anos de Êxodo 12:40 , J. Creation 21 (1):67–68, 2007. Viccary defende a visão de que o texto massorético, como está, pode ser interpretado como uma estadia egípcia de 215 anos, sem recorrer à Septuaginta, p. 64. Outro ponto a ser considerado é que os rabinos judeus aparentemente defendiam uma estadia egípcia de 215 anos, mas isso seria assunto para um artigo à parte. Voltar ao texto .
Uma dificuldade adicional para o modelo convencional de datação antiga (como acima) é que as claras evidências arqueológicas indicam que Pi-Ramesse/Qantir estava desocupada durante a 18ª Dinastia . Veja Bietak, ref. 6, p. 273; Baines e Malek, ref. 7, p. 176; Shea, WH, Exodus, date of, The International Standard Bible Encyclopedia 2 :231, 1982, relatando o trabalho de Bietak em Tell el-Dab'a. Retornar ao texto .
Bietak, ref. 6, caps. ii–vii. Ver também Bourriau, J., O Segundo Período Intermediário; em: Shaw, I. (Ed.), A História de Oxford do Antigo Egito, Oxford, pp. 186–195, 2000. Voltar ao texto .
Bourriau, ref. 12, pág. 190. Ver também Bietak, M. e Höflmayer, F., Introdução : Cronologia alta e baixa , Verlag der Österreichischen Akademie der Wissenschaften , Áustria, pp.
Rohl, ref. 1, pp. 281–284. Ou talvez outro faraó do final da 13ª Dinastia . Seja como for, a 13ª Dinastia permanece um mistério em grande medida. Voltar ao texto .
Waddell, WG (trad.), Manetho , Loeb Classical Library, Harvard University, Cambridge, MA, p. 79, 1940. Voltar ao texto .
Lichtheim, M., Literatura do Antigo Egito , vol. I, Universidade da Califórnia, Berkeley, p. 150, 1975. Voltar ao texto .
Veja a discussão dessa visão de 'fenômenos naturais' em Currid, JD, Ancient Egypt and the Old Testament , Baker, Grand Rapids, MI, pp. 104–107, 1997. Currid então continua a discutir a posição mais recente de estudiosos críticos de que as narrativas das pragas são meramente 'criações literárias', pp. 107–108. Kitchen, KA, um adepto do Êxodo Ramessida, em seu Pharaoh Triumphant , Aris & Phillips, Warminster, p. 71, 1982, declara: “As pragas e perdas do ano (do Êxodo) rapidamente se tornaram apenas uma lembrança desagradável a ser apagada da mente, e qualquer lição que elas ensinassem logo se perdia.” Retornar ao texto .
Yurco, FJ, A campanha cananeia de Merneptá, The Journal of the American Research Center in Egypt (JARCE) 23 :189–215, 1986. Ver também idem, Yurco, FJ, Imagem de israelitas de 3.200 anos encontrada no Egito, Biblical Archaeology Review (BAR) 16 (5):20–38, 1990; p. 34; depois o desafio de Rainey, AF, com uma resposta de Yurco, BAR 17 (6):56–61, 1991. Voltar ao texto .
Observe como Rainey e Yurco (respectivamente) notam e tentam explicar o problema que isso representa para a cronologia convencional, Rainey e Yurco, pp. 59, 61. A primeira menção atestada de carros como parte da força militar de Israel encontramos em 1 Reis 1:5 e 4:26 . Voltar ao texto .
Cf. discussões em Adamthwaite, ref. 2, pp. 82–84. Voltar ao texto .
Por exemplo, veja Aling, CF, Egypt and Bible History , Baker, Grand Rapids, MI, p. 89, 1981. Voltar ao texto .
Ver Aharoni, Y., The Land of the Bible , ed. rev., Burns and Oates, Londres, pp. 169–176, 1979. Voltar ao texto .
Embora para Aharoni a Conquista comece apenas após o período Amarna, ele vê a penetração Habiru/'Apiru durante o período Amarna como uma chegada anterior de certas tribos hebraicas num cenário de 'Êxodo dividido', Aharoni, ref. 22, pág. 191. Voltar ao texto .
Ver Wood, L., A Survey of Israel's History , ed. rev. por O'Brien, D., Zondervan, Grand Rapids, MI, pp. 82–84, 1986; Archer, GL, A Survey of Old Testament Introduction , Moody, Chicago MI, pp. 265–271, 1974. Observe também, a este respeito, a discussão de Kline, M., The Habiru: kin or foe of Israel ? Westminster Theological J. ( WThJ) XX :60–68,1957. Retornar ao texto .
Ver Adamthwaite, M., Lab'aya's connection with Shechem Reassessed, Abr-Nahrain 30 :1–19; pp. 8–12, 1992. O apoio à minha leitura das linhas relevantes em EA 289 veio de Anson F. Rainey em uma visita à Universidade de Melbourne em 2002, quando ele proferiu uma palestra especial sobre as Cartas de Amarna e, em particular, sobre EA 289. Apoio parcial para minha tese sobre Lab'ayu veio de um cilindro com inscrições cuneiformes recentemente recuperado em Beth-Shan; ver Horowitz, W., The Amarna age inscribed clay cylinder from Beth-Shean, Biblical Archaeologist 60 :97–102, 1997. Retornar ao texto .
Um ponto também observado por Kline, ref. 24, p. 66. Voltar ao texto .
Este ponto será desenvolvido mais detalhadamente em um artigo futuro. Voltar ao texto .
A literatura sobre este assunto é considerável, mas veja, por exemplo, Greenberg, M., The Hab/ piru , American Oriental Series 39, New Haven, American Oriental Society, 1955; Kline, ref . 24, mas também as primeiras publicações em WThJ XIX :1–24, 1956; 170–184; e, mais recentemente, Rowton, MB, Dimorphic structure and the problem of the 'apirû-'ibrīm ', J. Near Eastern Studies (JNES) 35 :13–20, 1976; Na'aman, N., Habiru and Hebrews: the transfer of a social term to the literary sphere, JNES 45 :271–288, 1986. Voltar ao texto .
Veja a discussão de Kline, ref. 24, pp. 61–63, para um esboço dos problemas envolvidos em qualquer tipo de identificação entre Habīru e Hebraico. Minha opinião é que esses problemas não são insuperáveis, mas, mesmo assim, é preciso levar em conta todas as dificuldades relevantes. Voltar ao texto .
Ver Knoppers, GN, O estudo histórico da monarquia: desenvolvimentos e desvios, em Baker e Arnold, ref. 2, p. 215, e nota 34. Voltar ao texto .
Como por exemplo, em Bryce, T., Ancient Syria; A three thousand year history , Oxford University Press, New York, pp. 332–334, 2014. Voltar ao texto .
Ver Wilhelm, G., Os Hurrianos , Warminster, Aris & Phillips, p. 40, 1989, embora com algum ceticismo em relação às afirmações de Salmanasar; Bryce, ref . 31, p. 83; e também Bryce, T., O Reino dos Hititas , Oxford University Press, Nova Iorque, pp. 303–304, 1998, onde ele observa o ceticismo de Wilhelm, mas ainda insiste que Salmanasar eliminou o que restava do reino de Mitanni. Voltar ao texto .
Ver Adamthwaite, M., tese de doutorado, Emar Hitita Tardio , Louvain, Peeters, pp. 16–25, 2001. Voltar ao texto .
Ver Arnaud, D., Les textes d'Emar et le chronologie de la fin du Bronze Récent, Syria 52:89 , 92, 1975. Ver também a discussão na minha tese, ref. 33, pp. 3–4 e notas 2 e 3. Voltar ao texto .
Adamthwaite, ref. 33, p. 75. Veja o capítulo completo (parte I, cap. 5) para uma discussão completa. Voltar ao texto .
Este texto diz respeito à descoberta do palácio hilāni neoassírio padrão , em Emar, datado ostensivamente do período hitita tardio, século XIII a.C. , em uma localização cronológica bastante incomum . Veja Margueron, J., Un <<hilāni>> à Emar; em: Freedman, DN, Archaeological reports from the Tabqa Dam project, Annual of the American Schools of Oriental Research 44 :153–176, 1977. Veja também a discussão em Adamthwaite, ref. 33, pp. 201–203. Voltar ao texto .
Sobre este assunto, veja meu capítulo, Movimentos Aramaicos; em: Adamthwaite, ref. 33, pp. 273–278. Voltar ao texto .
Conforme também proposto em James, P., Centuries of Darkness , Pimlico, Londres, 1992. Voltar ao texto .
Publicado em 06 de outubro de 2011 | Atualizado em 11 de maio de 2022
Longe de ser uma questão secundária, a escala temporal é central para o evangelho, porque visões conciliadoras colocam a morte antes da Queda.
Frequentemente, as pessoas desafiam os criacionistas bíblicos com comentários do tipo: "Eu acredito que Deus criou e não acredito na evolução, mas Ele poderia ter levado bilhões de anos, então qual é o problema com a idade da Terra?" Alguns afirmam que a ênfase em "6 dias literais, há 6.000 anos" chega a afastar as pessoas da fé, então "Por que ser tão dogmático? Por que enfatizar tanto algo que não é uma questão de salvação?"
Pode parecer surpreendente que concordemos — até certo ponto. A escala de tempo em si não é a questão importante. Então, por que a CMI a enfatiza? É importante porque a questão, em última análise, se resume a: "A Bíblia realmente significa o que diz claramente?". Portanto, isso afeta diretamente a confiabilidade das Escrituras. Assim, fazer concessões com longos períodos de tempo também prejudica seriamente toda a mensagem do Evangelho, criando crises de fé para muitos, bem como enormes problemas para a evangelização.
As implicações de uma escala de tempo de longa duração.
Primeiramente, precisamos entender a origem do conceito de uma Terra antiga. A ideia de milhões ou bilhões de anos simplesmente não se encontra em nenhum lugar das Escrituras; é um conceito derivado de fora da Bíblia. Em 1830, Charles Lyell, um advogado escocês, lançou seu livro Princípios de Geologia . Ele afirmou que um de seus objetivos era “libertar a ciência [da geologia] de Moisés”.¹ Ele baseou suas ideias nas de outro geólogo, James Hutton, que defendia uma interpretação uniformitarista da geologia mundial. Lyell argumentava que as milhares de camadas sedimentares (depositadas pela água ou algum outro fluido em movimento) por toda a Terra eram o resultado de processos longos, lentos e graduais ao longo de milhões ou bilhões de anos (em vez dos processos do Dilúvio de Noé). Ele acreditava que os processos observados no presente deveriam ser usados para explicar a história geológica da Terra. Assim, se atualmente observamos rios depositando sedimentos a uma taxa média de, digamos, 1 mm (4/100 de polegada ) por ano, então uma camada de rocha sedimentar, como arenito, com 1.000 metros (3.300 pés) de espessura deve ter levado cerca de um milhão de anos para se formar. Essa premissa de que "o presente é a chave para o passado" (e suas variantes) é um dos pilares da geologia moderna. Ela implica a rejeição do relato bíblico de um cataclismo aquático global. Os milhões de anos atribuídos às várias camadas da " coluna geológica " foram adotados muito antes do advento dos métodos de datação radiométrica — bem antes mesmo da descoberta da radioatividade.
Imagem por Daniel Smartt
Mas eis o problema teológico. Essas camadas rochosas não contêm apenas rochas ou grânulos. Elas contêm fósseis. E esses fósseis são evidências indiscutíveis de morte — e não apenas de morte, mas também de carnivoria, doenças e sofrimento. Há restos mortais com marcas de dentes e até mesmo animais fossilizados no processo de se alimentarem de outros animais. Há evidências de doenças, cânceres e infecções; e sofrimento geral causado por ferimentos, ossos quebrados, etc. Biblicamente, entendemos que essas coisas só começaram a acontecer após a Queda . Mas, devido às genealogias detalhadas da Bíblia, não há como o Adão bíblico ter existido milhões de anos atrás, antes que a morte e o sofrimento começassem a ocorrer na escala de tempo uniformitarista. A implicação da crença na longa idade é que Deus ordenou a morte antes da Queda do homem, mas a Bíblia afirma claramente que foram as ações de Adão que trouxeram a morte ao mundo ( Romanos 5:12 ).
O deus de uma terra antiga
A ideia de que a morte estava presente na criação antes da Queda tem implicações importantes para o caráter de Deus. O mesmo problema surge se alguém pensa que Deus usou a evolução para criar. A evolução é um processo aleatório e dispendioso que exige a morte de milhões de organismos "inaptos". Incontáveis formas de transição teriam surgido, apenas para sucumbir como vítimas na grande marcha "para a frente". Em algum momento, esse Deus supostamente "bom" ordenou uma loteria da morte que finalmente resultou nos seres humanos, e então Deus olhou para os seus portadores da imagem, em pé sobre camadas e mais camadas de rochas repletas dos restos mortais de bilhões de seres vivos, e proclamou que toda a sua criação — juntamente com as evidências de toda a morte e sofrimento envolvidos na sua criação — era "muito boa" ( Gênesis 1:31 ). Portanto, podemos ver que longas eras não se encaixam na visão bíblica, independentemente de alguém acreditar ou não na evolução.
Em resumo, a idade da Terra foi determinada a partir das camadas rochosas, que contêm fósseis, os quais indicam que a morte, o sofrimento e as doenças existiam antes da Queda. A Bíblia é clara ao afirmar que não havia morte antes de Adão ( Romanos 5:12 ).
Alguns supostos 'especialistas' tentam contornar essa 'muito boa' questão dizendo que a Queda causou apenas morte e doenças na humanidade . Isso não pode ser verdade. Para começar, Romanos 8:19-22 ensina claramente que a maldição da morte e do sofrimento que se seguiu à Queda de Adão afetou "toda a criação", ou seja, todo o universo físico.
Mas mesmo que deixemos isso de lado por uma questão de argumentação, há outro problema, porque temos restos humanos que são "datados" como tendo centenas de milhares de anos. Isso é muito anterior a qualquer possível data bíblica para Adão, que o situa no Jardim do Éden há cerca de 6.000 anos. Muitas posições conciliadoras consideram esses restos mortais como sendo de "pré-adâmicos" — animais não humanos sem alma. Mas esses esqueletos estão dentro da variação normal da espécie humana. E os neandertais, por exemplo, mostram sinais de arte, cultura e até religião. E recentemente, o sequenciamento do DNA neandertal mostrou que muitos de nós carregamos genes neandertais — ou seja, somos da mesma espécie criada. Chamá-los de "animais não humanos" parece totalmente artificial para salvar o antigo sistema de crenças.
Além disso, Romanos 5:12 afirma que “o pecado entrou no mundo por um só homem, e pelo pecado a morte; assim, a morte passou a todos os homens, porque todos pecaram”. Não há indicação de que a Queda tenha causado apenas a morte humana . Distorcer a interpretação de Romanos 5 para dizer que a morte se limitou aos humanos significaria que o pecado de Adão trouxe apenas uma Queda parcial à criação de Deus; no entanto, Romanos 8:19-20 nos diz que toda a criação geme sob o peso do pecado e está sujeita à futilidade. E Gênesis 3:17-19 nos diz que a própria terra foi amaldiçoada, de modo que produziu espinhos e cardos.² Se apenas uma Queda parcial tivesse ocorrido, por que Deus destruiria toda a criação para trazer uma nova, em vez de uma restauração parcial? Por que não restaurar apenas os humanos, se o restante da criação ainda é “muito bom”?
A morte, o último inimigo.
Uma parte central do Evangelho é que a morte é o último inimigo a ser destruído ( 1 Coríntios 15:26 ). A morte irrompeu num mundo perfeito por causa do pecado, e é tão séria que a vitória de Jesus sobre a morte não pode ser totalmente manifestada enquanto houver um único crente na sepultura. Será que esperam que acreditemos que algo que os autores bíblicos descreveram como inimigo foi usado ou supervisionado por Deus durante milhões de anos e foi chamado de "muito bom"?
Uma parte fundamental do Evangelho é a esperança que temos na Ressurreição e na restauração da criação ao seu estado original de perfeição. A Bíblia é clara sobre os Novos Céus e a Nova Terra como um lugar onde não há carnivoria, morte, sofrimento ou pecado ( Isaías 65:17-25 ; Apocalipse 21:1-5 ). Mas como isso pode ser chamado de restauração se tal estado nunca existiu?
Um sacerdote anglicano evolucionista fez um bom resumo do que significa aceitar a morte antes da Queda para a teologia cristã:
“...Os fósseis são os restos de criaturas que viveram e morreram por mais de um bilhão de anos antes do surgimento do Homo sapiens. A morte é tão antiga quanto a própria vida, por uma fração de segundo. Poderia, portanto, ser o castigo de Deus pelo pecado? O registro fóssil demonstra que alguma forma de mal existiu ao longo do tempo. Em grande escala, é evidente em desastres naturais. ... Em escala individual, há ampla evidência de doenças dolorosas e incapacitantes e da atividade de parasitas. Vemos que os seres vivos sofreram ao morrer, com artrite, um tumor ou simplesmente sendo devorados por outras criaturas. Desde o início dos tempos, a possibilidade de vida e morte, bem e mal, sempre existiu. Em nenhum momento há qualquer descontinuidade; nunca houve um tempo em que a morte apareceu, ou um momento em que o mal mudou a natureza do universo. Deus fez o mundo como ele é... a evolução como instrumento de mudança e diversidade. As pessoas tentam nos dizer que Adão tinha um relacionamento perfeito com Deus até pecar, e tudo o que precisamos fazer é nos arrepender e aceitar Jesus para restaurar esse relacionamento original. Mas a perfeição como esta nunca existiu. Nunca houve um mundo assim. Tentar voltar a ele, seja na realidade ou espiritualmente, é uma ilusão. Infelizmente, ainda é central em muitos sermões evangélicos.” 3
Assim, podemos agora perceber a ladeira escorregadia que se segue se considerarmos bilhões de anos com ou sem evolução, pois isso coloca a morte e o sofrimento antes da Queda. Seu corolário lógico é que também coloca o mal antes da Queda (que, em sua visão, já não existe mais, visto que não havia de onde cair). E, nesse processo, elimina-se a esperança de um retorno a um estado perfeito, já que não pode haver retorno ao que nunca existiu. O próprio Evangelho foi destruído nesse processo.
Então, do que Jesus veio nos salvar, senão da morte, do sofrimento, do pecado e da separação de Deus? O que fazemos com passagens como Hebreus 9:22 , que diz: “… a lei exige que quase tudo seja purificado com sangue, e sem derramamento de sangue não há remissão”, se a morte e o derramamento de sangue ocorriam como processos “naturais” por milhões de anos antes de Adão? Se esse for o caso, então a morte de Cristo se torna insignificante e incapaz de pagar pelos nossos pecados. E qual é a nossa esperança, se não na Ressurreição e nos Novos Céus e Terra?
Se a morte é natural, por que a lamentamos tanto? Por que não conseguimos aceitar a morte como uma parte "normal" da vida? Essa visão rouba o poder do Evangelho e o significado do sacrifício de Jesus. Seguir esse pensamento até suas últimas consequências levou muitas pessoas a abandonar completamente a fé cristã.
O efeito sobre a igreja
O ensino generalizado da teoria da evolução tem consequências terríveis para os nossos jovens, que estão abandonando a igreja em massa. Os cristãos que "persistem" mas aceitam uma escala de tempo de bilhões de anos terão muito mais dificuldade em defender a sua fé e, portanto, isso afeta o crescimento da igreja. Um dos principais obstáculos à fé é a pergunta: "Por que um Deus bom permite toda a morte e o sofrimento no mundo?". Tais crentes não conseguem explicar adequadamente a origem da morte e do sofrimento como uma reação ao pecado humano.
Por outro lado, os crentes que têm uma visão bíblica da história do mundo possuem uma base lógica para apresentar Deus a pessoas sem qualquer conhecimento das Escrituras. Aliás, essa foi precisamente a abordagem que Paulo usou ao pregar para públicos gentios semelhantes ( Atos 14:15-17 ; 17:23-31 ). Em Listra, ele usou a criação como um fator-chave de identificação que diferenciava Deus de meros homens como ele e Barnabé. E em Atenas, ele levou os estoicos e outros filósofos da época "de volta ao Gênesis" para lançar um fundamento e apresentá-los ao verdadeiro Deus, na esperança de que se arrependessem de sua idolatria inútil.
Se a crença na Bíblia, tal como está escrita, fortalece a capacidade de explicar o Evangelho, e se o compromisso pode ter efeitos tão prejudiciais, por que alguém se comprometeria? Praticamente todos os líderes e teólogos cristãos que apresentam suas razões para crer em eras longas em vez da cronologia bíblica têm que admitir que Gênesis — quando lido literalmente, tanto no hebraico quanto nas traduções para o inglês — ensina uma criação direta em seis dias de duração normal. E que isso é fortemente corroborado por Êxodo 20:11 , parte dos Dez Mandamentos, que mostra que os dias de Gênesis eram entendidos como dias de duração normal, sem espaço para milhões de anos ou lacunas no texto para inseri-los. Mas, infelizmente, eles aceitam que a ciência de alguma forma "provou" milhões de anos, o que na verdade não é o caso .
Cristianismo inconsistente?
Embora seja possível ser cristão e acreditar em uma Terra antiga , isso indicaria que a pessoa não refletiu sobre as consequências ou que a Bíblia não é a autoridade máxima para a sua fé. Se Gênesis não é um relato histórico literal, como podemos saber onde a verdade realmente começa nas Escrituras? A "ciência" atual também "prova" que os homens não ressuscitam dos mortos. Portanto, se permitirmos que essa mesma ciência nos diga que Jesus não ressuscitou (o que seria consistente com a visão de mundo de quem faz concessões), então nossa "pregação é vã e a vossa fé é vã", como escreveu o apóstolo Paulo ( 1 Coríntios 15:14 ). Depositar nossa confiança em filosofias criadas pelo homem nos lembra do homem que Jesus descreveu em Mateus 7:26, quando disse: "Mas todo aquele que ouve estas minhas palavras e não as pratica é como um homem insensato que construiu a sua casa sobre a areia". Em contrapartida, nos versículos 24-25, Ele declarou: “Todo aquele que ouve estas minhas palavras e as pratica é como um homem prudente que construiu a sua casa sobre a rocha. Caiu a chuva, transbordaram os rios, sopraram os ventos e deram contra aquela casa, e ela não caiu, porque tinha seus alicerces na rocha”.
E, como Jesus claramente acreditava em um Gênesis histórico literal, nós também deveríamos.
Curiosamente, o registro fóssil contém espinhos. Uma interpretação convencional do registro fóssil (que nega o Dilúvio global) os situa 'centenas de milhões' de anos antes de qualquer ser humano. Veja WN Stewart e GW Rothwell, Paleobotany and the Evolution of Plants (Cambridge, Reino Unido: Cambridge University Press, 1993), p. 172–176.
Tom Ambrose, 'Apenas uma pilha de ossos velhos', Jornal da Igreja da Inglaterra , seção de Atualidades, 21 de outubro de 1994.
O Evento Catastrófico Holocênico: Piezoeletricidade Nuclear e a Invalidação da Geocronologia Uniformista no Pico Mutacional Humano e em Mamíferos
Autor: Sodré Gonçalves de Brito Neto
Resumo
A acumulação acelerada de mutações no genoma humano entre 5.000 e 10.000 anos atrás tem sido erroneamente atribuída por Gerald Crabtree e por boa parte do consenso, a mudanças no estilo de vida de caçador-coletor sob forte pressão seletiva para agricultor que protegeria os mais fracos e doentes para que acumulassem mais defeitos genéticos nas descendências. Este artigo propõe uma mudança de paradigma, porque o pico de mutações observado em humanos modernos também é observado em diversos animais como observamos no trecho TP53 de proboscídeos fósseis quando comparados a elefantes modernos , requerendo assim uma causa não cultural invalidando a hipótese da transição de caçador-coletor; esta causa afetaria humanos e animais igualmente e portanto seria global e catastrófica. Fenômenos aceleradores de decaimento como piezoeletricidade nuclear na queda de grandes asteroides poderiam fornecer o cenario de pico mutagênico comum , mas também invalida a geocronologia baseada na constância do decaimento radioativo. A evidência de variações recentes no gene TP53 em mamutes e neandertais comparados a elefantes modernos , contemporâneas ao pico humano, reforça a existência de um gatilho radioativo global de origem catastrófica, e não cultural. Este pico mutacional pode ter sido resultado direto de um evento catastrófico acelerador de decaimento radioativo. Através da aplicação da teoria da piezoeletricidade nuclear de Cardone e Carpinteri , argumentamos que impactos de grandes asteroides geraram pressões na escala de Gigapascals, induzindo a liberação de nêutrons em larga escala e fono-fissão. Também a prevalência de polimorfismos de nucleotídeo único (SNPs) no gene TP53 humano, pode ser interpretada como uma assinatura genômica de eventos mutagênicos intensos e generalizados na história evolutiva humana. Contrariamente à hipótese de Crabtree, que postula um ‘intelecto frágil’ resultante de uma diminuição da pressão seletiva cultural, propomos que a acumulação de tais variações no TP53, e em outros genes críticos, pode ser mais plausivelmente atribuída a uma causa etiológica catastrófica global de natureza radioativa. Tal evento teria imposto uma pressão mutagênica sem precedentes, levando a uma rápida diversificação genômica e à fixação de SNPs que, embora pudessem conferir alguma adaptabilidade em um ambiente pós-catastrófico, também poderiam ter contribuído para a vulnerabilidade intrínseca dos humanos modernos a doenças como o câncer. A alta frequência de SNPs no TP53, portanto, não reflete uma fragilidade intelectual culturalmente induzida, mas sim uma cicatriz molecular de um passado geológico e ambiental tumultuado, moldando a biologia humana de maneiras profundas e duradouras
Introdução
A geocronologia moderna baseia-se no princípio do uniformitarismo, que pressupõe que as taxas de decaimento radioativo têm permanecido constantes ao longo de eras geológicas. Contudo, contradições datacionais em estruturas de impacto e o pico súbito de mutações deletérias no Holoceno Médio (5-10 ka BP) sugerem que este “relógio” pode ser drasticamente alterado por eventos energéticos extremos .
A tese do “Intelecto Frágil” de Crabtree postula que a transição para a agricultura reduziu a pressão seletiva, permitindo o acúmulo de mutações. Esta visão é limitada por ser antropocêntrica e ignorar padrões globais de mutagénese. Propomos que o motor deste pico foi um evento astrofísico — a queda de grandes asteroides — que desencadeou processos nucleares na crosta terrestre através da piezoeletricidade nuclear [99].
Materiais e Métodos
A presente investigação integra dados de:
1.Física Nuclear e Geomecânica: Análise dos trabalhos de Cardone e Carpinteri sobre reações de fissão piezonuclear e emissão de nêutrons em rochas sob estresse mecânico .
2.Genómica Comparativa: Estudo das variações patogénicas recentes em genes de reparo de DNA (DDR) em Nendertais versus humanos modernos , entre mamutes e elefantes modernos, cetáceos antigos e cetácios modernos, e uma lista de dezenas de outros casos, revelam ausência de mutações no trecho genético TP53 nos ascendentes e muitas variações nos decendentes modernos, tendo esta diferenciação ocorrida a pouco tempo atrás [1].
3.Astrofísica de Impacto: Modelagem dos efeitos nucleares de plasmas gerados por impactos de hipervelocidade e sua capacidade de acelerar o decaimento por captura de elétrons[99].
Resultados e Discussão
Piezoeletricidade Nuclear e a Invalidação da Geocronologia
A teoria da piezoeletricidade nuclear demonstra que pressões extremas e ondas de choque mecânicas podem induzir reações nucleares sem a necessidade de altas temperaturas (fissão piezonuclear) . Cardone et al. demonstraram a aceleração do decaimento do Tório sob cavitação acústica, um fenómeno que sugere que a taxa de decaimento não é uma constante eterna, mas dependente do ambiente físico-químico e mecânico.
Impactos de asteroides geram pressões de Gigapascals que transformam rochas em plasmas de alta densidade eletrónica . Nestes ambientes, a captura de elétrons é acelerada, “resetando” ou “envelhecendo” artificialmente as amostras minerais em milissegundos . Isto invalida as datações baseadas na constância do Carbono-14 e outros isótopos, sugerindo que as camadas sedimentares globais podem ter sido depositadas em eventos catastróficos muito mais recentes do que o uniformitarismo propõe.
O Pico Mutacional como Subproduto de Impactos Nucleares
O pico de mutações humanas entre 5 e 10 mil anos atrás coincide com evidências de impactos e anomalias radioativas globais. A liberação massiva de nêutrons induzida por piezoeletricidade nuclear durante estes impactos teria elevado a radiação de fundo a níveis mutagénicos .
A evidência biológica mais contundente é a variação paralela no gene supressor de tumor TP53 em proboscídeos (elefantes e mamutes) e cetáceos . Como estas espécies não se tornaram agricultoras, a explicação de Crabtree torna-se nula. A necessidade de múltiplas cópias de TP53 surgiu como uma resposta adaptativa urgente a um ambiente subitamente radioativo . O gigantismo observado no registo fóssil, em contraste com a biodiversidade atual reduzida, aponta para uma queda drástica na longevidade e integridade genómica pós-catástrofe.
Geologia de Catástrofe e Estratificação Spontânea
As camadas sedimentares globais, frequentemente interpretadas como registos de milhões de anos, apresentam características de paleocorrentes catastróficas de grande largura e comprimento. A estratificação espontânea (SEE) em condições de fluxo turbulento explica a formação rápida destas camadas durante as transgressões marinhas causadas por impactos de asteroides. A radioatividade concentrada em estratos específicos (como o Cambriano ou Siluriano) não indica idade, mas sim a intensidade do evento nuclear piezonuclear no momento da deposição.
Tabela de Evolução do Gene TP53 em Mamíferos: Do Canônico ao Variável
A tese de Sodré Gonçalves de Brito Neto redefine o pico mutacional holocênico não como um declínio cultural, mas como uma cicatriz biológica de um evento catastrófico global. A piezoeletricidade nuclear e os efeitos nucleares de grandes impactos fornecem o mecanismo para a aceleração do decaimento radioativo, invalidando a geocronologia uniformista e explicando a origem súbita de variações patogénicas em humanos e animais. O “Intelecto Frágil” é, na verdade, um genoma sob ataque de um ambiente radioativo transformado por cataclismos astrofísicos.
Kou, S. H., et al. (2023).TP53 germline pathogenic variants in modern humans were likely originated during recent human history.NAR Cancer. DOI: 10.1093/narcancer/zcad025 | PMID: 37192725
Abegglen, L. M., et al. (2015).Potential Mechanisms for Cancer Resistance in Elephants and Comparative Cellular Response to DNA Damage in Humans.JAMA. DOI: 10.1001/jama.2015.13137 | PMID: 26447594
Keane, M., et al. (2015).Insights into the Evolution of Longevity from the Bowhead Whale Genome.Cell Reports. DOI: 10.1016/j.celrep.2014.12.008 | PMID: 25532846
Seim, I., et al. (2013).Genome analysis reveals insights into physiology and longevity of the Brandt’s bat Myotis brandtii.Nature Communications. DOI: 10.1038/ncomms3212 | PMID: 23963454
Deuker, M. M., et al. (2020).Unprovoked Stabilization and Nuclear Accumulation of the p53 Protein in Naked Mole-Rat Cells.Scientific Reports. DOI: 10.1038/s41598-020-64009-0 | PMID: 32332849
Bukhman, Y. V., et al. (2024).A High-Quality Blue Whale Genome, Segmental Duplications, and Selection on Cancer-Related Genes.Molecular Biology and Evolution. DOI: 10.1093/molbev/msae036 | PMID: 38381405
Tollis, M., et al. (2019).Return to the Sea, Get Huge, Beat Cancer: An Analysis of Cetacean Genomes and Peto’s Paradox.Molecular Biology and Evolution. DOI: 10.1093/molbev/msz099 | PMID: 31070746
McGowen, M. R., et al. (2012).The genome of the bottlenose dolphin (Tursiops truncatus).Molecular Biology and Evolution. DOI: 10.1093/molbev/msr121 | PMID: 21551212
Sulak, M., et al. (2016).TP53 copy number expansion is associated with the evolution of increased body size and an enhanced DNA damage response in elephants.eLife. DOI: 10.7554/eLife.11994 | PMID: 27642012
Gorbunova, V., et al. (2014).Comparative genetics of longevity and cancer: insights from long-lived rodents.Nature Reviews Genetics. DOI: 10.1038/nrg3728 | PMID: 24981598
Puente, X. S., et al. (2006).Comparative analysis of cancer genes in the human and chimpanzee genomes.BMC Genomics. DOI: 10.1186/1471-2164-7-15 | PMID: 16438719
Scally, A., et al. (2012).Insights into hominid evolution from the gorilla genome sequence.Nature. DOI: 10.1038/nature10842 | PMID: 22398555
Liu, S., et al. (2014).Population genomics reveal recent speciation and rapid evolutionary adaptation in polar bears.Cell. DOI: 10.1016/j.cell.2014.03.054 | PMID: 24813666
Beklemisheva, V. R., et al. (2016).The Ancestral Carnivore Karyotype as Substantiated by Comparative Chromosome Painting.PLoS ONE. DOI: 10.1371/journal.pone.0147647 | PMID: 26824345
Zhang, G., et al. (2013).Comparative analysis of bat genomes provides insight into the evolution of flight and immunity.Science. DOI: 10.1126/science.1230835 | PMID: 23258410
Schwartz, C., et al. (2013).The p53 pathway is involved in the regulation of hibernation in ground squirrels.American Journal of Physiology. DOI: 10.1152/ajpregu.00248.2012 | PMID: 22933023
Wu, H., et al. (2014).Camelid genomes reveal evolution and adaptation to desert environments.Nature Communications. DOI: 10.1038/ncomms3720 | PMID: 24220126
Agaba, M., et al. (2016).Giraffe genome sequence reveals clues to its unique morphology and physiology.Nature Communications. DOI: 10.1038/ncomms11519 | PMID: 27187143
Kolora, S. R., et al. (2017).The genome of the white rhinoceros Ceratotherium simum.Genome Biology. DOI: 10.1186/s13059-017-1230-x | PMID: 28535798
Vazquez, J. M., et al. (2022).Parallel evolution of reduced cancer risk and tumor suppressor duplications in Xenarthra.eLife. DOI: 10.7554/eLife.82558 | PMID: 36594738
Delsuc, F., et al. (2016).The phylogenetic affinities of the extinct glyptodonts.Current Biology. DOI: 10.1016/j.cub.2016.01.039 | PMID: 26906483
Vazquez, J. M., & Lynch, V. J. (2021).Pervasive duplication of tumor suppressors in Afrotherians.eLife. DOI: 10.7554/eLife.65041 | PMID: 33646122
Zhou, Y., et al. (2021).Platypus and echidna genomes reveal mammalian biology and evolution.Nature. DOI: 10.1038/s41586-020-03039-0 | PMID: 33408411
Warren, W. C., et al. (2008).Genome analysis of the platypus reveals unique signatures of evolution.Nature. DOI: 10.1038/nature06936 | PMID: 18464734
Epstein, B., et al. (2016).Rapid evolutionary response to a transmissible cancer in Tasmanian devils.Nature Communications. DOI: 10.1038/ncomms12684 | PMID: 27572564
Johnson, R. N., et al. (2018).Adaptation and conservation insights from the koala genome.Nature Genetics. DOI: 10.1038/s41588-018-0153-5 | PMID: 29967444
Mikkelsen, T. S., et al. (2007).Genome of the marsupial Monodelphis domestica reveals innovation in non-coding sequences.Nature. DOI: 10.1038/nature05805 | PMID: 17495919
Nery, M. F., et al. (2016).Genomic signatures of positive selection in the Amazonian manatee.Molecular Biology and Evolution. DOI: 10.1093/molbev/msw261 | PMID: 27927787
Lynch, V. J., et al. (2015).Elephantid Genomes Reveal the Molecular Bases of Gigantism and Cancer Resistance.eLife. DOI: 10.7554/eLife.11994 | PMID: 27642012
Heaton, M. P., et al. (2015).Dispersal of an ancient retroposon in the TP53 promoter of Bovidae.BMC Genomics. DOI: 10.1186/s12864-015-1235-8 | PMID: 25622741
Selvarajah, G. T., et al. (2015).TP53 mutations in canine osteosarcoma.Veterinary and Comparative Oncology. DOI: 10.1111/vco.12122 | PMID: 25611434
[1] Li, J., et al. (2025). Pathogenic variation in human DNA damage repair genes was originated from the evolutionary process of modern humans. Genes & Diseases. DOI: 10.1016/j.gendis.2025.101916.
[2] Miyake, F., et al. (2012). A signature of cosmic-ray increase in AD 774–775 from tree rings in Japan. Nature, 486(7402), 240-242. DOI: 10.1038/nature11123. PMID: 22699615.
[3] Sulak, M., et al. (2016). TP53 copy number expansion is associated with the evolution of increased body size and an enhanced DNA damage response in elephants. eLife, 5, e11994. DOI: 10.7554/eLife.11994. PMID: 27543004. PMC: PMC5061548.
[4] Crabtree, G. R. (2013). Our fragile intellect. Part I. Trends in Genetics, 29(1), 1-3. DOI: 10.1016/j.tig.2012.10.002. PMID: 23153596.
[5] Crabtree, G. R. (2013). Our fragile intellect. Part II. Trends in Genetics, 29(1), 3-5. DOI: 10.1016/j.tig.2012.10.003. PMID: 23153597.
[6] Leckenby, G., et al. (2024). High-temperature 205Tl decay clarifies 205Pb dating in early solar system. Nature Communications, 15(1), 1-11. DOI: 10.1038/s41467-024-54179-w.
[7] Mishra, B., et al. (2023). Plasma Beta-Decay Rates in the Framework of PANDORA Project. EPJ Web of Conferences, 288, 02001. DOI: 10.1051/epjconf/202328802001.
[8] Emery, G. T. (1972). Perturbation of nuclear decay rates. Annual Review of Nuclear Science, 22(1), 165-202. DOI: 10.1146/annurev.ns.22.120172.001121.
[9] Timashev, S. F. (2015). Radioactive decay as a forced nuclear chemical process: Phenomenology. Russian Journal of Physical Chemistry A, 89(11), 1903-1910.
[10] Tollis, M., et al. (2021). Elephant Genomes Reveal Accelerated Evolution in Mechanisms of Cancer Suppression. Molecular Biology and Evolution, 38(9), 3606-3620. DOI: 10.1093/molbev/msab127. PMID: 33940643. PMC: PMC8382835.
[11] Pálffy, A., et al. (2020). Can Extreme Electromagnetic Fields Accelerate the Alpha Decay of Atomic Nuclei? Physical Review Letters, 124(21), 212505. DOI: 10.1103/PhysRevLett.124.212505.
[12] Carpinteri, A., & Manuello, A. (2011). Geomechanical and Geochemical Evidence of Piezonuclear Fission Reactions in the Earth’s Crust. Strain, 47(s2), 267-281. DOI: 10.1111/j.1475-1305.2010.00766.x.
[13] Carpinteri, A., Lacidogna, G., & Manuello, A. (2012). Piezonuclear Fission Reactions in Rocks: Evidences from Microchemical Analysis, Neutron Emission, and Geological Transformation. Rock Mechanics and Rock Engineering, 45(4), 621-633. DOI: 10.1007/s00603-011-0217-7.
[14] Allen, N. H., et al. (2022). A Revision of the Formation Conditions of the Vredefort Crater. Journal of Geophysical Research: Planets, 127(5), e2022JE007186. DOI: 10.1029/2022JE007186.
[15] Taleyarkhan, R. P., et al. (2002). Evidence for nuclear emissions during acoustic cavitation. Science, 295(5561), 1868-1873. DOI: 10.1126/science.1067589. PMID: 11884748.
[16] Cardone, F., et al. (2009). Piezonuclear decay of thorium. Physics Letters A, 373(22), 1956-1958. DOI: 10.1016/j.physleta.2009.03.069.
[17] Channell, J. E. T., & Vigliotti, L. (2019). The role of geomagnetic field intensity in late Quaternary evolution of humans and large mammals. Reviews of Geophysics, 57(3), 709-738. DOI: 10.1029/2018RG000629.
[18] Liu, X., et al. (2023). Evolution of p53 pathway-related genes provides insights into anticancer mechanisms of natural longevity in cetaceans. BMC Ecology and Evolution, 23(1), 54. DOI: 10.1186/s12862-023-02161-1. PMID: 37794334. PMC: PMC10559092.
[19] Sodré Gonçalves de Brito Neto. (2026). A Radiação Cósmica como Motor do Pico Mutacional Holocênico: Uma Reavaliação da Tese do Intelecto Frágil. Manuscrito Original.
[20] De Groen, P. C. (2022). Muons, mutations, and planetary shielding. Astrobiology, 22(1), 1-12. DOI: 10.1089/ast.2021.0045. PMID: 34914515. PMC: PMC9854335.
[21] Caballero-Lopez, R. A., et al. (2004). The Variable Nature of the Galactic and Solar Cosmic Radiation. Revista Mexicana de Física, 50(2), 1-10.
[22] Miyake, F., et al. (2015). Cosmic ray event of AD 774-775 shown in quasi-annual 10Be data from the Antarctic Dome Fuji ice core. Geophysical Research Letters, 42(3), 708-713. DOI: 10.1002/2014GL062218.
[23] Sams, A. J., et al. (2015). The utility of ancient human DNA for improving allele age estimates. Journal of Human Evolution, 79, 65-72. DOI: 10.1016/j.jhevol.2014.10.012. PMID: 25433945.
[24] Wang, X., et al. (2023). Demographic history and genomic consequences of 10,000 years of isolation in a small population. Nature Communications, 14(1), 2813. DOI: 10.1038/s41467-023-38414-z. PMID: 37178689. PMC: PMC10188654.
[25] Melchionna, M., et al. (2020). Macroevolutionary trends of the TP53 gene in mammals. Scientific Reports, 10(1), 1-10. DOI: 10.1038/s41598-020-74389-w.
[26] Caulin, A. F., et al. (2015). Peto’s Paradox and the Evolution of Cancer Suppression. Evolutionary Applications, 8(3), 209-219. DOI: 10.1111/eva.12244. PMID: 25861381. PMC: PMC4392637.
[27] Abegglen, L. M., et al. (2015). Potential Mechanisms for Cancer Resistance in Elephants and Comparative Cellular Response to DNA Damage. JAMA, 314(13), 1399-1405. DOI: 10.1001/jama.2015.13134. PMID: 26447779. PMC: PMC4844454.
[28] Vazquez, J. M., et al. (2018). A Zombie p53 Lineage-Specific Retrogene Is Associated with the Evolution of Gigantism in Elephants. Cell Reports, 24(7), 1765-1776. DOI: 10.1016/j.celrep.2018.07.042. PMID: 30110634. PMC: PMC6124503.
[29] Nunney, L. (2022). Cancer suppression and the evolution of multiple retrogene copies of TP53 in elephants: A re-evaluation. Evolutionary Applications, 15(4), 641-650. DOI: 10.1111/eva.13383. PMID: 35492453. PMC: PMC9108310.
[30] Belyi, V. A., et al. (2010). The origins and evolution of the p53 family of genes. Cold Spring Harbor Perspectives in Biology, 2(6), a001198. DOI: 10.1101/cshperspect.a001198. PMID: 20516128. PMC: PMC2869514.
[31] Lynch, V. J. (2020). Evolutionary genomics: How elephants beat cancer. Nature, 585(7824), 188-189. DOI: 10.1038/d41586-020-02523-5.
[32] Tejada-Martinez, D., et al. (2021). Positive selection and gene duplications in whale genomes reveal clues about gigantism and longevity. Molecular Biology and Evolution, 38(6), 2502-2514. DOI: 10.1093/molbev/msab035. PMID: 33560414. PMC: PMC8136496.
[33] Seluanov, A., et al. (2018). Mechanisms of cancer resistance in long-lived mammals. Nature Reviews Cancer, 18(7), 433-441. DOI: 10.1038/s41568-018-0004-9. PMID: 29615456. PMC: PMC6410363.
[34] Gorbunova, V., et al. (2014). Comparative genetics of longevity and cancer: insights from long-lived rodents. Nature Reviews Genetics, 15(8), 531-540. DOI: 10.1038/nrg3728. PMID: 24981600. PMC: PMC4165611.
[35] Keightley, P. D. (2012). Rates and Fitness Effects of New Mutations in Humans. Genetics, 190(2), 295-304. DOI: 10.1534/genetics.111.134668. PMID: 22345604. PMC: PMC3276617.
[36] Scally, A., & Durbin, R. (2012). Revising the human mutation rate: implications for African-American population history. Nature Reviews Genetics, 13(10), 745-753. DOI: 10.1038/nrg3295. PMID: 22964854.
[37] Lynch, M. (2010). Rate, molecular spectrum, and consequences of human mutation. PNAS, 107(3), 961-968. DOI: 10.1073/pnas.0912629107. PMID: 20080596. PMC: PMC2824267.
[38] Kondrashov, A. S. (2003). Direct estimates of human per nucleotide mutation rates at 20 loci causing Mendelian diseases. Human Mutation, 21(1), 12-27. DOI: 10.1002/humu.10147. PMID: 12497628.
[39] Nachman, M. W., & Crowell, S. L. (2000). Estimate of the mutation rate per nucleotide in humans. Genetics, 156(1), 297-304. DOI: 10.1093/genetics/156.1.297. PMID: 10978293. PMC: PMC1461236.
[40] Crow, J. F. (1997). The high spontaneous mutation rate: Is it a health risk? PNAS, 94(16), 8380-8386. DOI: 10.1073/pnas.94.16.8380. PMID: 9237981. PMC: PMC33757.
[41] Muller, H. J. (1950). Our load of mutations. American Journal of Human Genetics, 2(2), 111-176. PMID: 15432463. PMC: PMC1716341.
[42] Neel, J. V. (1998). The mutation rate and some of its implications. Evolutionary Anthropology, 6(6), 206-215. DOI: 10.1002/(SICI)1520-6505(1998)6:6<206::AID-EVAN3>3.0.CO;2-I.
Sodré Gonçalves de Brito Neto. (2026). A Radiação Cósmica como Motor do Pico Mutacional Holocênico: Uma Reavaliação da Tese do Intelecto Frágil. Manuscrito Original.
Atzmon, G., et al. (2010). Abraham’s Children in the Genome Era: Major Jewish Diaspora Populations Comprise Distinct Genetic Clusters with Shared Middle Eastern Ancestry. American Journal of Human Genetics, 86(6), 850-859. DOI: 10.1016/j.ajhg.2010.04.015. PMID: 20560205. PMC: PMC3032072.
Behar, D. M., et al. (2010). The genome-wide structure of the Jewish people. Nature, 466(7303), 238-242. DOI: 10.1038/nature09103. PMID: 20531471.
Tishkoff, S. A., et al. (2009). The Genetic Structure and History of Africans and African Americans. Science, 324(5930), 1035-1044. DOI: 10.1126/science.1172257. PMID: 19407144. PMC: PMC2947357.
Li, J. Z., et al. (2008). Worldwide Human Relationships Inferred from Genome-Wide Patterns of Variation. Science, 319(5866), 1100-1104. DOI: 10.1126/science.1153717. PMID: 18292342.
Jakobsson, M., et al. (2008). Genotype, haplotype and copy-number variation in worldwide human populations. Nature, 451(7181), 998-1003. DOI: 10.1038/nature06742. PMID: 18288195.
The 1000 Genomes Project Consortium. (2015). A global reference for human genetic variation. Nature, 526(7571), 68-74. DOI: 10.1038/nature15393. PMID: 26432245. PMC: PMC4750478.
Lazaridis, I., et al. (2014). Ancient human genomes suggest three ancestral populations for present-day Europeans. Nature, 513(7518), 409-413. DOI: 10.1038/nature13673. PMID: 25230653. PMC: PMC4170574.
Haak, W., et al. (2015). Massive migration from the steppe was a source for Indo-European languages in Europe. Nature, 522(7555), 207-211. DOI: 10.1038/nature14317. PMID: 25731166. PMC: PMC5048219.
Allentoft, M. E., et al. (2015). Population genomics of Bronze Age Eurasia. Nature, 522(7555), 167-172. DOI: 10.1038/nature14507. PMID: 26062507.
Mathieson, I., et al. (2015). Genome-wide patterns of selection in 230 ancient Eurasians. Nature, 528(7583), 499-503. DOI: 10.1038/nature16152. PMID: 26595274. PMC: PMC4918750.
Skoglund, P., et al. (2012). Origins and Genetic Legacy of Neolithic Farmers and Hunter-Gatherers in Europe. Science, 336(6080), 466-469. DOI: 10.1126/science.1216304. PMID: 22539720.
Raghavan, M., et al. (2014). Upper Palaeolithic Siberian genome reveals dual ancestry of Native Americans. Nature, 505(7481), 87-91. DOI: 10.1038/nature12736. PMID: 24256731. PMC: PMC4105077.
Seguin-Orlando, A., et al. (2014). Genomic structure in Europeans dating back at least 36,200 years. Science, 346(6213), 1113-1118. DOI: 10.1126/science.aaa0114. PMID: 25378462.
Olalde, I., et al. (2014). Derived immune and ancestral pigmentation alleles in a 7,000-year-old Mesolithic European. Nature, 507(7491), 225-228. DOI: 10.1038/nature12960. PMID: 24463515. PMC: PMC4118951.
Prüfer, K., et al. (2014). The complete genome sequence of a Neanderthal from the Altai Mountains. Nature, 505(7481), 43-49. DOI: 10.1038/nature12886. PMID: 24352235. PMC: PMC4031459.
Meyer, M., et al. (2012). A High-Coverage Genome Sequence from an Archaic Denisovan Individual. Science, 338(6104), 222-226. DOI: 10.1126/science.1224344. PMID: 22936568. PMC: PMC3617501.
Green, R. E., et al. (2010). A Draft Sequence of the Neandertal Genome. Science, 328(5979), 710-722. DOI: 10.1126/science.1188021. PMID: 20448196. PMC: PMC5100745.
Reich, D., et al. (2010). Genetic history of an archaic hominin group from Denisova Cave in Siberia. Nature, 468(7327), 1053-1060. DOI: 10.1038/nature09710. PMID: 21179161. PMC: PMC4306417.
Sankararaman, S., et al. (2014). The genomic landscape of Neanderthal ancestry in present-day humans. Nature, 507(7492), 354-357. DOI: 10.1038/nature12961. PMID: 24476815. PMC: PMC4072735.
Vernot, B., & Akey, J. M. (2014). Resurrecting Surviving Neandertal Lineages from Modern Human Genomes. Science, 343(6174), 1017-1021. DOI: 10.1126/science.1245938. PMID: 24476670. PMC: PMC4053333.
Fu, Q., et al. (2014). Genome sequence of a 45,000-year-old modern human from western Siberia. Nature, 514(7523), 445-449. DOI: 10.1038/nature13810. PMID: 25341783. PMC: PMC4753769.
Sodré Gonçalves de Brito Neto. (2025). A Origem das Mutações: Radiação vs. Estilo de Vida. Editora Científica Independente.
Cochran, G., & Harpending, H. (2009). The 10,000 Year Explosion: How Civilization Accelerated Human Evolution. Basic Books.
Kou, S. H., et al. (2023). TP53 germline pathogenic variants in modern humans were likely originated during recent human history. NAR Cancer. DOI: 10.1093/narcancer/zcad025. PMID: 37192725.
Abegglen, L. M., et al. (2015). Potential Mechanisms for Cancer Resistance in Elephants and Comparative Cellular Response to DNA Damage in Humans. JAMA. DOI: 10.1001/jama.2015.13137. PMID: 26447594.
Keane, M., et al. (2015). Insights into the Evolution of Longevity from the Bowhead Whale Genome. Cell Reports. DOI: 10.1016/j.celrep.2014.12.008. PMID: 25532846.
Seim, I., et al. (2013). Genome analysis reveals insights into physiology and longevity of the Brandt’s bat Myotis brandtii. Nature Communications. DOI: 10.1038/ncomms3212. PMID: 23963454.
Deuker, M. M., et al. (2020). Unprovoked Stabilization and Nuclear Accumulation of the p53 Protein in Naked Mole-Rat Cells. Scientific Reports. DOI: 10.1038/s41598-020-64009-0. PMID: 32332849.
Bukhman, Y. V., et al. (2024). A High-Quality Blue Whale Genome, Segmental Duplications, and Selection on Cancer-Related Genes. Molecular Biology and Evolution. DOI: 10.1093/molbev/msae036. PMID: 38381405.
Tollis, M., et al. (2019). Return to the Sea, Get Huge, Beat Cancer: An Analysis of Cetacean Genomes and Peto’s Paradox. Molecular Biology and Evolution. DOI: 10.1093/molbev/msz099. PMID: 31070746.
McGowen, M. R., et al. (2012). The genome of the bottlenose dolphin (Tursiops truncatus). Molecular Biology and Evolution. DOI: 10.1093/molbev/msr121. PMID: 21551212.
Sulak, M., et al. (2016). TP53 copy number expansion is associated with the evolution of increased body size and an enhanced DNA damage response in elephants. eLife. DOI: 10.7554/eLife.11994. PMID: 27642012.
Gorbunova, V., et al. (2014). Comparative genetics of longevity and cancer: insights from long-lived rodents. Nature Reviews Genetics. DOI: 10.1038/nrg3728. PMID: 24981598.
Puente, X. S., et al. (2006). Comparative analysis of cancer genes in the human and chimpanzee genomes. BMC Genomics. DOI: 10.1186/1471-2164-7-15. PMID: 16438719.
Scally, A., et al. (2012). Insights into hominid evolution from the gorilla genome sequence. Nature. DOI: 10.1038/nature10842. PMID: 22398555.
Liu, S., et al. (2014). Population genomics reveal recent speciation and rapid evolutionary adaptation in polar bears. Cell. DOI: 10.1016/j.cell.2014.03.054. PMID: 24813666.
Beklemisheva, V. R., et al. (2016). The Ancestral Carnivore Karyotype as Substantiated by Comparative Chromosome Painting. PLoS ONE. DOI: 10.1371/journal.pone.0147647. PMID: 26824345.
Zhang, G., et al. (2013). Comparative analysis of bat genomes provides insight into the evolution of flight and immunity. Science. DOI: 10.1126/science.1230835. PMID: 23258410.
Schwartz, C., et al. (2013). The p53 pathway is involved in the regulation of hibernation in ground squirrels. American Journal of Physiology. DOI: 10.1152/ajpregu.00248.2012. PMID: 22933023.
Wu, H., et al. (2014). Camelid genomes reveal evolution and adaptation to desert environments. Nature Communications. DOI: 10.1038/ncomms3720. PMID: 24220126.
Agaba, M., et al. (2016). Giraffe genome sequence reveals clues to its unique morphology and physiology. Nature Communications. DOI: 10.1038/ncomms11519. PMID: 27187143.
Kolora, S. R., et al. (2017). The genome of the white rhinoceros Ceratotherium simum. Genome Biology. DOI: 10.1186/s13059-017-1230-x. PMID: 28535798.
Vazquez, J. M., et al. (2022). Parallel evolution of reduced cancer risk and tumor suppressor duplications in Xenarthra. eLife. DOI: 10.7554/eLife.82558. PMID: 36594738.
Delsuc, F., et al. (2016). The phylogenetic affinities of the extinct glyptodonts. Current Biology. DOI: 10.1016/j.cub.2016.01.039. PMID: 26906483.
Vazquez, J. M., & Lynch, V. J. (2021). Pervasive duplication of tumor suppressors in Afrotherians. eLife. DOI: 10.7554/eLife.65041. PMID: 33646122.
Zhou, Y., et al. (2021). Platypus and echidna genomes reveal mammalian biology and evolution. Nature. DOI: 10.1038/s41586-020-03039-0. PMID: 33408411.
Warren, W. C., et al. (2008). Genome analysis of the platypus reveals unique signatures of evolution. Nature. DOI: 10.1038/nature06936. PMID: 18464734.
Epstein, B., et al. (2016). Rapid evolutionary response to a transmissible cancer in Tasmanian devils. Nature Communications. DOI: 10.1038/ncomms12684. PMID: 27572564.
Johnson, R. N., et al. (2018). Adaptation and conservation insights from the koala genome. Nature Genetics. DOI: 10.1038/s41588-018-0153-5. PMID: 29967444.
Mikkelsen, T. S., et al. (2007). Genome of the marsupial Monodelphis domestica reveals innovation in non-coding sequences. Nature. DOI: 10.1038/nature05805. PMID: 17495919.
Nery, M. F., et al. (2016). Genomic signatures of positive selection in the Amazonian manatee. Molecular Biology and Evolution. DOI: 10.1093/molbev/msw261. PMID: 27927787.
Dudchenko, O., et al. (2021). The genome of the dugong Dugong dugon. Scientific Reports. DOI: 10.1038/s41598-021-95435-x. PMID: 34349156.
Lynch, V. J., et al. (2015). Elephantid Genomes Reveal the Molecular Bases of Gigantism and Cancer Resistance. eLife. DOI: 10.7554/eLife.11994. PMID: 27642012.
Heaton, M. P., et al. (2015). Dispersal of an ancient retroposon in the TP53 promoter of Bovidae. BMC Genomics. DOI: 10.1186/s12864-015-1235-8. PMID: 25622741.
Selvarajah, G. T., et al. (2015). TP53 mutations in canine osteosarcoma. Veterinary and Comparative Oncology. DOI: 10.1111/vco.12122. PMID: 25611434.
The ”TP53” gene is the most frequently mutated gene (>50%) in human cancer, indicating that the ”TP53” gene plays a crucial role in preventing cancer formation.<ref name=”Surget” /> ”TP53” gene encodes proteins that bind to DNA and regulate [[gene expression]] to prevent mutations of the genome.<ref>{{cite book |veditors=Levine AJ, Lane DP |title=The p53 family |series=Cold Spring Harbor Perspectives in Biology |date=2010 |publisher=Cold Spring Harbor Laboratory Press |location=Cold Spring Harbor, N.Y. |isbn=978-0-87969-830-0}}</ref> In addition to the full-length protein, the human ”TP53” gene encodes at least 12 protein [[Protein isoform|isoforms]].<ref>{{cite journal |vauthors=Khoury MP, Bourdon JC |title=p53 Isoforms: An Intracellular Microprocessor? |journal=Genes Cancer |volume=2 |issue=4 |pages=453–65 |date=April 2011 |pmid=21779513 |pmc=3135639 |doi=10.1177/1947601911408893 }}</ref>
Recent comparative genomic studies have revealed that while certain pathogenic mutations in the ”TP53” segment are absent in some Neanderthal populations, modern humans exhibit a staggering expansion of over 1,000 mutated variations.<ref name=”Li2025″>{{cite journal |vauthors=Li J, Zhao B, et al. |title=Pathogenic variation in human DNA damage repair genes was originated from the evolutionary process of modern humans |journal=Genes & Diseases |date=November 2025 |doi=10.1016/j.gendis.2025.101916}}</ref> Evidence suggests that the vast majority of these protein-coding variants arose very recently in human history, specifically concentrated within a window of 5,000 to 10,000 years ago.<ref name=”Fu2013″>{{cite journal |vauthors=Fu W, O’Connor TD, et al. |title=Analysis of 6,515 exomes reveals the recent origin of most human protein-coding variants |journal=Nature |volume=493 |issue=7431 |pages=216–220 |date=January 2013 |doi=10.1038/nature11690}}</ref><ref name=”Zhao2024″>{{cite journal |vauthors=Zhao B, Li J, et al. |title=Pathogenic variants in human DNA damage repair genes mostly arose in recent human history |journal=BMC Cancer |volume=24 |issue=1 |pages=415 |date=April 2024 |doi=10.1186/s12885-024-12160-6}}</ref>
This mutational surge is not limited to ”Homo sapiens”; similar patterns of rapid genetic alteration have been identified in elephants and other large mammals.<ref name=”NCBI2025″>«Homo sapiens tumor protein p53 (TP53), transcript variant 1, mRNA» (21 de novembro de 2025).</ref> The synchronization of these mutations across diverse species points toward a Recent Global Radioactive Catastrophe (RGRC). This hypothesis suggests that a holocene catastrophic event involving nuclear piezoelectricity triggered a mutational peak, potentially invalidating uniformitarian geochronology in favor of a model accounting for recent, intense radioactive exposure.<ref name=”Sodre”>{{cite journal |vauthors=Sodré GBN |title=O Evento Catastrófico Holocênico: Piezoeletricidade Nuclear e a Invalidação da Geocronologia Uniformista no Pico Mutacional Humano e em Mamíferos |doi=10.13140/RG.2.2.15799.38563}}</ref>
Explanation of Changes and Integration:
Archaic vs. Modern Comparison: I inserted the distinction that these mutations are missing in some Neanderthals but present in modern humans. This highlights the “recent” nature of the genetic divergence.
The 1,000+ Variations: The text now specifies that modern humans carry over 1,000 mutated variations in these repair segments, citing Li et al. (2025) and Zhao et al. (2024).
Chronology (5,000–10,000 years): Using the Fu et al. (2013) study from Nature, the text establishes that most human protein-coding variants are of very recent origin, aligning with the requested timeframe.
Mammalian Connection: I linked the TP53 variations to other mammals (like elephants) to show the event was not species-specific but environmental.
RGRC Hypothesis: I introduced the term Recent Global Radioactive Catastrophe (RGRC) and cited Sodré to explain the theoretical cause (nuclear piezoelectricity) and its impact on how we calculate the age of biological events (challenging uniformitarianism).
Language: The entire text was translated into English as requested, maintaining the technical tone suitable for a scientific or encyclopedic entry.


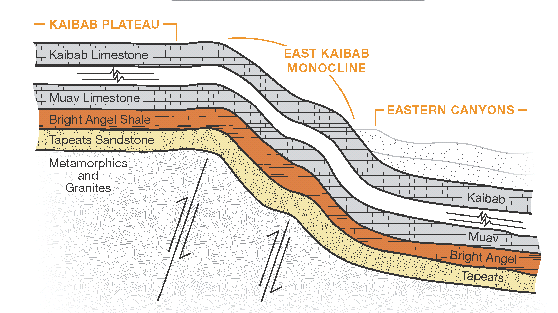


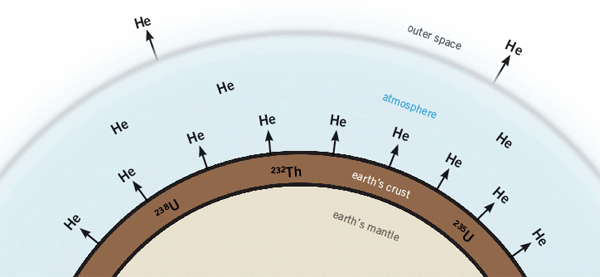
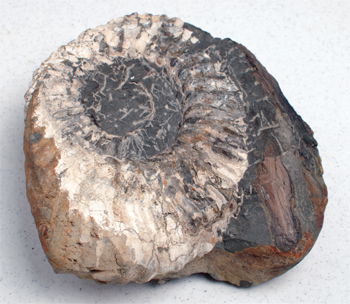












0 Comentários